Atributos multivariados

Aula 8 · Métodos Filogenéticos Comparativos · PPGBA/UFMS

Diogo B. Provete

Hoje

  1. Morfometria geométrica
  2. Sinal, taxa e PGLS multivariados
  3. Modelos multivariados
  4. Modularidade e integração
  5. Ordenação filogenética

Onde estamos

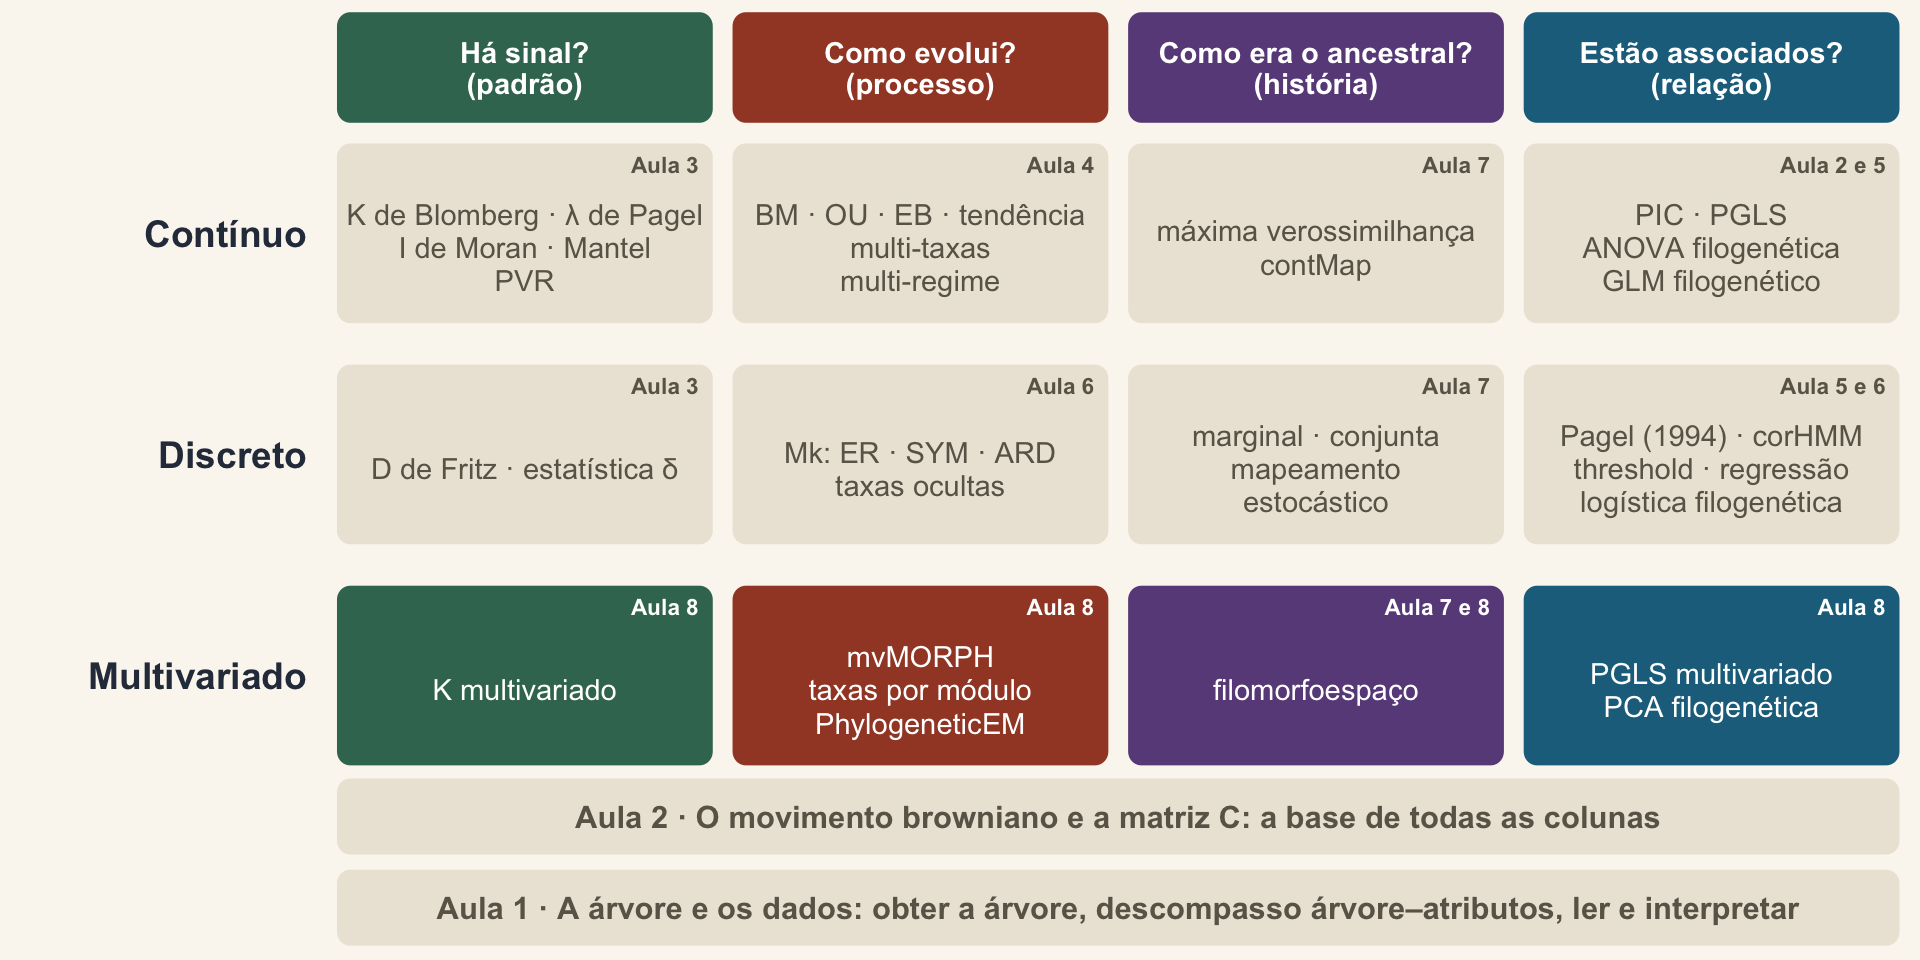
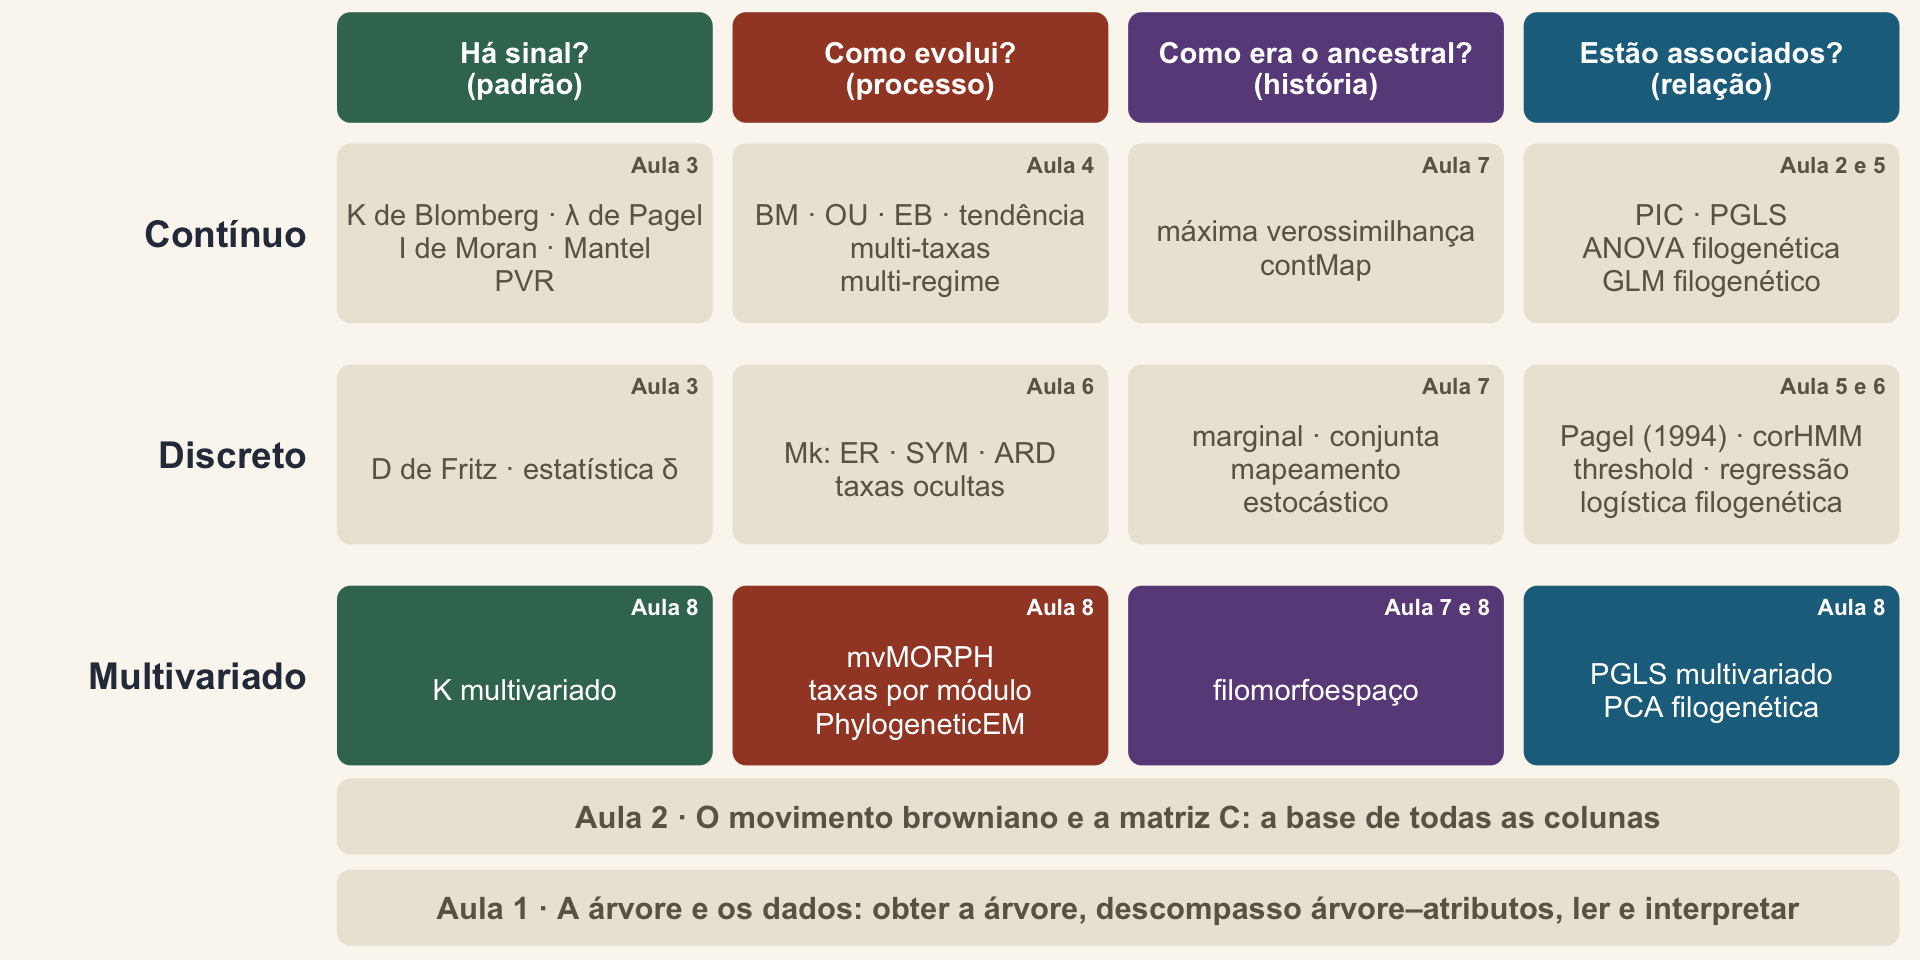
Mapa dos métodos com a linha dos atributos multivariados destacada: K multivariado, mvMORPH e taxas por módulo, filomorfoespaço, PGLS multivariado e PCA filogenética.

1. Morfometria geométrica

Como evolui?

A morfometria tradicional

  • Várias medidas lineares, razões e ângulos, que não capturam a posição dos marcos anatômicos
  • Difícil estabelecer homologia entre distâncias
  • Medidas lineares não capturam a geometria
  • Muitas variáveis correlacionadas, que precisam de redução (ex.: PCA) antes do uso; o PC1 quase sempre é o tamanho
  • Confunde tamanho e forma

As vantagens da morfometria geométrica

  • Separa tamanho de forma, e traz técnicas de visualização
  • Mede formas em 2D e em 3D

Forma: “all the geometric information that remains when location, scale and rotational effects are filtered out from an object” (Kendall 1977).

Kendall (1977), Adv. Appl. Probab. 9: 428–430.

A “revolução” dos anos 1980 e 1990

  • David Kendall: o aparato matemático e geométrico para medir a forma
  • Fred Bookstein: os métodos estatísticos que hoje fazem parte do “catecismo” da morfometria geométrica
  • F. James Rohlf: adaptou a superposição de Procrustes para marcos anatômicos
  • Marcos: o Michigan Morphometrics Workshop (1990), os livros de Bookstein (1991) e de Zelditch et al. (2004; 2ª ed. 2012)

Bookstein (1991), Cambridge University Press; Rohlf & Slice (1990), Syst. Zool. 39: 40–59; Zelditch, Swiderski & Sheets (2012), Geometric Morphometrics for Biologists, Academic Press.

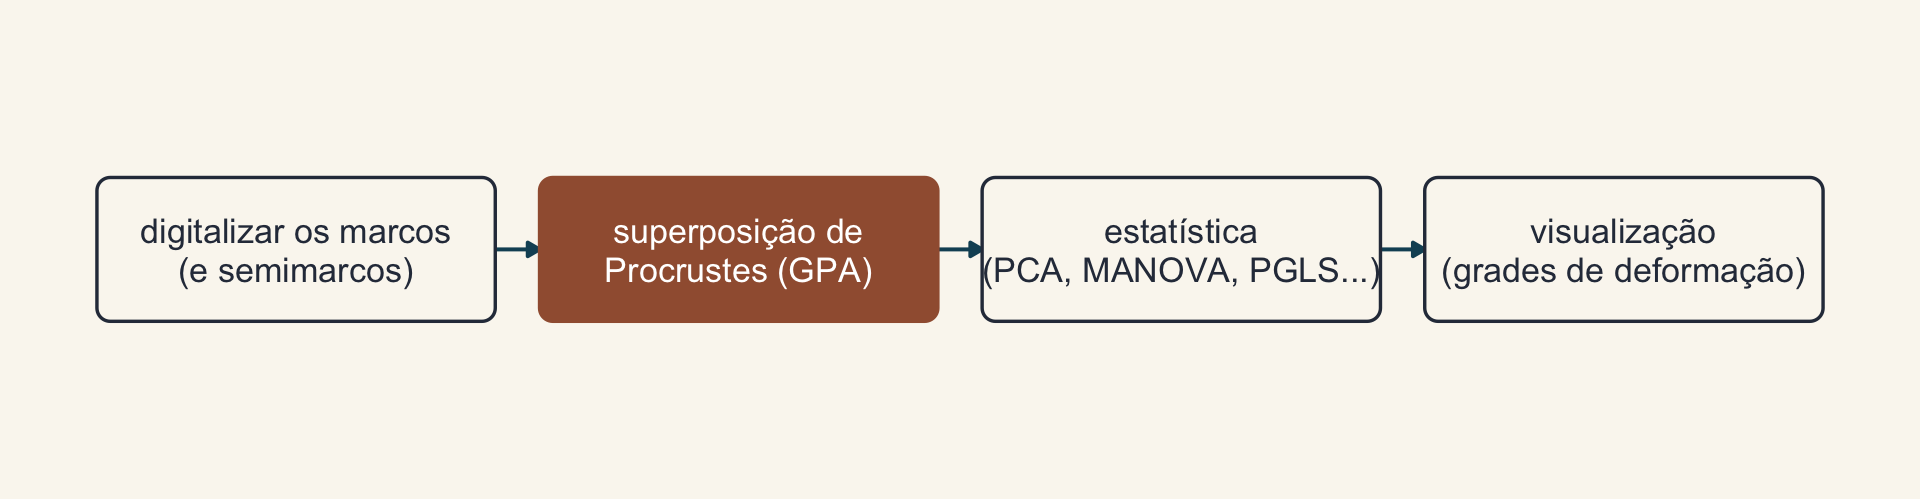
As etapas

Quatro caixas em sequência: digitalizar os marcos e semimarcos; superposição de Procrustes; estatística, como PCA, MANOVA e PGLS; e visualização com grades de deformação.

  • Marcos: coordenadas cartesianas (X, Y, Z) homólogas entre exemplares (ou espécies)
  • Semimarcos: não homólogos, para descrever contornos (antes, usavam-se técnicas de contorno)

Adams, Rohlf & Slice (2013), Hystrix 24: 7–14.

O que não muda a forma
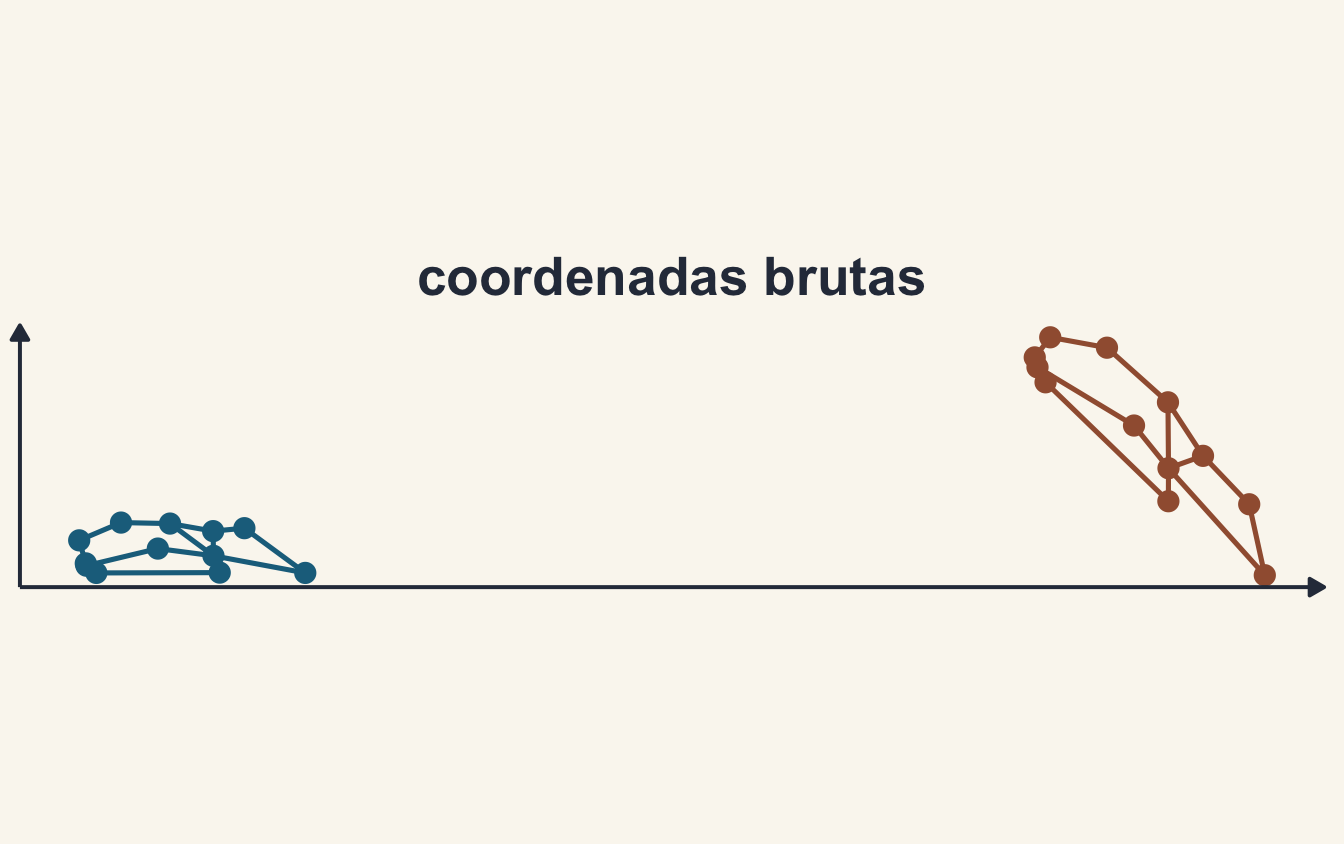
Os 12 marcos da cabeça de duas salamandras, ligados por linhas: uma em azul e outra, em ferrugem, deslocada, girada e maior.

Dados: geomorph::plethodon (cabeça de Plethodon, 12 marcos). Para a demonstração, o segundo exemplar foi girado 40° e ampliado 1,5 vez. Ideia de uma figura do tutorial de morfometria de E. Sherratt.

Superposição de Procrustes: translação
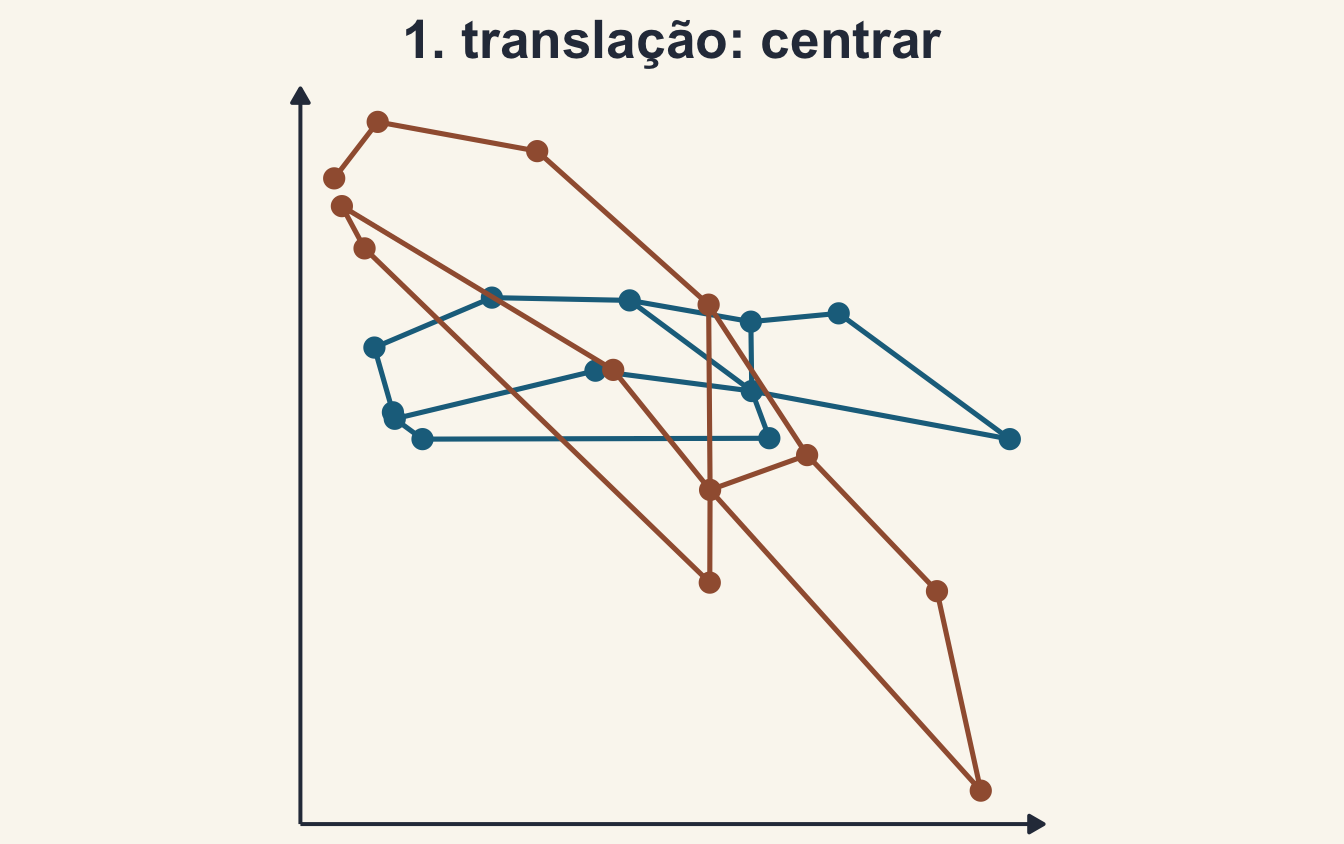
As duas configurações centradas na mesma origem; a ferrugem ainda maior e girada.

Superposição de Procrustes: escala

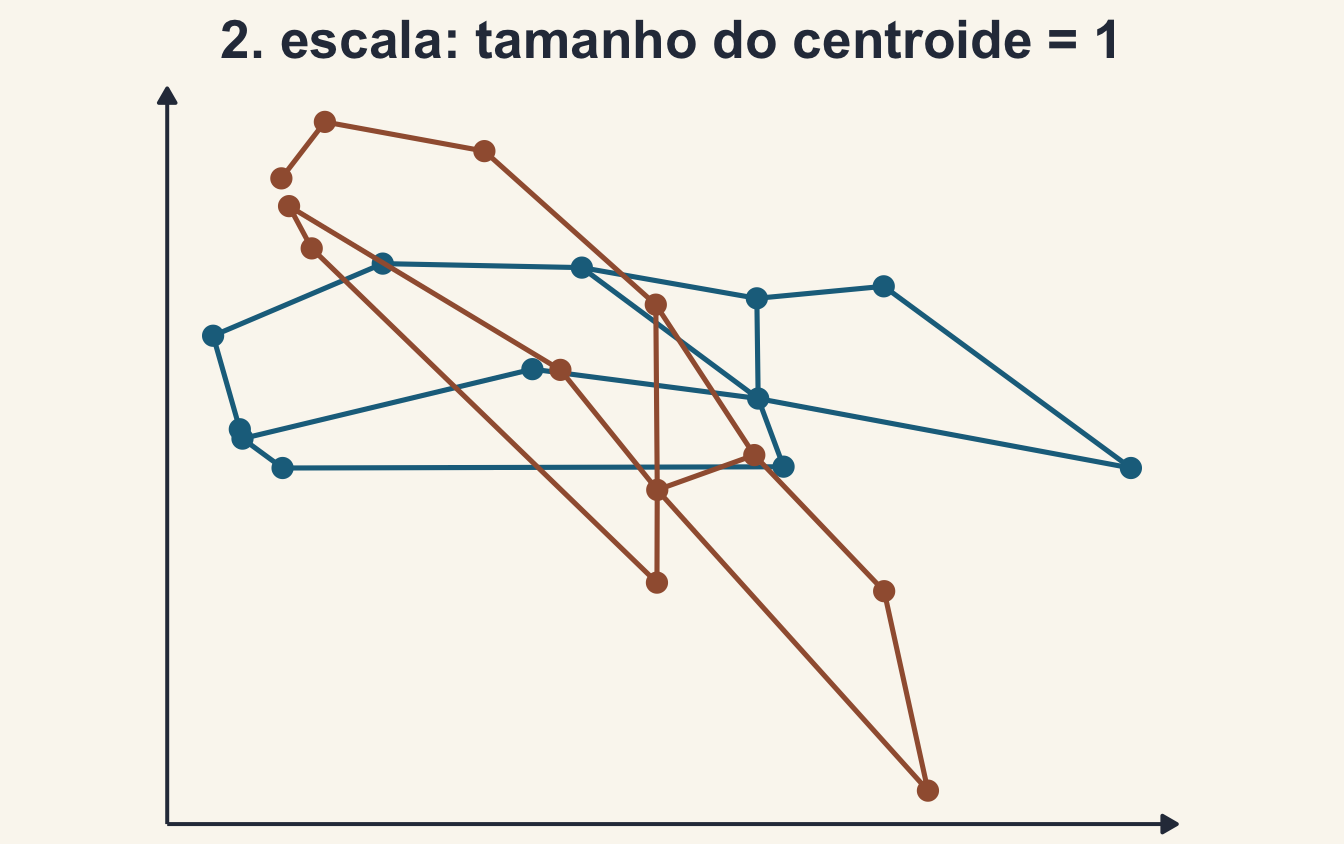
As duas configurações com tamanho do centroide igual a 1; a ferrugem ainda girada.

Tamanho do centroide: a raiz da soma dos quadrados das distâncias de cada marco ao centroide. É a medida de tamanho que fica guardada.

Superposição de Procrustes: rotação
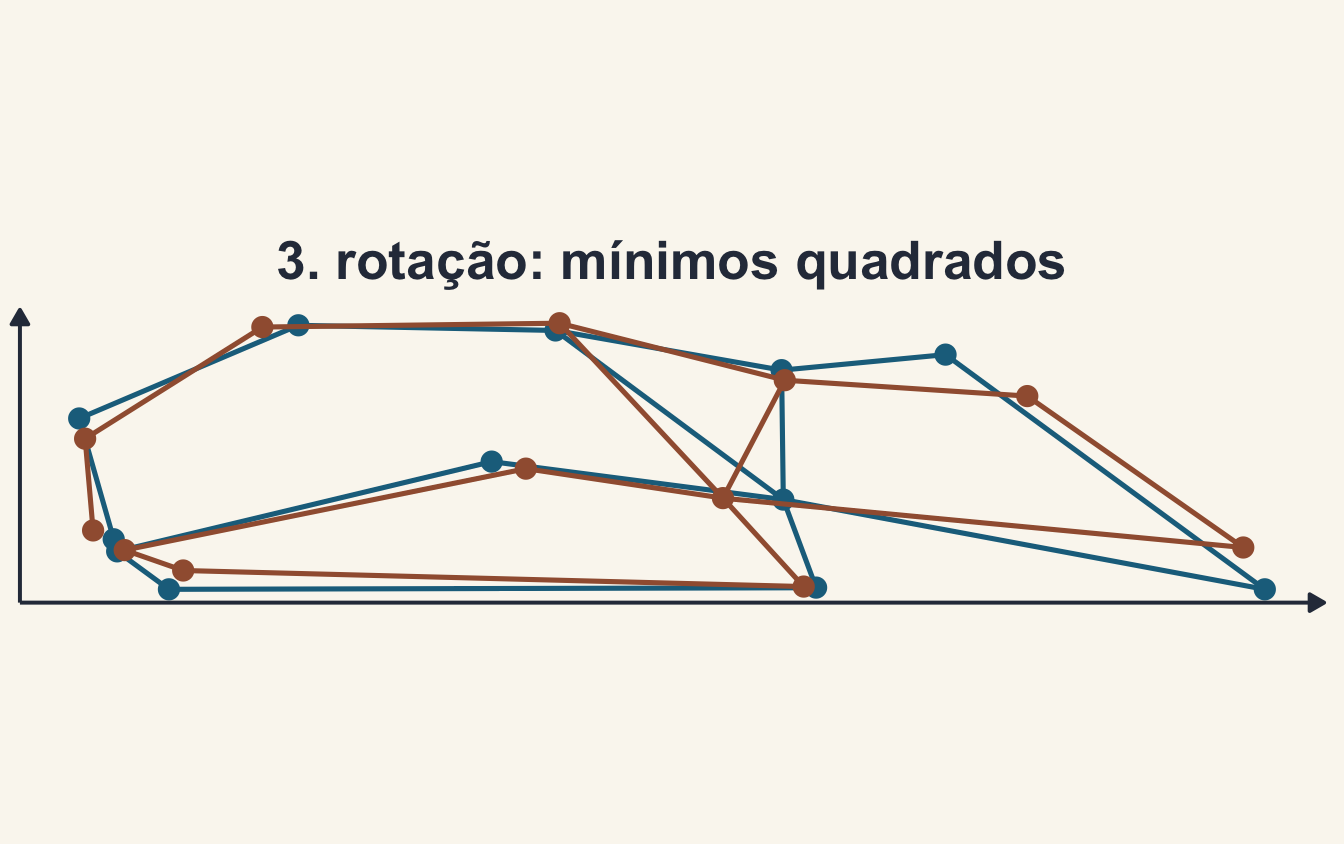
As duas configurações sobrepostas depois da rotação que minimiza a soma dos quadrados das distâncias entre marcos correspondentes; sobram só as diferenças de forma.

A rotação minimiza a soma dos quadrados das distâncias entre os marcos correspondentes. O que sobra é forma.

Todos os exemplares
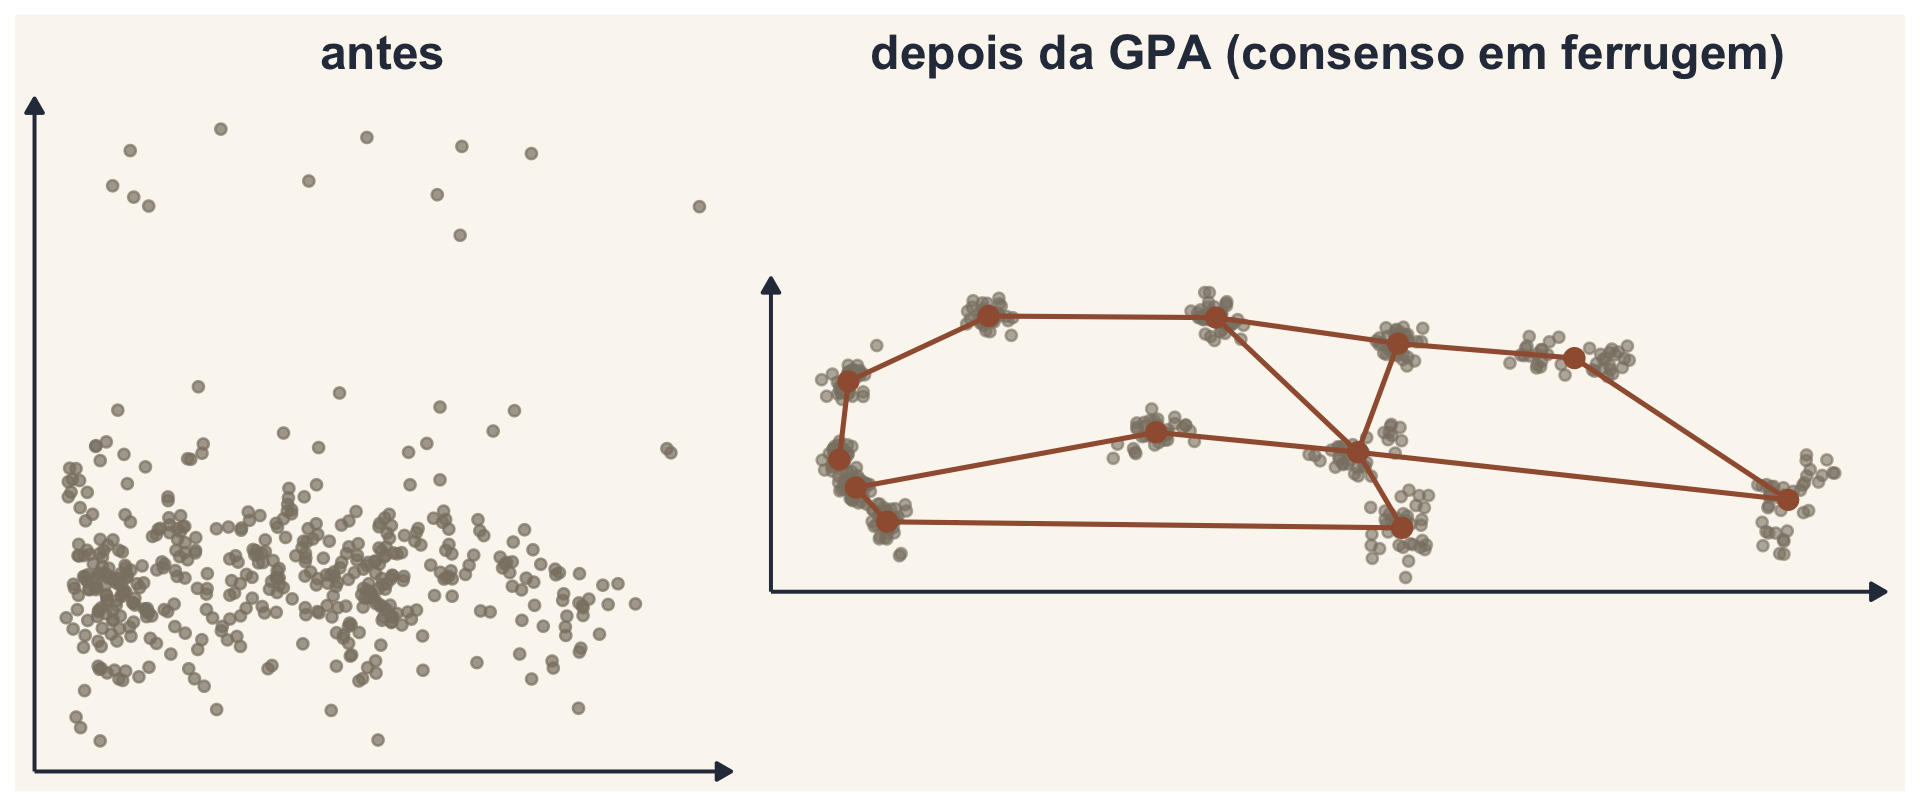
À esquerda, os marcos dos 40 exemplares antes do alinhamento, espalhados; à direita, depois da superposição generalizada de Procrustes, agrupados em torno da configuração de consenso.

gpa <- geomorph::gpagen(plethodon$land)   # superposição generalizada (GPA)

O morfoespaço

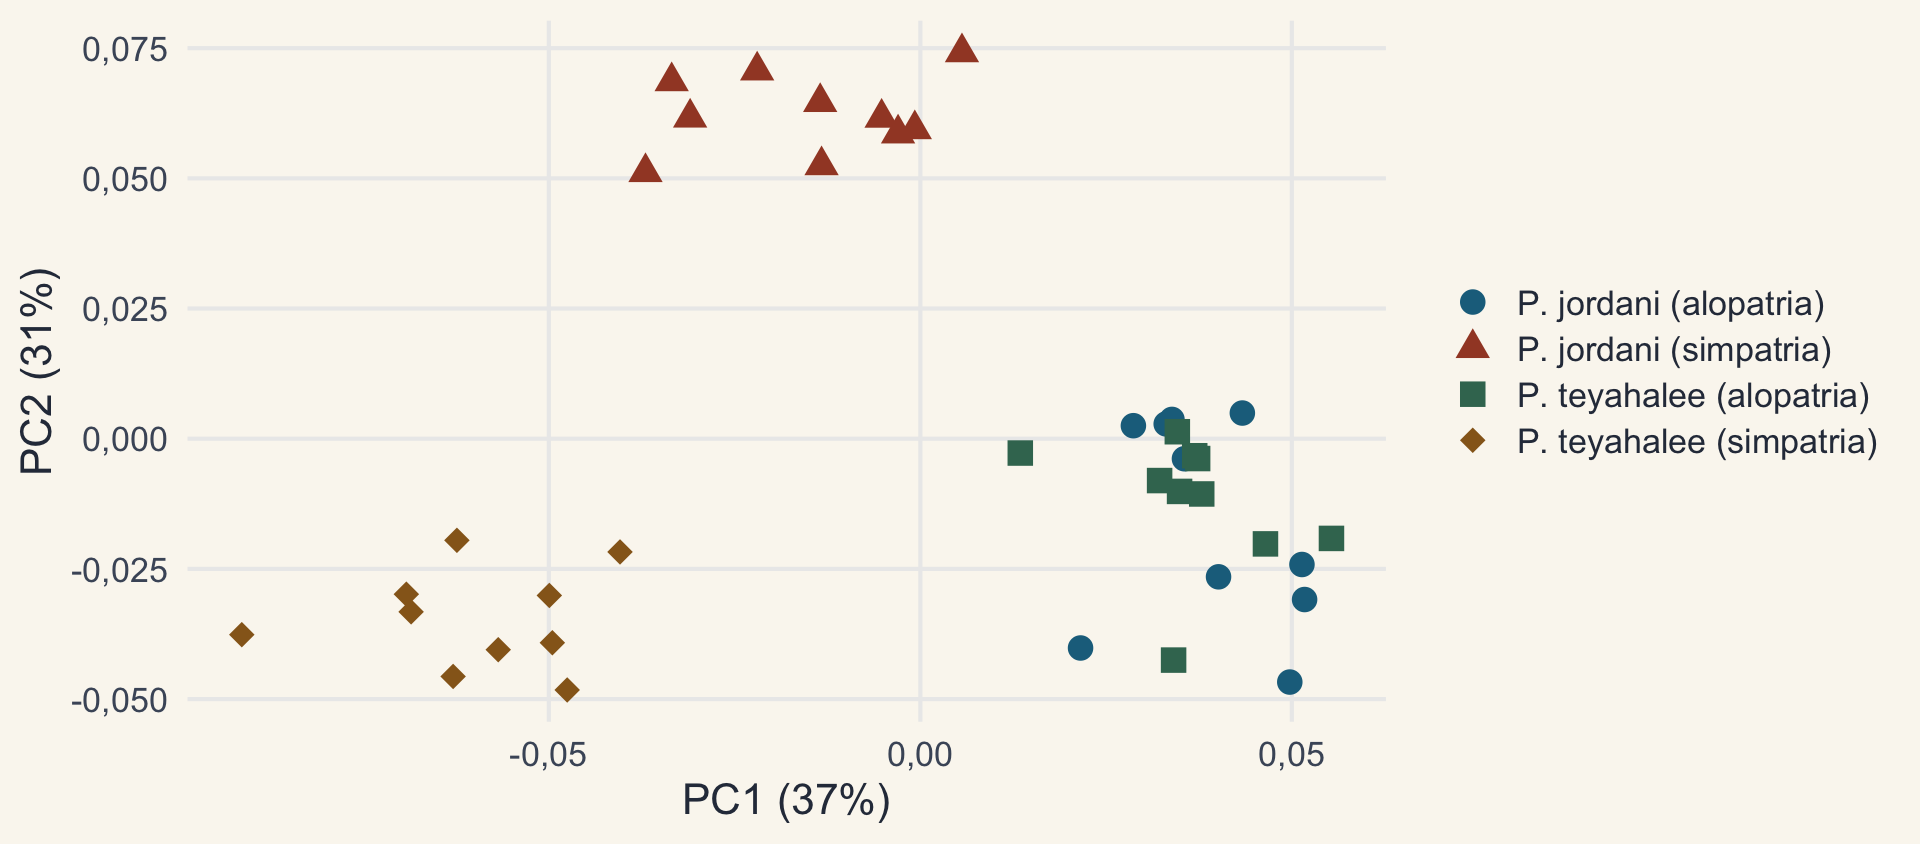
PC1 contra PC2 da forma dos 40 exemplares: os quatro grupos (duas espécies, em alopatria e simpatria) ocupam regiões diferentes; P. jordani em simpatria se separa no PC2.

PCA das coordenadas alinhadas (geomorph::gm.prcomp). Pacote: Adams & Otárola-Castillo (2013); Baken et al. (2021).

2. Sinal, taxa e PGLS multivariados

Há sinal?

Por que multivariado?

O que vimos até aqui descreve o fenótipo por contagens, categorias (ex.: branco, preto) ou medidas lineares (ex.: tamanho do corpo).

E os fenótipos multivariados, como a forma do corpo ou da pata?

  • A seleção pode mudar a forma, não necessariamente o tamanho
  • Evolução correlacionada: um atributo pode mudar não por seleção sobre ele, mas sobre um atributo correlacionado

Revisão: Adams & Collyer (2019), Annu. Rev. Ecol. Evol. Syst. 50: 405–425.

K multivariado

O K de Blomberg (Aula 3) generalizado para dados de alta dimensão: as distâncias entre espécies no espaço da forma em vez de um atributo só.

geomorph::physignal(gpa$coords, arvore, iter = 999)

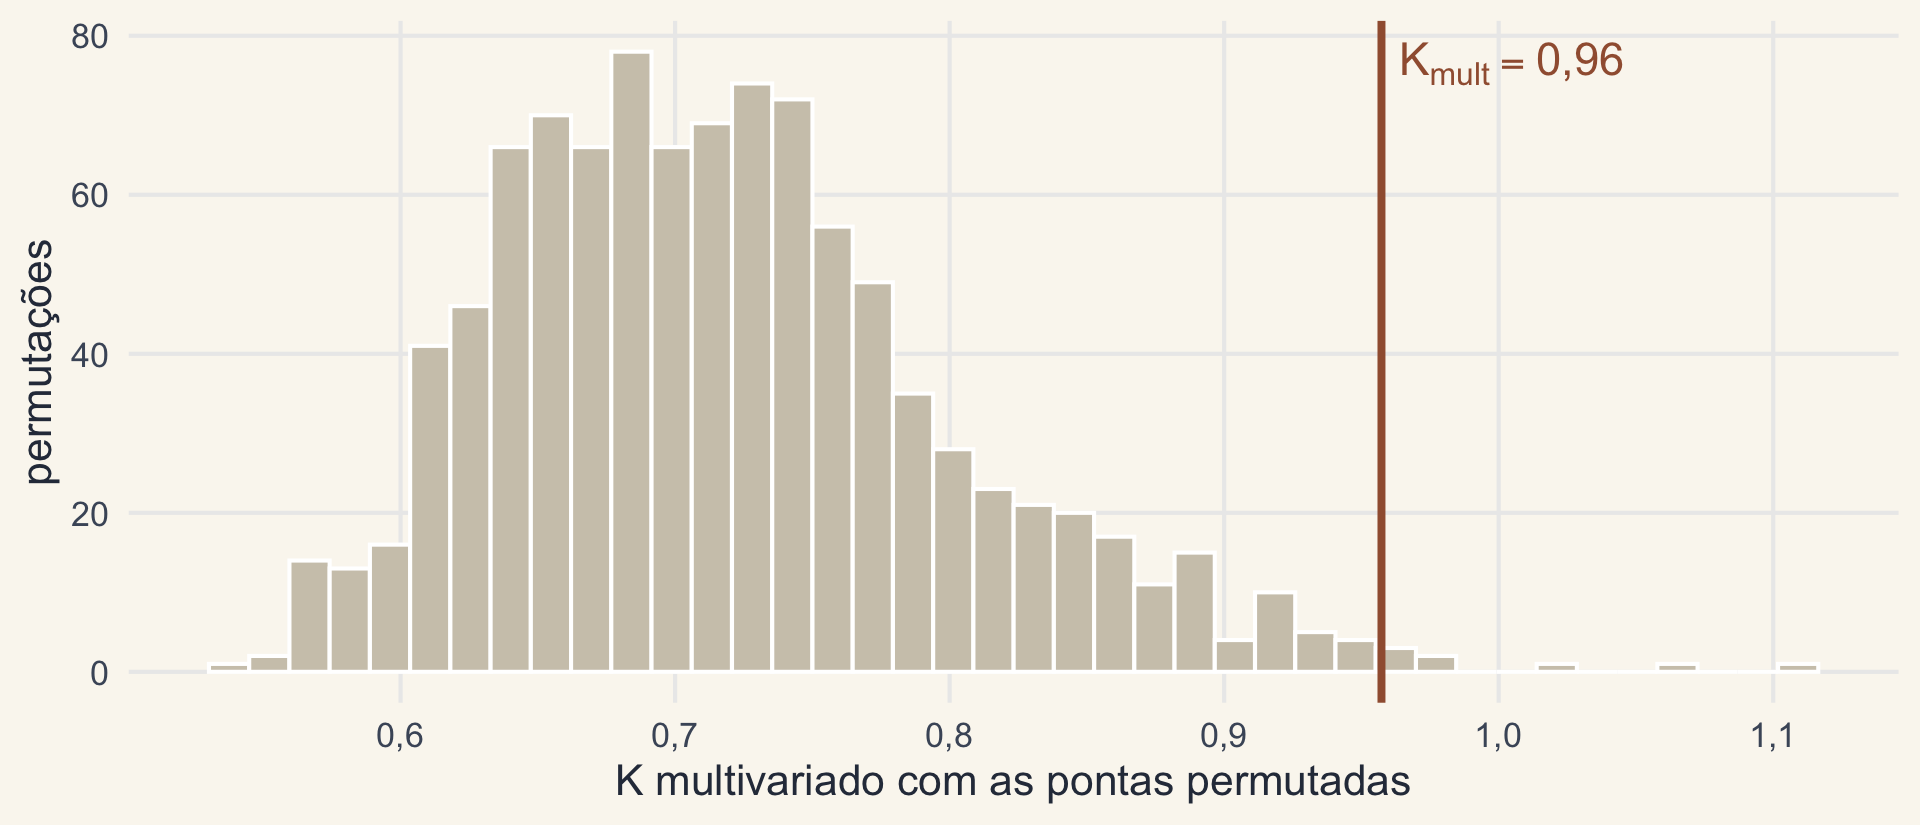
Nas 9 espécies de Plethodon (geomorph::plethspecies): Kmult = 0,96, p = 0,008.

Adams (2014b), Syst. Biol. 63: 685–697.

A distribuição nula

Histograma do K multivariado em 999 permutações das pontas, quase todo entre 0,55 e 0,9, com o valor observado, 0,96, à direita.

Permutando as formas entre as pontas da árvore, raramente se chega a um K tão alto quanto o observado.

Taxa evolutiva multivariada

A taxa do BM (σ²) generalizada para a forma, a partir das distâncias de Procrustes corrigidas pela filogenia (N espécies):

\[\sigma^2_{\text{mult}} = \frac{\mathbf{PD}'_{U,0}\,\mathbf{PD}_{U,0}}{N}\]

  • Compara taxas entre clados ou grupos (geomorph::compare.evol.rates)
  • Ex.: espécies do grupo P. cinereus com distribuição restrita teriam taxas maiores de evolução da forma

Adams (2014a), Syst. Biol. 63: 166–177.

PGLS multivariado

O PGLS (Aula 5) com uma resposta de alta dimensão: a forma inteira como variável resposta, com permutação dos resíduos.

gdf <- geomorph::geomorph.data.frame(gpa, phy = arvore)
geomorph::procD.pgls(coords ~ log(Csize), phy = phy, data = gdf, iter = 999)

Alometria nos Plethodon: R² = 0,15, p = 0,28. Com 9 espécies, nenhuma relação detectável entre forma e tamanho.

Adams (2014c), Evolution 68: 2675–2688; Collyer & Adams (2018), pacote RRPP.

Filomorfoespaço da forma

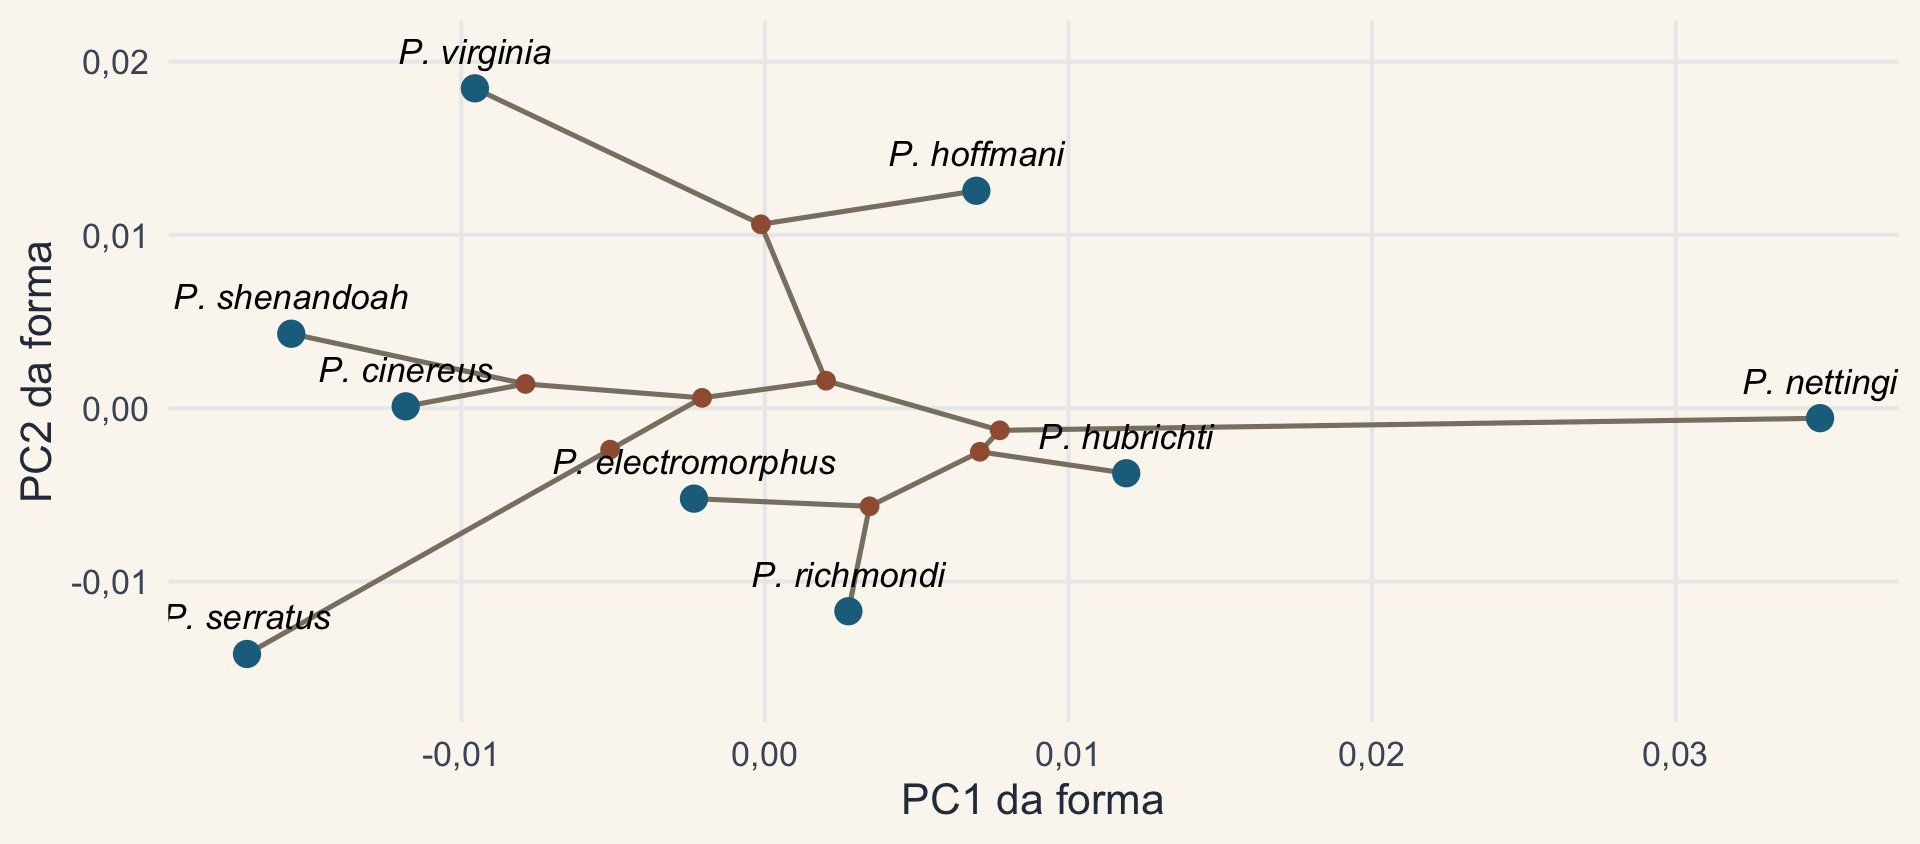
PC1 contra PC2 da forma das nove espécies de Plethodon, com a árvore projetada: os nós internos, em ferrugem, nas estimativas por máxima verossimilhança, ligados pelos ramos.

A árvore no espaço da forma, com os nós estimados por ML (Aula 7); geomorph::gm.prcomp(coords, phy = arvore) faz o mesmo.

3. Modelos multivariados

Como evolui?

Seleção de modelos para atributos multivariados

  • Os modelos da Aula 4 (BM, OU, EB) com uma matriz de taxas em vez de um σ²: variâncias e covariâncias evolutivas entre os atributos
  • Com muitas variáveis (marcos), a verossimilhança comum falha (p > n): verossimilhança penalizada e o critério GIC
  • Pacote mvMORPH

Adams & Collyer (2018), Syst. Biol. 67: 14–31; Clavel, Aristide & Morlon (2019), Syst. Biol. 68: 93–116; Clavel, Escarguel & Merceron (2015), Methods Ecol. Evol. 6: 1311–1319.

A forma dos Plethodon

mvMORPH::mvgls(Y ~ 1, tree = arvore, model = "BM", method = "PL-LOOCV")  # e "OU", "EB"
Modelo GIC ΔGIC
BM -1479,1 0,0
EB -1478,6 0,4
OU -1477,1 2,0

Com 9 espécies, os três modelos ficam praticamente empatados: não há base para preferir algo além do BM.

Uma matriz de taxas por regime

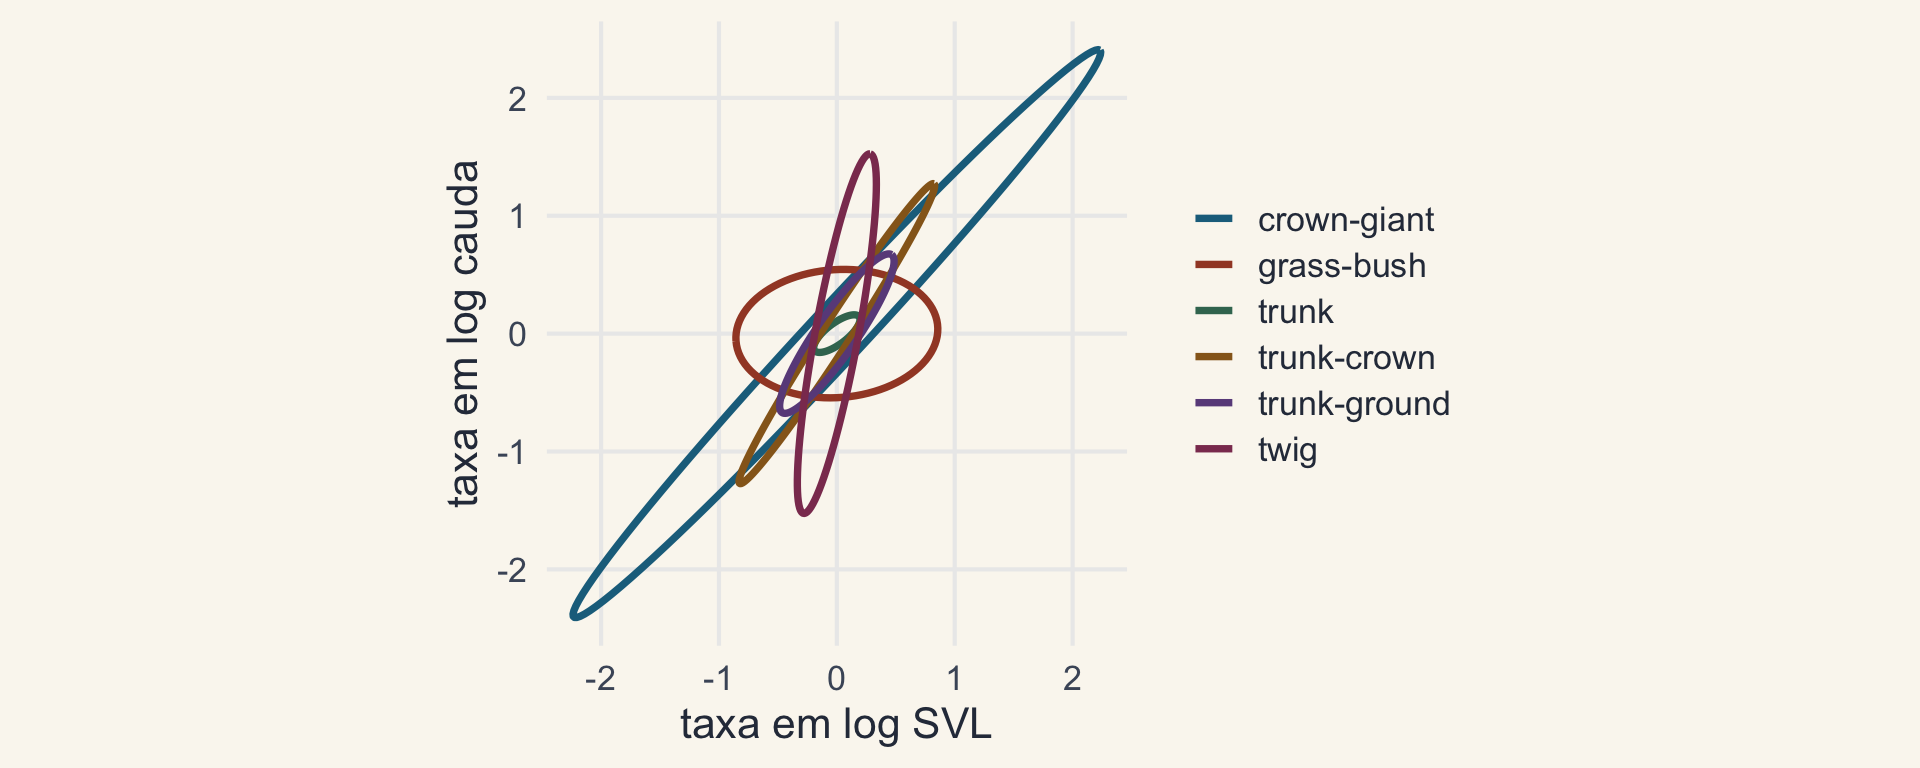
Elipses das matrizes de taxas evolutivas de log SVL e log cauda para os seis ecomorfos dos Anolis: crown-giant e twig com elipses grandes e alongadas, trunk quase um ponto.

Anolis, log SVL e log cauda: uma matriz de taxas por ecomorfo (BMM) vence uma matriz só (AICc -142,3 × -55,5). A elipse mostra as taxas e a correlação evolutiva de cada regime.

Restrições sobre as matrizes
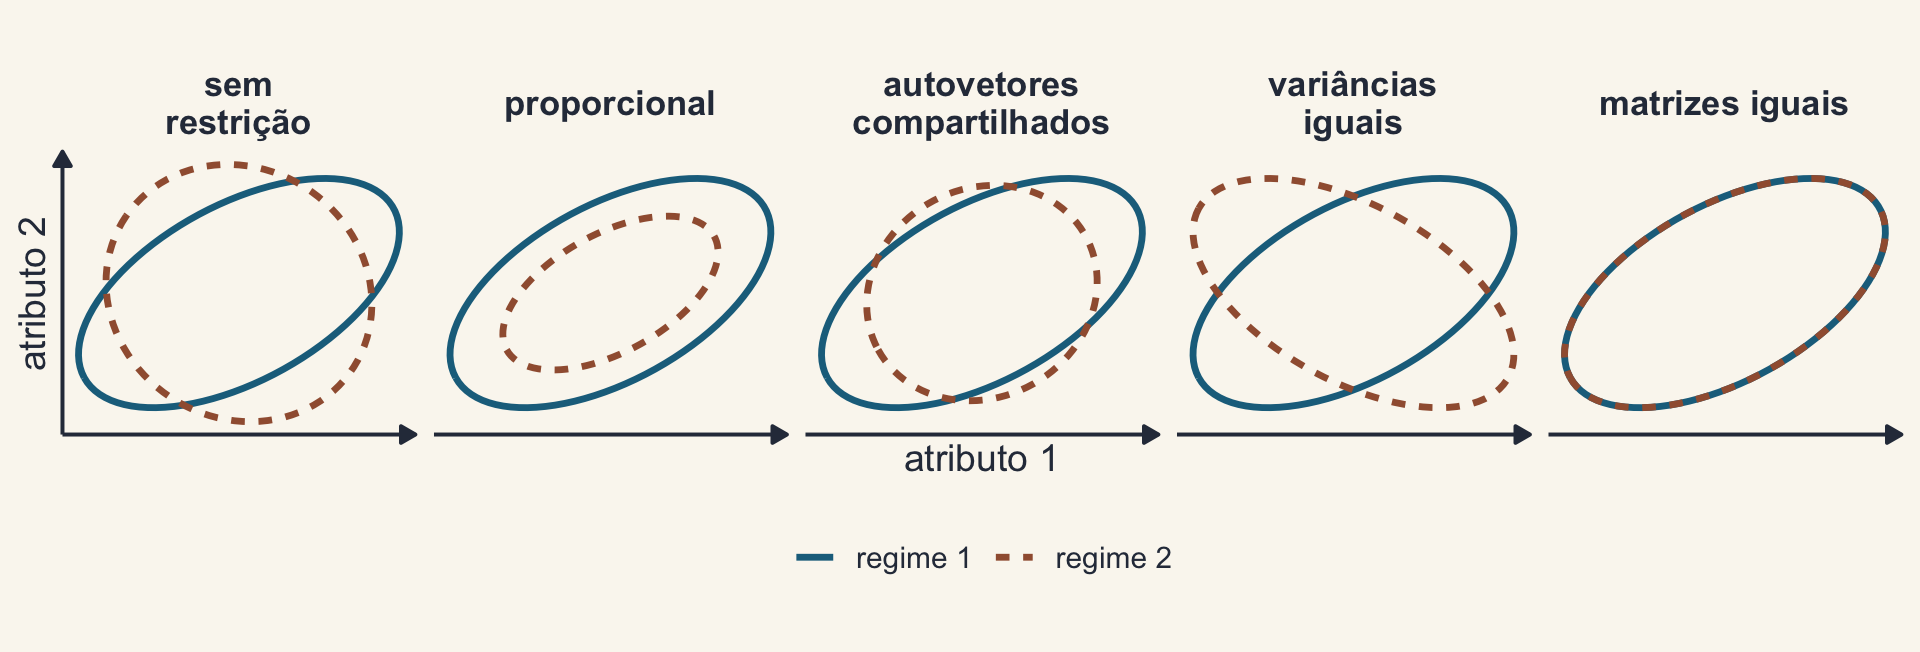
Cinco painéis com as elipses de dois regimes: sem restrição; proporcionais; com os mesmos autovetores; com as mesmas variâncias; e iguais.

mvMORPH::mvBM(arvore, X, model = "BMM", param = list(constraint = "proportional"))
# também "shared", "correlation", "variance", "diagonal", "equal"...

Redesenho da Fig. 2 de Clavel, Escarguel & Merceron (2015).

Convergência e mudanças de ótimo

  • Cérebro dos macacos do Novo Mundo: a forma converge em linhagens com ecologia parecida (Aristide et al. 2016); EB preferido para a forma do cérebro com verossimilhança penalizada (Clavel et al. 2019)
  • PhylogeneticEM: detecta, sem hipótese prévia, onde os ótimos de um OU multivariado mudam na árvore, levando em conta a correlação entre os atributos; nos Anolis, os grupos encontrados foram comparados aos ecomorfos de Mahler et al. (2013)

Aristide et al. (2016), PNAS 113: 2158–2163; Bastide et al. (2018), Syst. Biol. 67: 662–680.

4. Modularidade e integração

Como evolui?

Modularidade e integração

  • Integração: partes do fenótipo variam juntas
  • Módulos: conjuntos de atributos integrados entre si e relativamente independentes dos outros
  • Perguntas: testar hipóteses de módulos; estimar e comparar taxas de evolução entre módulos

RV × CR: Adams (2016), Methods Ecol. Evol. 7: 565–572.

Nos Plethodon

Partição de exemplo do geomorph: marcos 1–5 × 6–12.

Teste Estatística p
Modularidade (modularity.test) CR = 1,19 0,71
Integração (integration.test) PLS r = 0,91 = 0,001
Taxas por módulo (compare.multi.evol.rates, 9 espécies) razão = 1,30 0,47

Fortemente integradas, sem sinal de modularidade, em ritmos parecidos.

Taxas por módulo

  • Taxas multivariadas (σ²mult) para cada módulo, comparadas por simulação na árvore
  • Ex.: peixes-lanterna (Myctophidae): as taxas diferem entre módulos do corpo, o que sugere uma relação entre taxas e modularidade

Denton & Adams (2015), Evolution 69: 2425–2440.

Exemplos

Estudo Ideia
Arnold et al. (2017), BMC Evol. Biol. redes musculoesqueléticas e disparidade do pescoço dos mamíferos
Vidal-García & Keogh (2017), BMC Evol. Biol. crânio conservado e membros lábeis numa radiação de sapos (dieta, locomoção, escavação)

Módulos no pescoço dos mamíferos

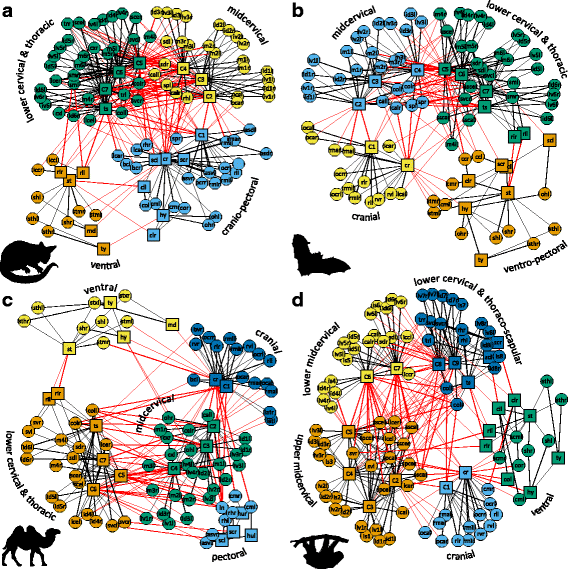
Figura 4 de Arnold et al. (2017): redes anatômicas do pescoço de quatro mamíferos (gambá-de-cauda-escovada, morcego, camelo-bactriano e preguiça-de-três-dedos), com os músculos e ossos como nós e os módulos de conectividade em cores diferentes.

Fig. 4 de Arnold et al. (2017), BMC Evol. Biol. 17: 251 (CC BY 4.0).

Crânio conservado, membros lábeis
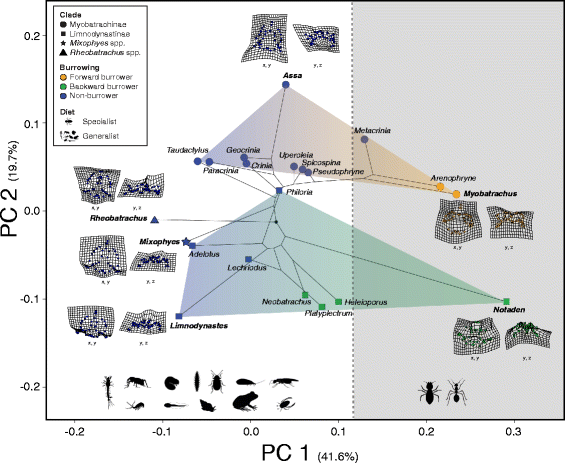
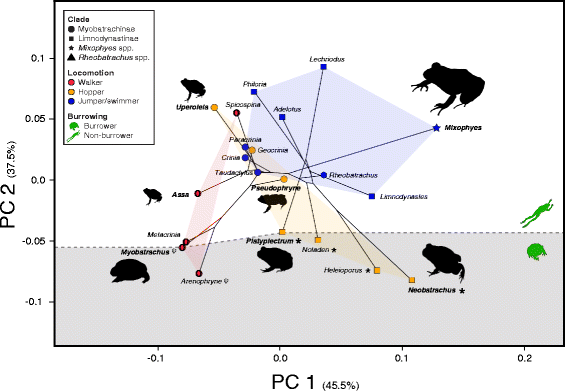
Figura 3 de Vidal-García e Keogh (2017): filomorfoespaço da forma do crânio dos sapos miobatraquídeos; os quatro clados formam grupos separados, com formas diferentes para cada clado e cores para o hábito escavador.

Crânio: os clados ficam separados

Figura 4 de Vidal-García e Keogh (2017): filomorfoespaço da forma dos membros; os clados se misturam e as espécies se agrupam pelo modo de locomoção (andador, saltador, escavador).

Membros: agrupam pela locomoção

Figs. 3 e 4 de Vidal-García & Keogh (2017), BMC Evol. Biol. 17: 165 (CC BY 4.0).

5. Ordenação filogenética

Estão associados?

PCA filogenética

  • A PCA comum trata as espécies como independentes; a filogenética usa a matriz C (Aula 2) para estimar as covariâncias evolutivas
  • Os eixos refletem a covariação evolutiva entre os atributos
phytools::phyl.pca(arvore, log(X), method = "BM", mode = "cov")

Revell (2009), Evolution 63: 3258–3268.

Nos Anolis

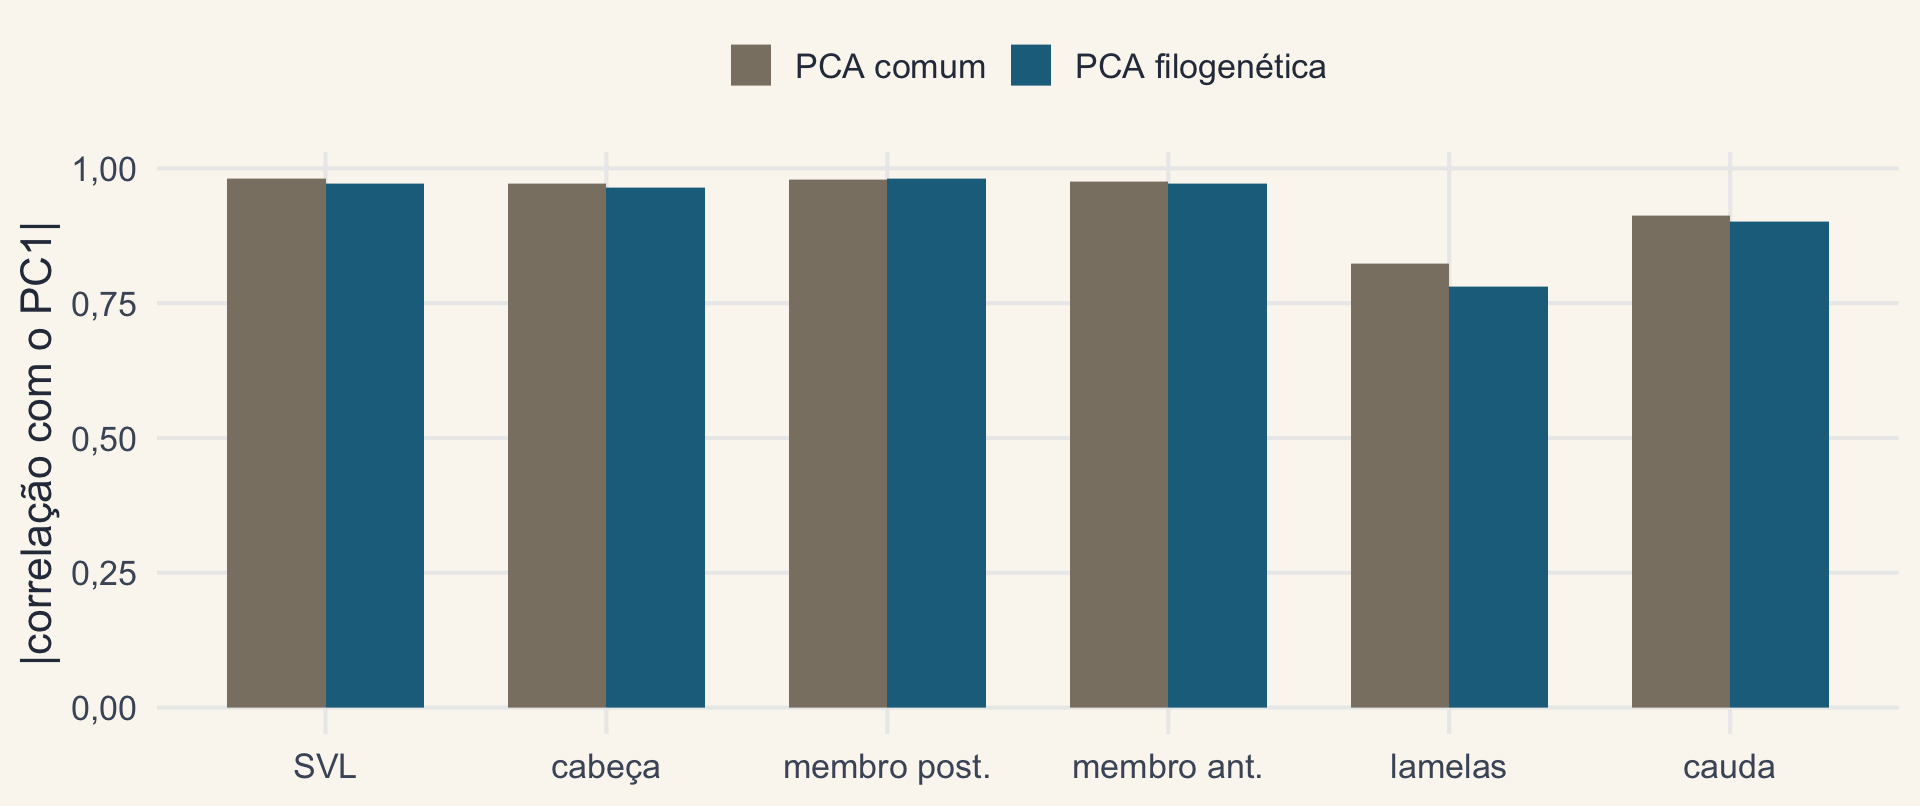
Barras da correlação de cada um dos seis atributos dos Anolis com o PC1, na PCA comum e na filogenética: quase iguais, todas altas, o PC1 é o tamanho nas duas.

Aqui as duas dão quase o mesmo PC1, o tamanho (89% da variância na filogenética, 91% na comum). A diferença aparece quando há sinal forte e clados com médias muito distintas.

PACA: alinhar os eixos à filogenia

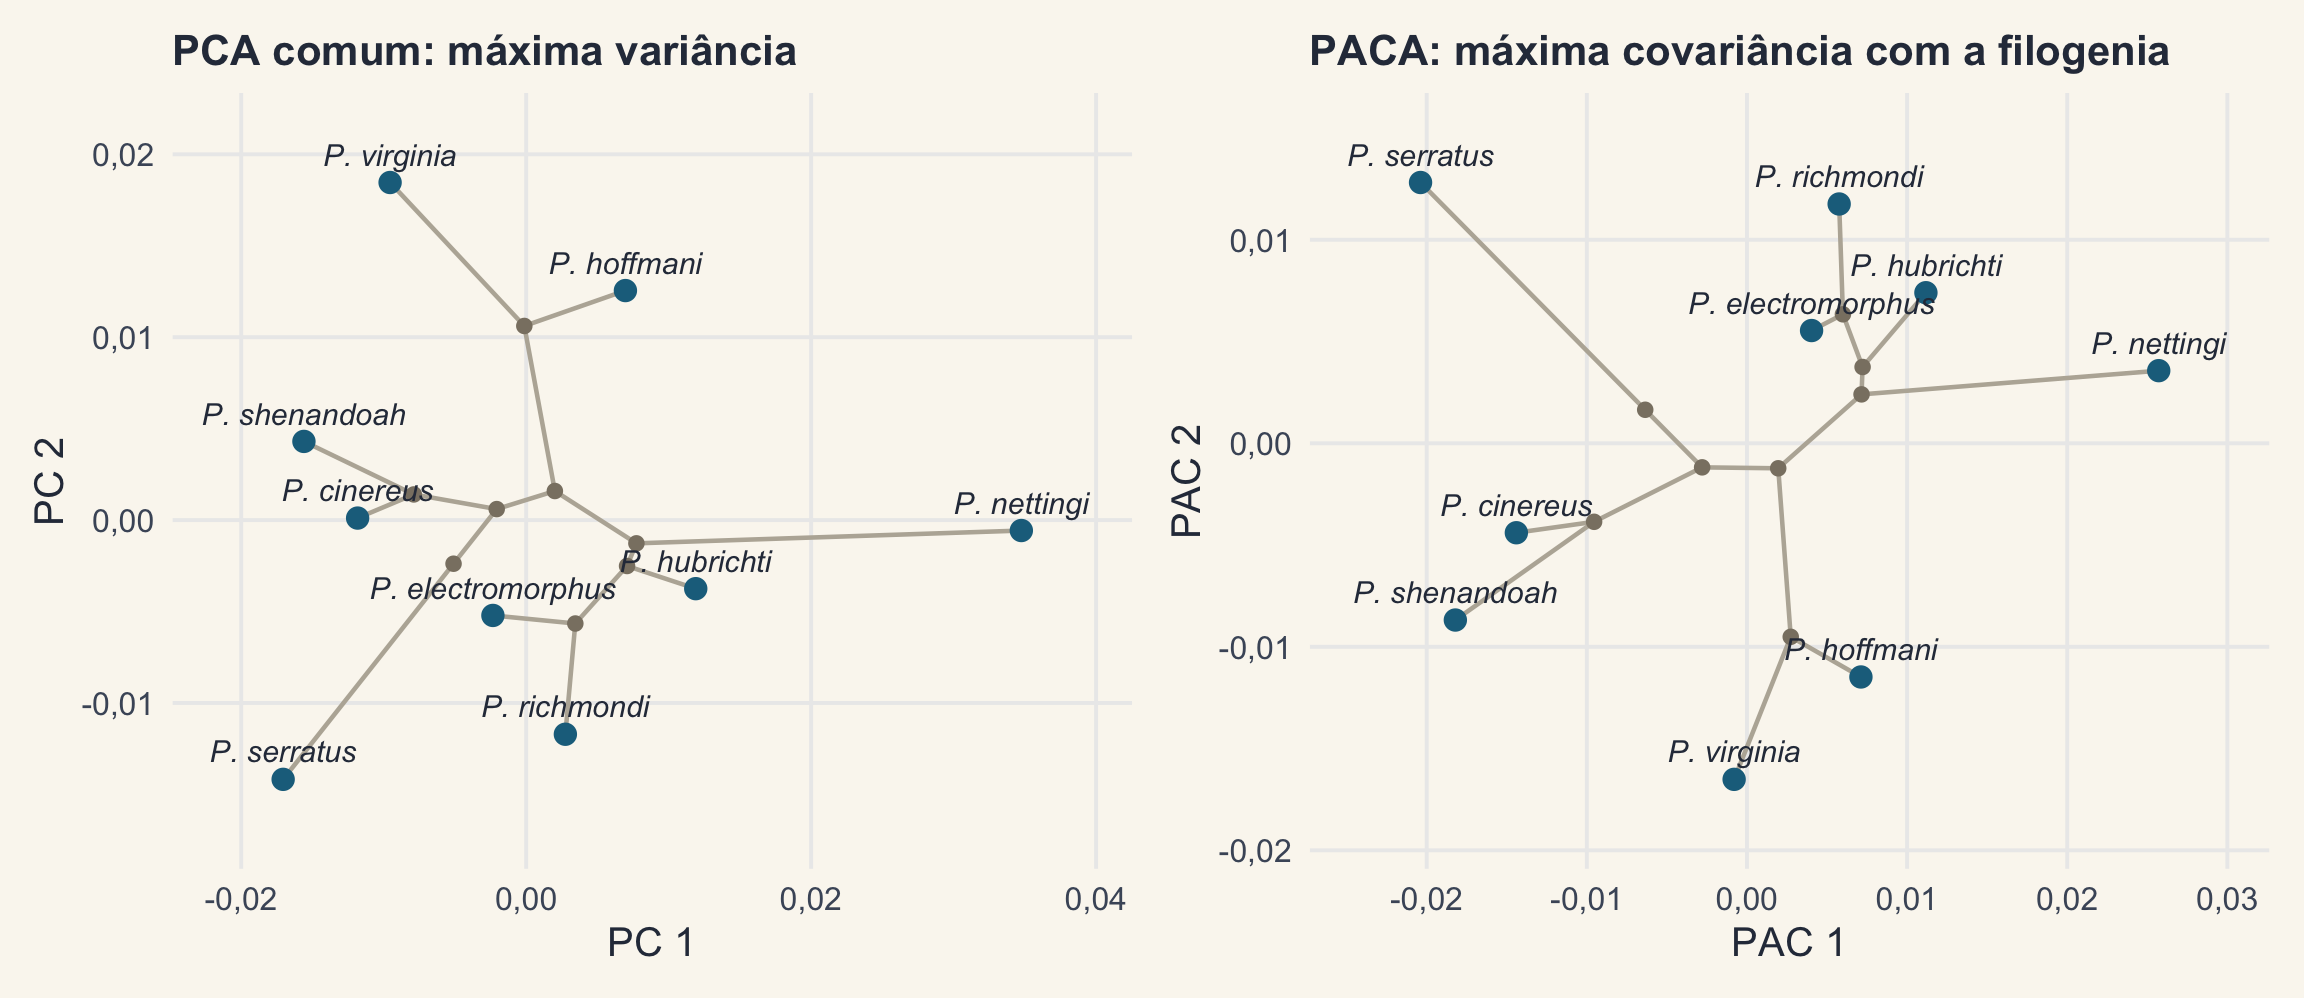
  • A PCA acha as direções de máxima variância; a PACA (phylogenetically aligned component analysis), as de máxima covariância entre os dados e a filogenia
  • O primeiro eixo mostra a direção em que o sinal filogenético é mais forte; a PCA filogenética, ao contrário, procura a variação depois de descontar a filogenia
  • Serve para ver o sinal: se o PAC 1 concentra pouca covariância, a filogenia explica pouco da forma
geomorph::gm.prcomp(coords, phy = arvore, align.to.phy = TRUE)

Collyer & Adams (2021), Methods Ecol. Evol. 12: 359–372.

PCA × PACA nos Plethodon

Dois filomorfoespaços da forma da cabeça de nove espécies de Plethodon. À esquerda, a PCA comum, com P. nettingi isolada no PC1. À direita, a PACA, com P. serratus e P. nettingi nos extremos do PAC 1 e as espécies reorganizadas no espaço.

O PAC 1 concentra 66% da covariância com a filogenia; K de Blomberg no eixo 1: 1,02 na PCA, 1,50 na PACA.

Para fechar

Onde estamos

O mapa dos métodos completo, com a linha multivariada destacada.

Leituras

Antes de usar qualquer método, leia o artigo que o propôs.

Agora é com vocês

Pintura Leitura, de Almeida Júnior: uma moça de vestido claro lê um livro sentada numa varanda. Legenda: 22 coordenadas, 9 espécies; verossimilhança penalizada.

22 coordenadas, 9 espécies Verossimilhança penalizada, por favor

Almeida Júnior, Leitura (1892), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 8 e o desafio.