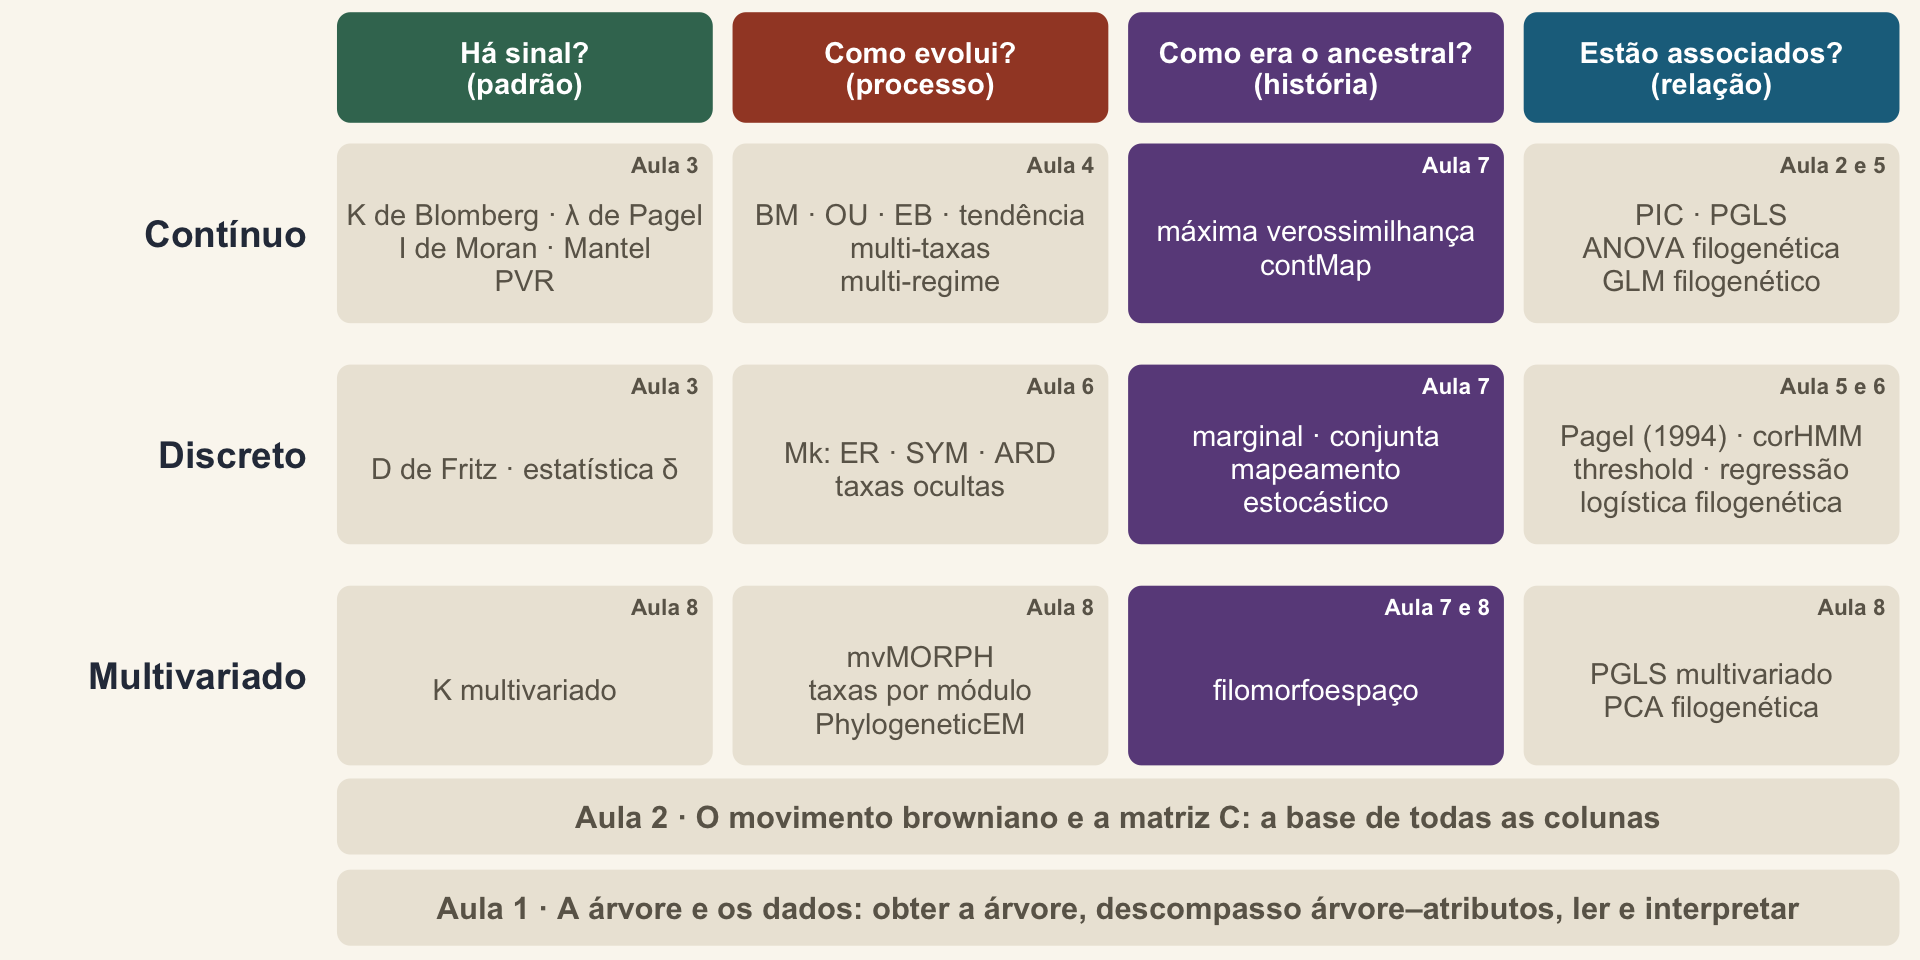
Estados ancestrais e visualização
Aula 7 · Métodos Filogenéticos Comparativos · PPGBA/UFMS
A árvore e o atributo
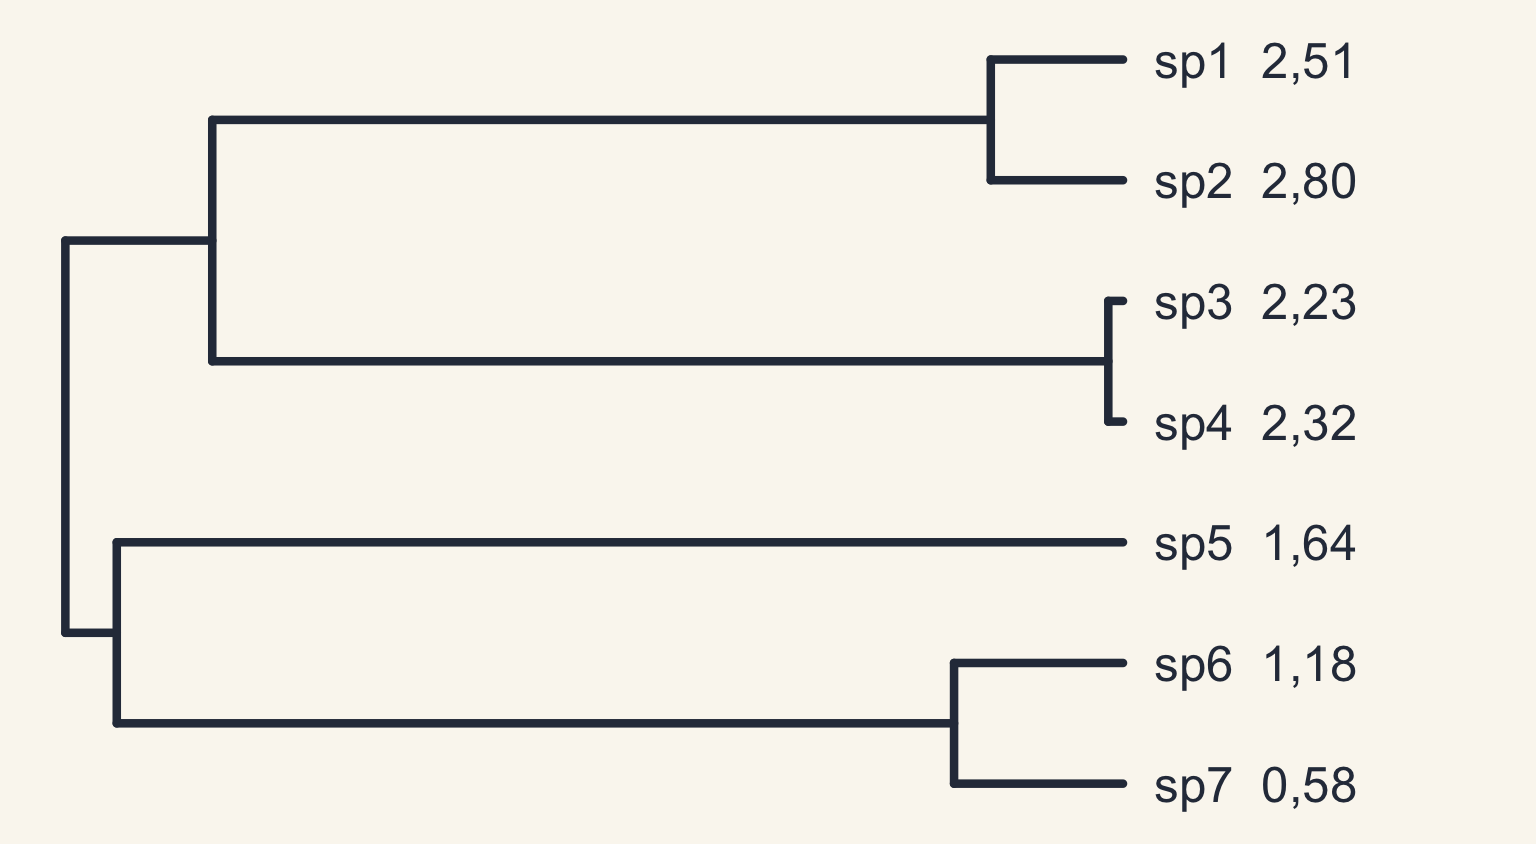
O atributo A é contínuo: pense nele como o tamanho do corpo (em log) de cada espécie.
E nos nós?
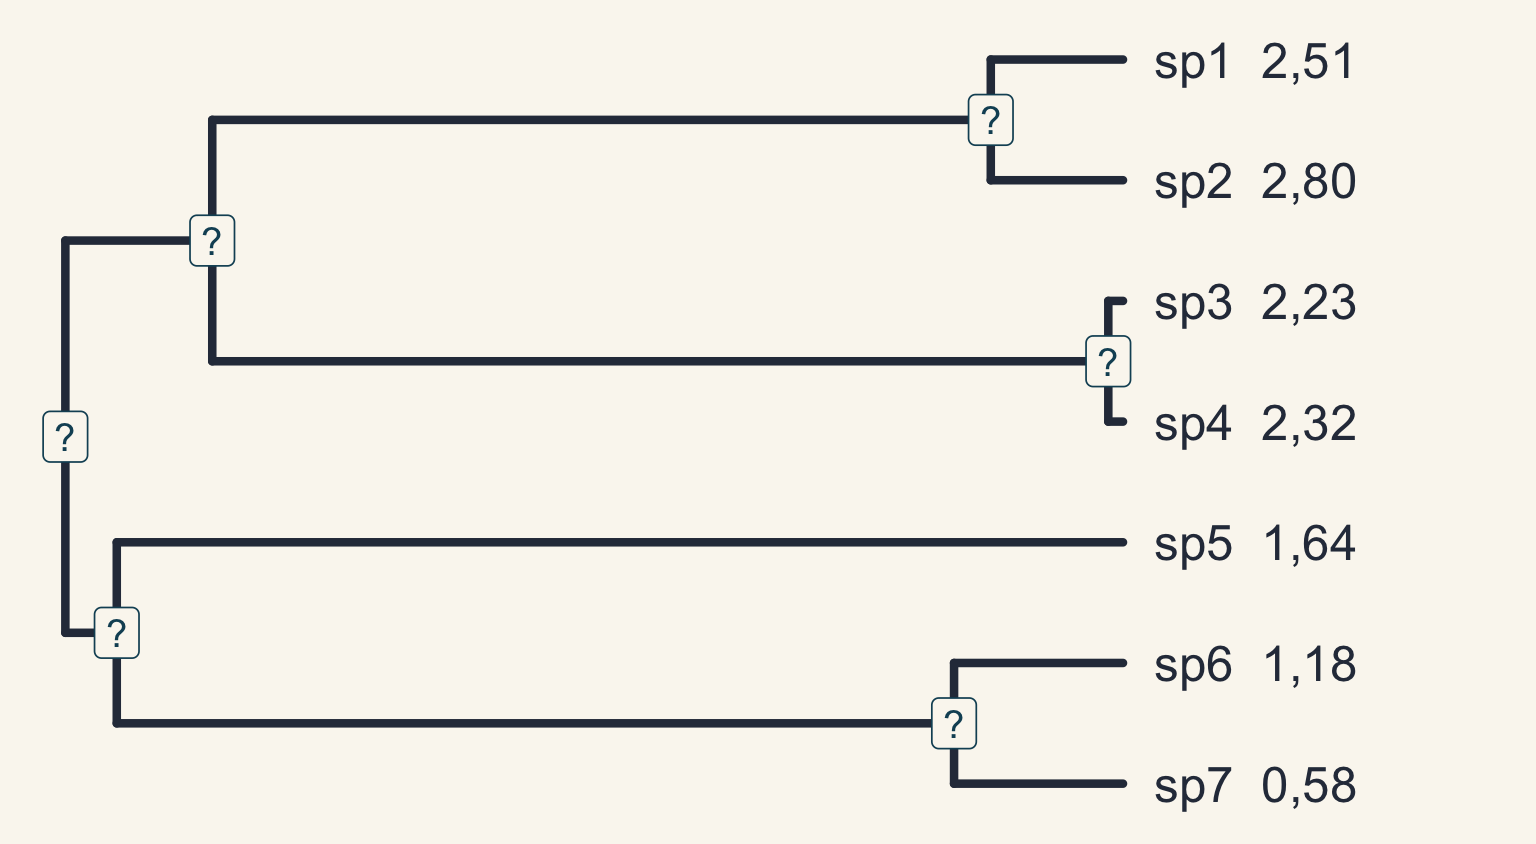
Inferir como os atributos mudaram ao longo do tempo.
As estimativas
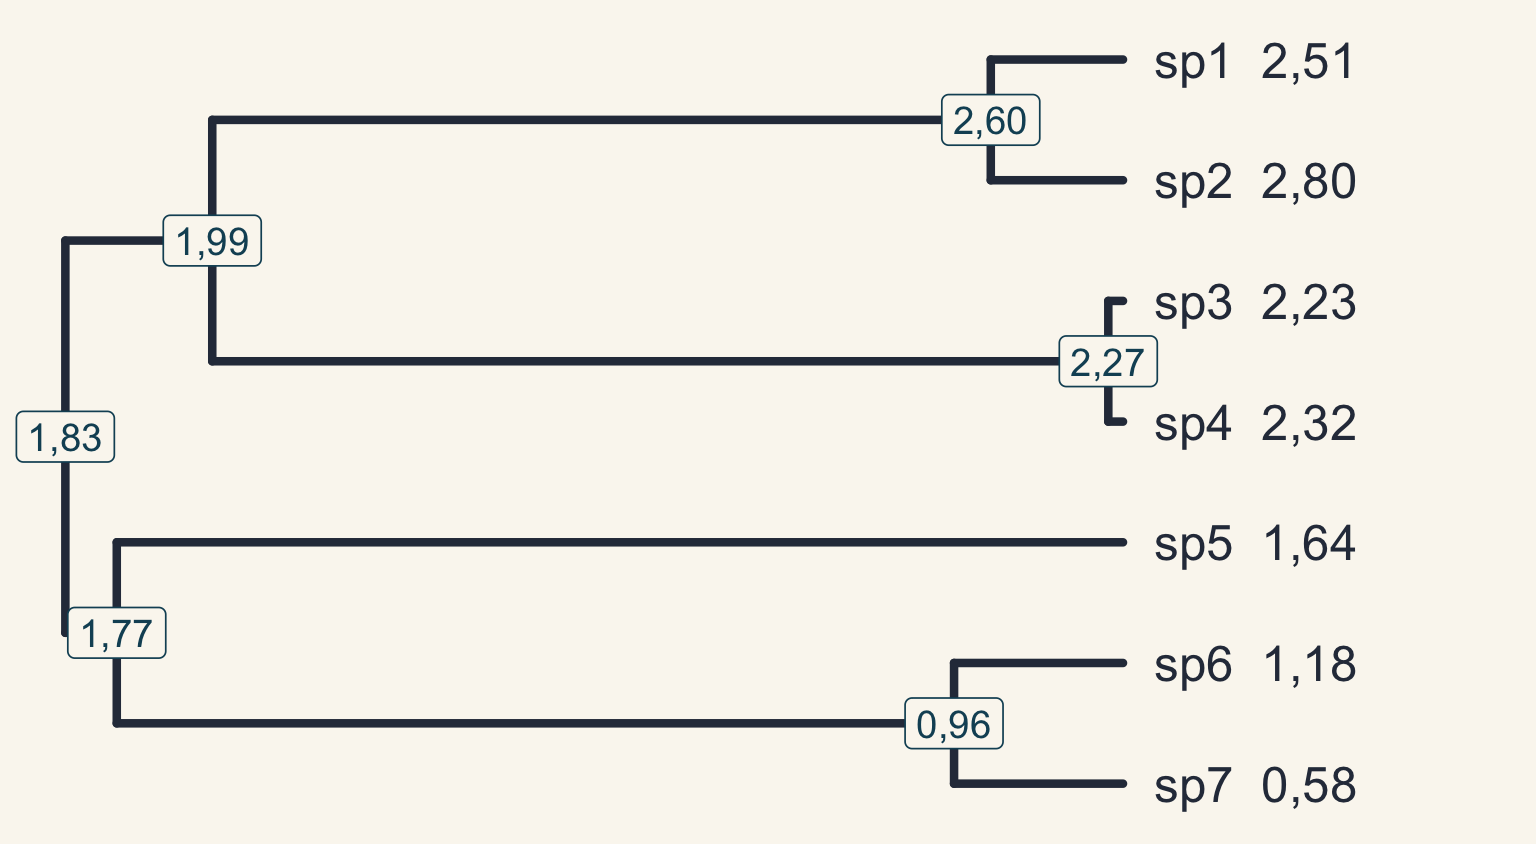
Inferir como os atributos mudaram e visualizar padrões macroevolutivos complexos.
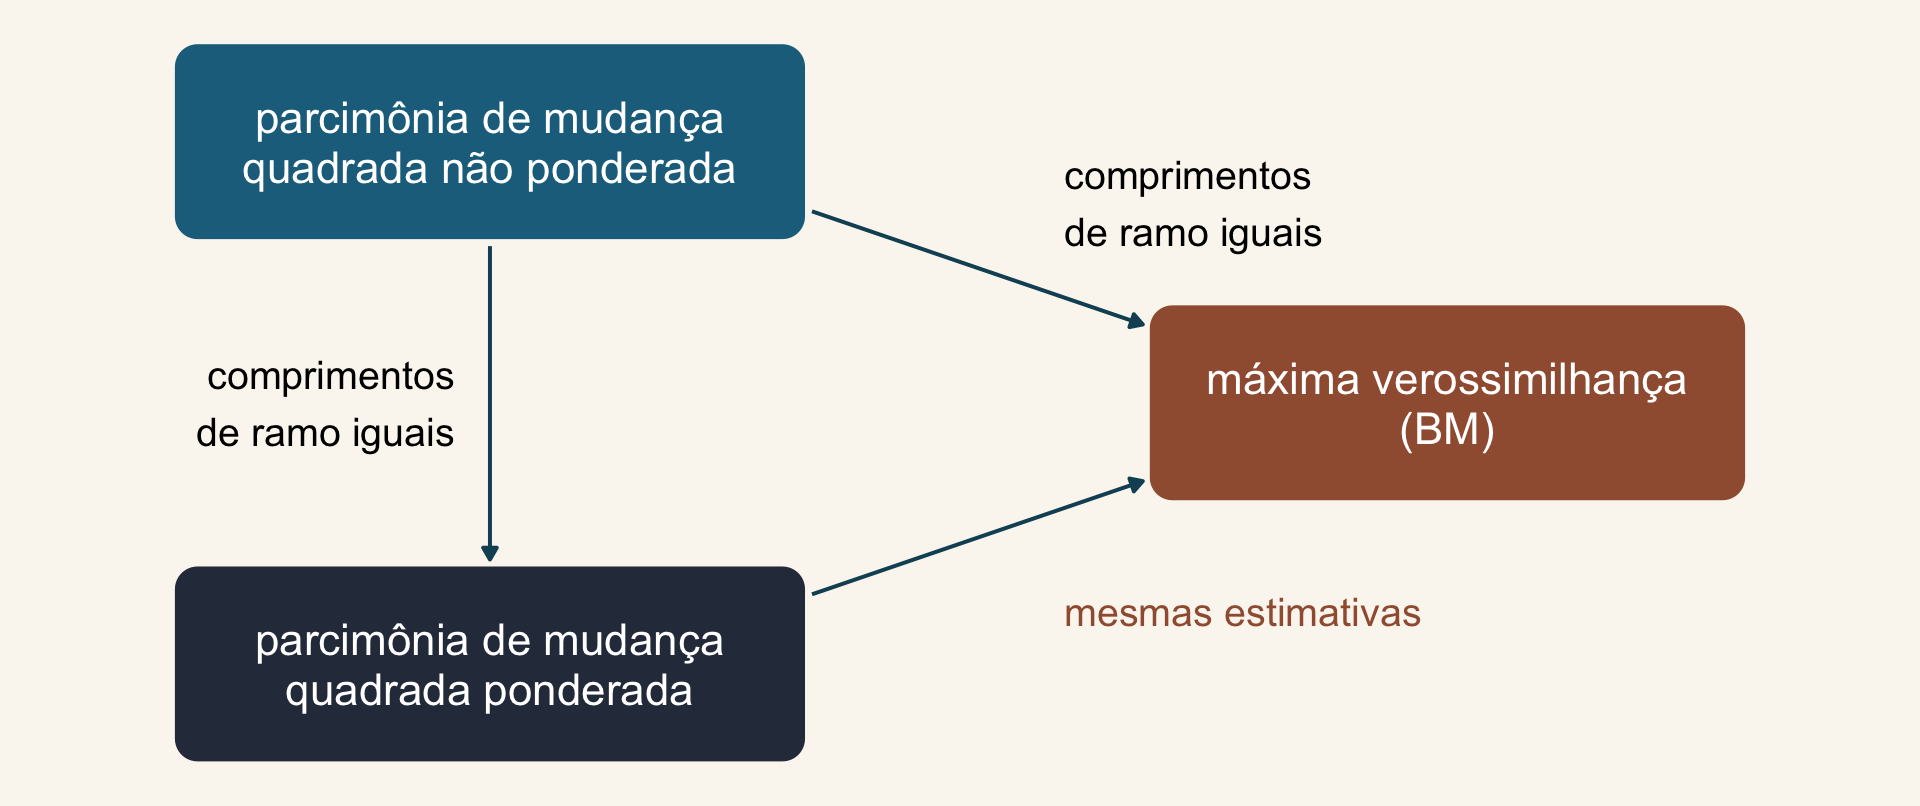
Quando os métodos coincidem
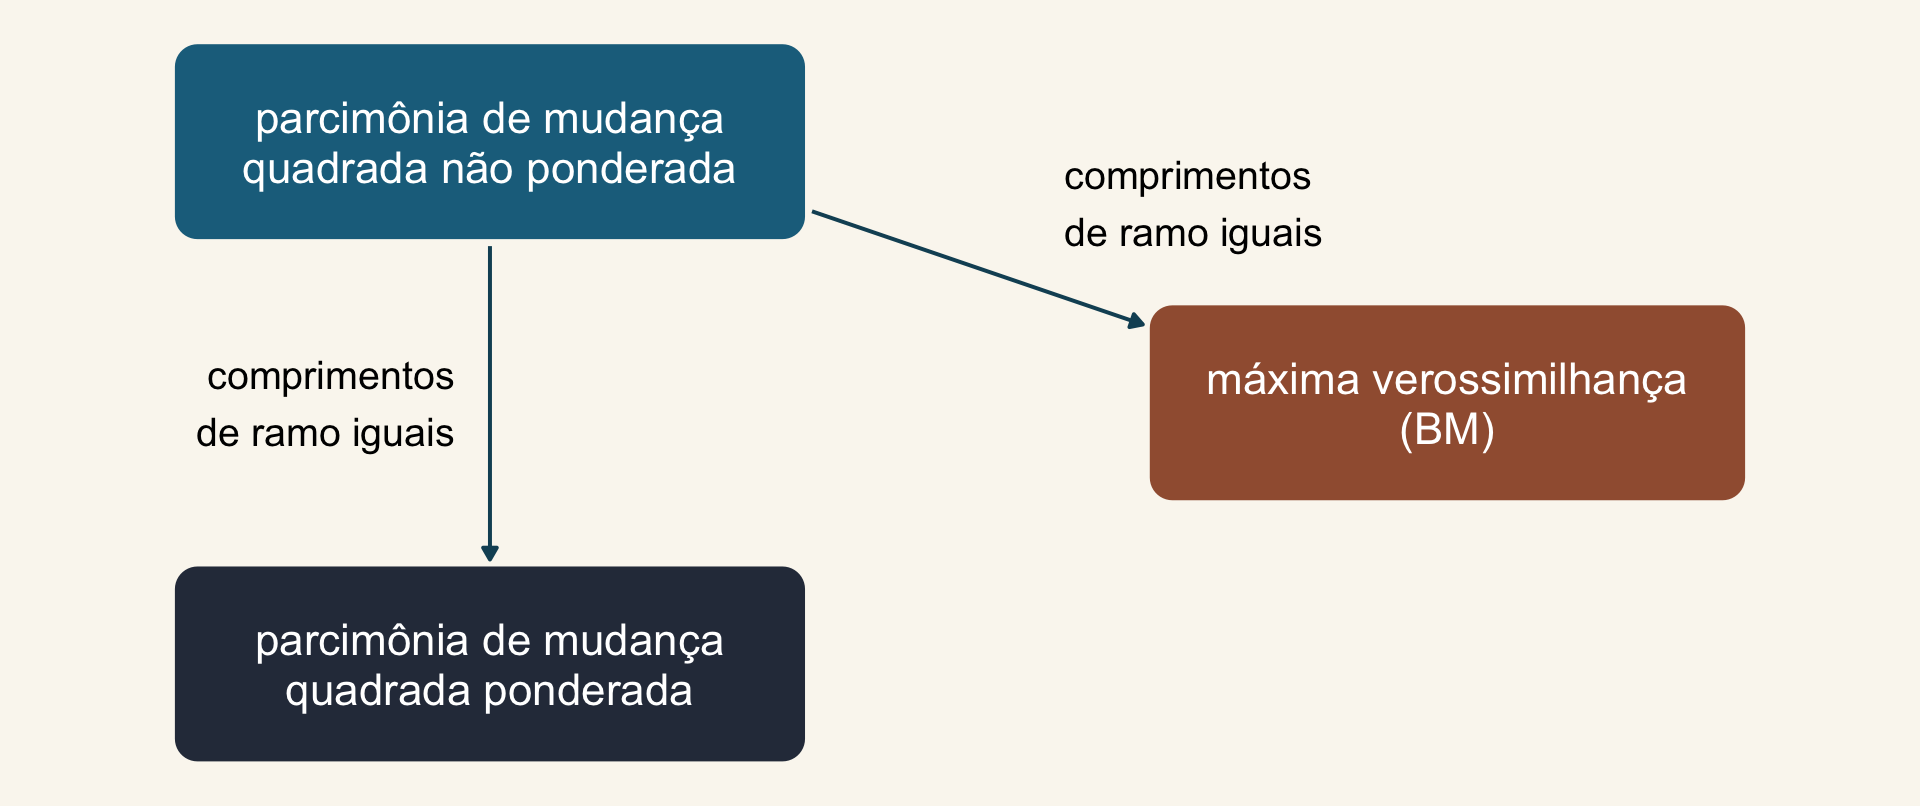
Quando os métodos coincidem
Passo a passo: o nó 13 pelos descendentes
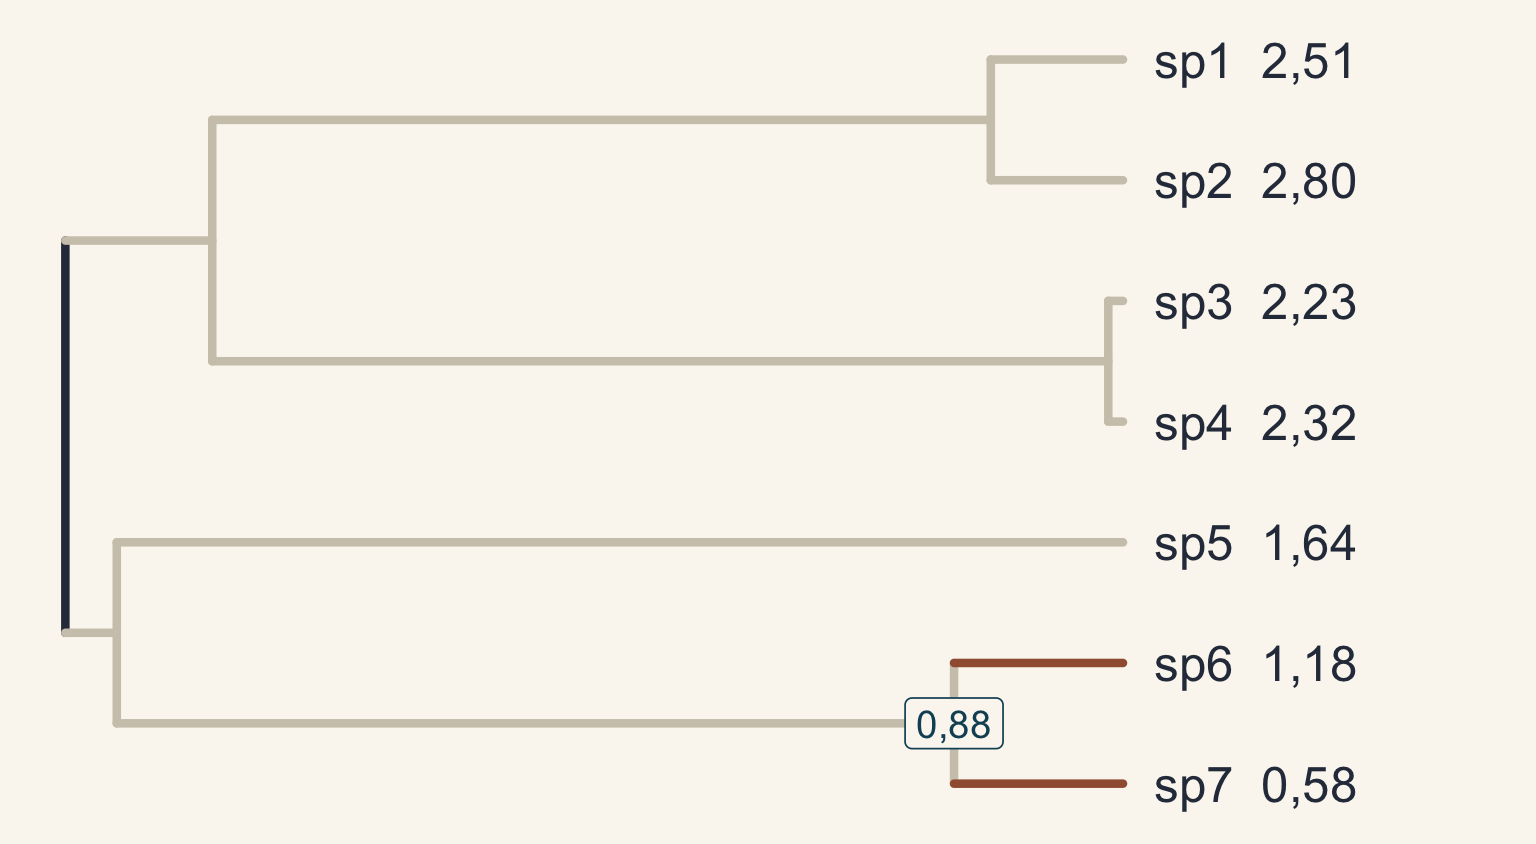
No pruning dos PICs (Aula 2), o valor do nó 13 é a média de sp6 e sp7 (ramos iguais): (1,18 + 0,58)/2 = 0,88. Só usa os descendentes.
Passo a passo: o nó 13 pela árvore toda
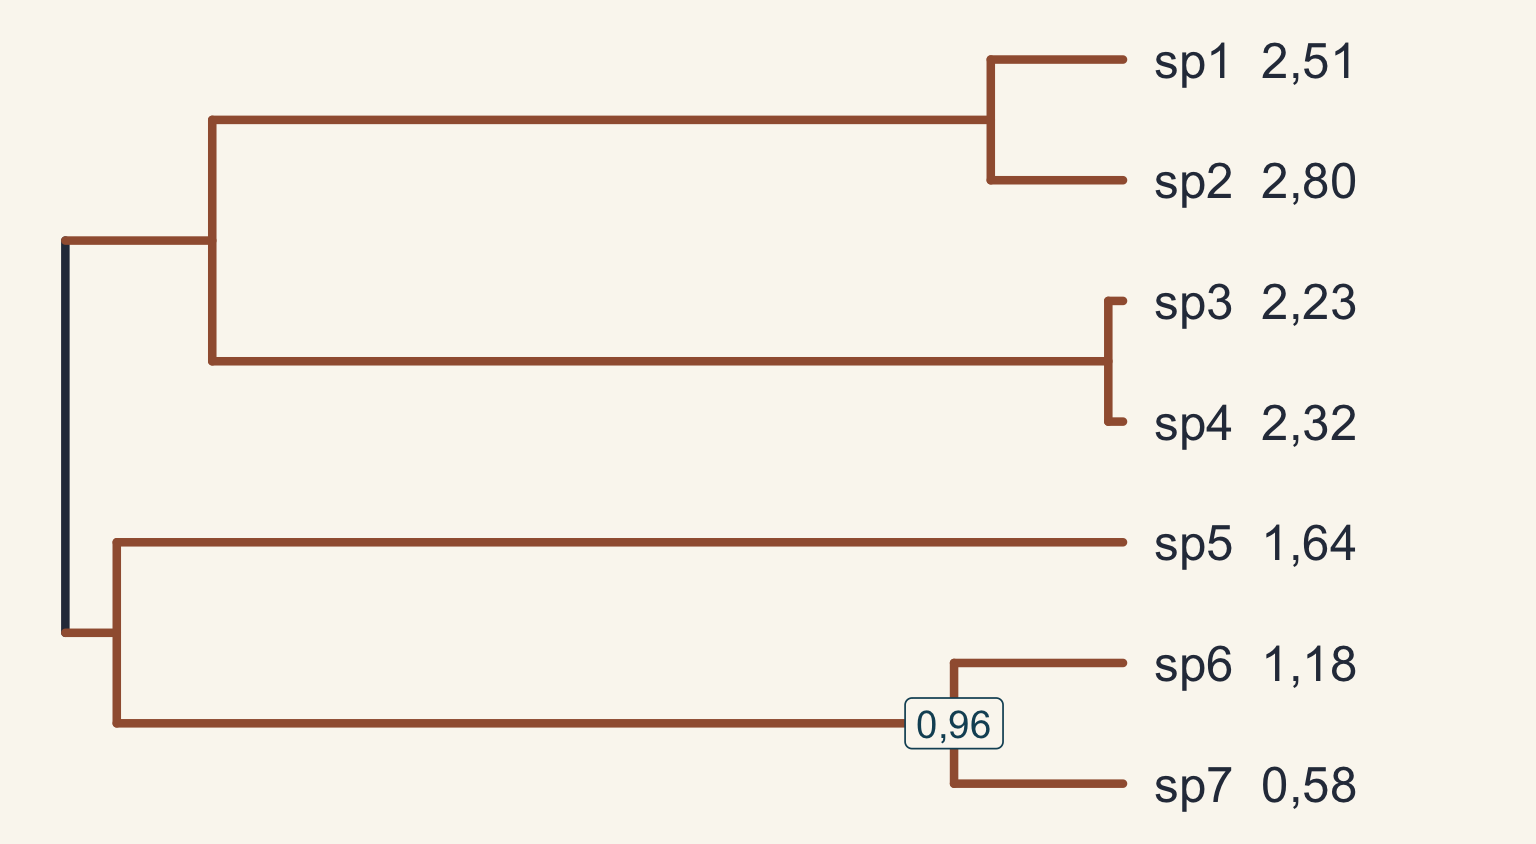
A estimativa por ML usa a árvore toda: o resto do clado e das espécies puxa o nó 13 para 0,96.
A incerteza na árvore-guia
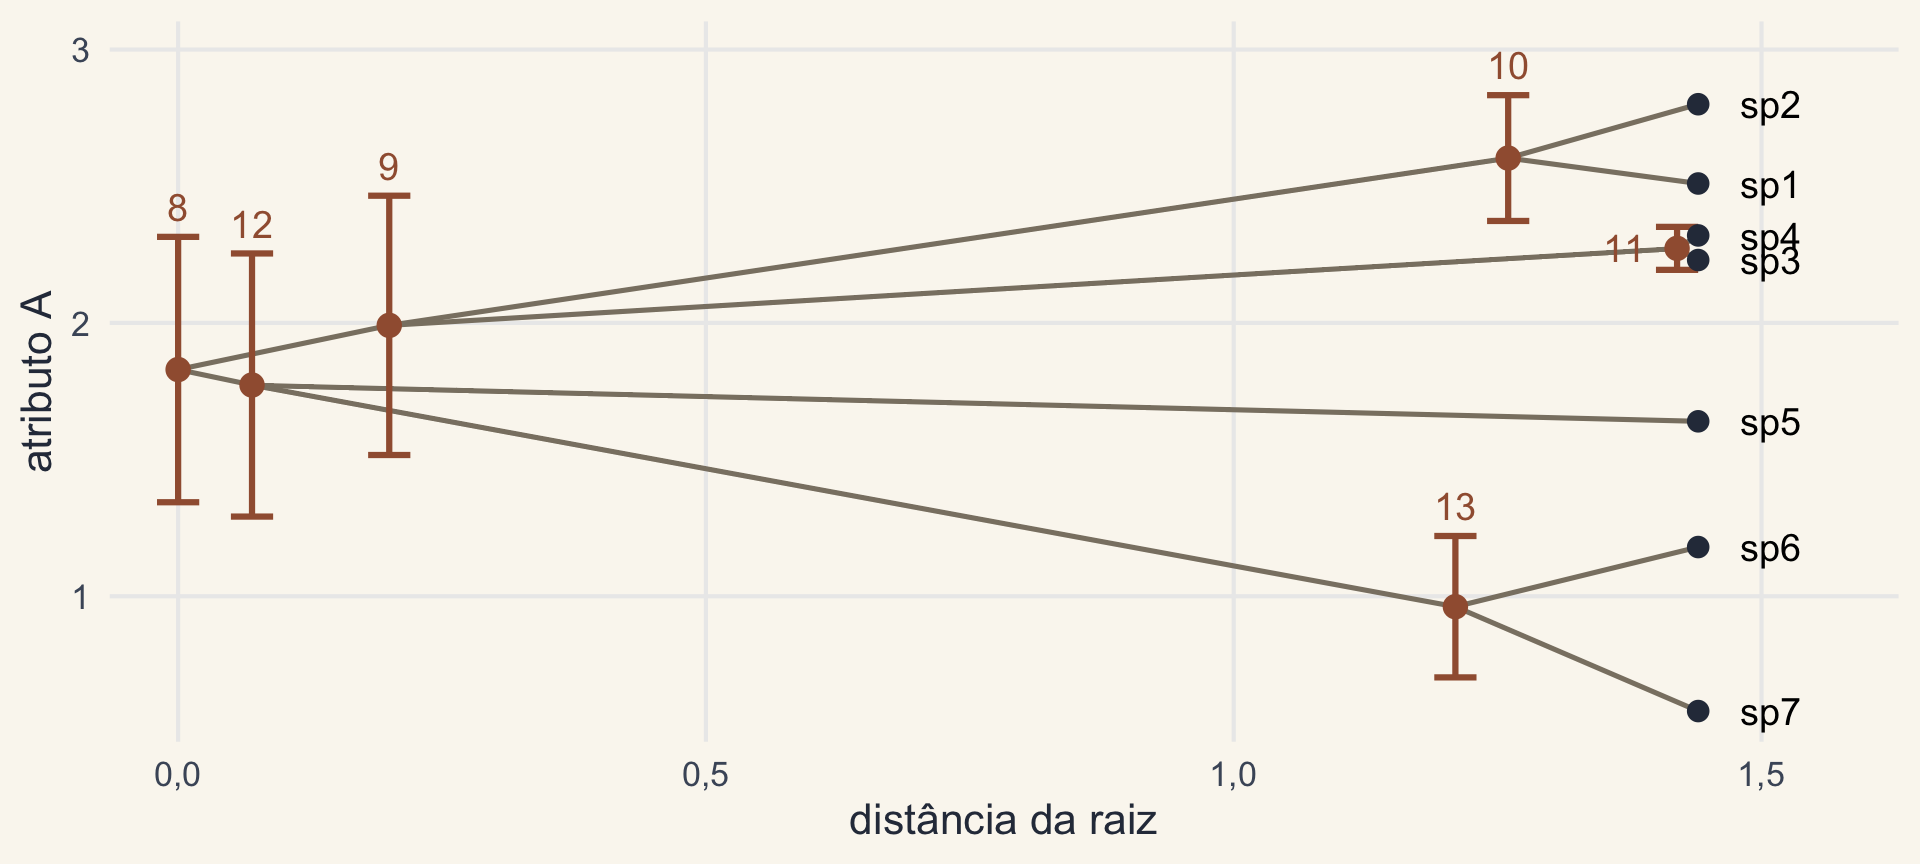
IC 95% da raiz: 1,34 a 2,31; do nó 11 (sp3 e sp4, ramos de 0,02): 2,19 a 2,35.
E numa árvore grande?
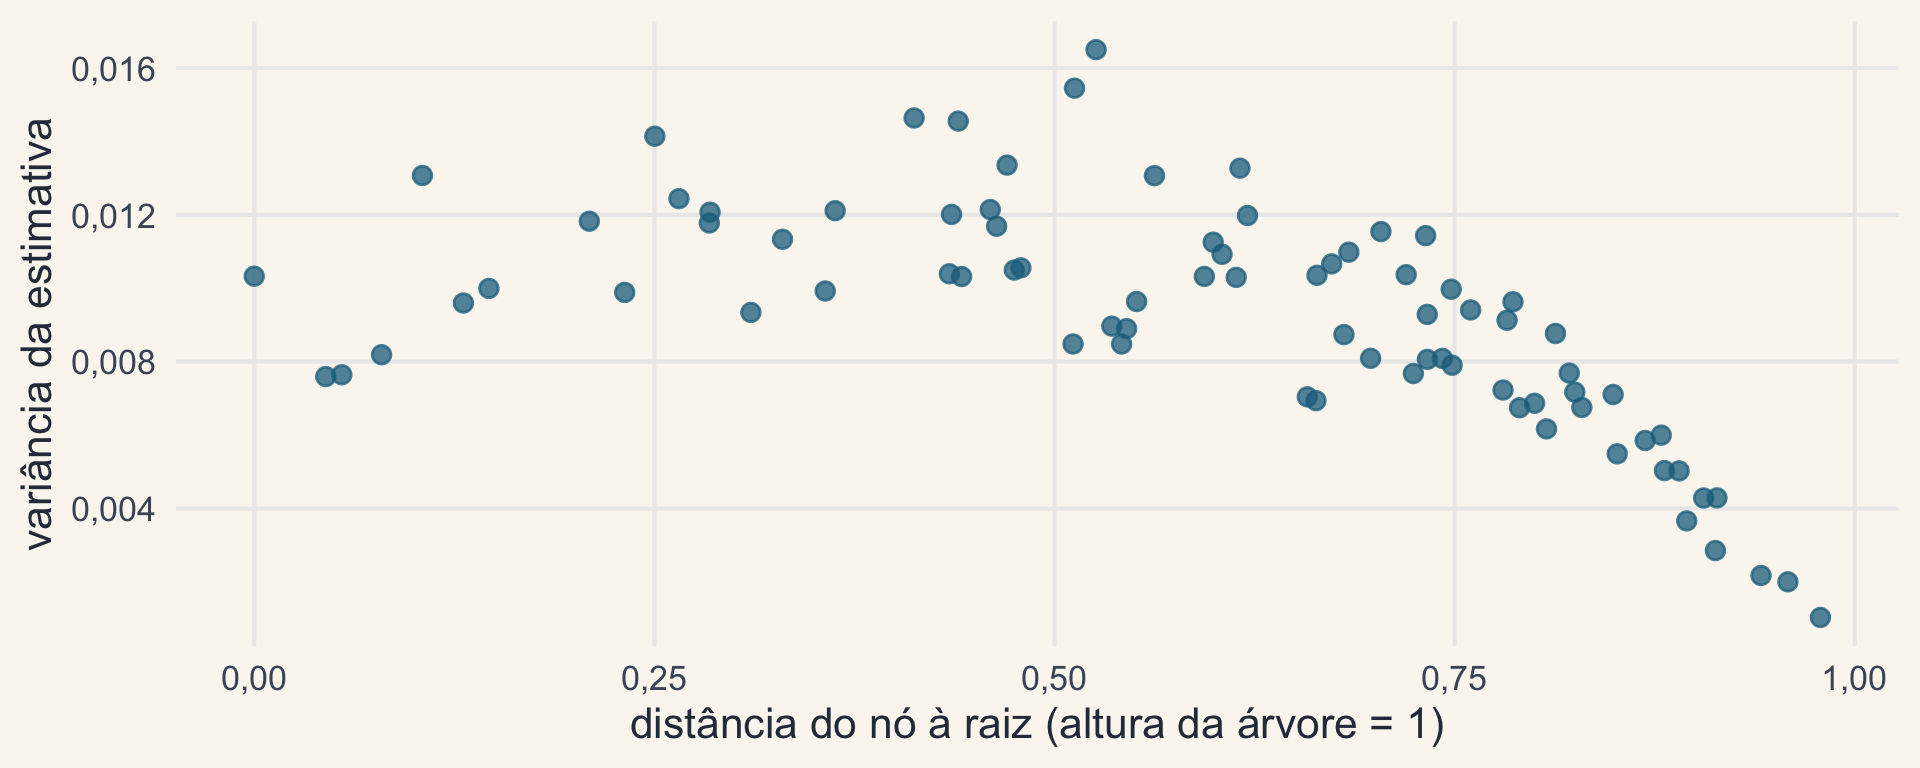
Anolis (log SVL): a variância cai perto das pontas. A raiz não é, necessariamente, o nó mais incerto: nós intermediários com ramos longos podem ser piores.
contMap
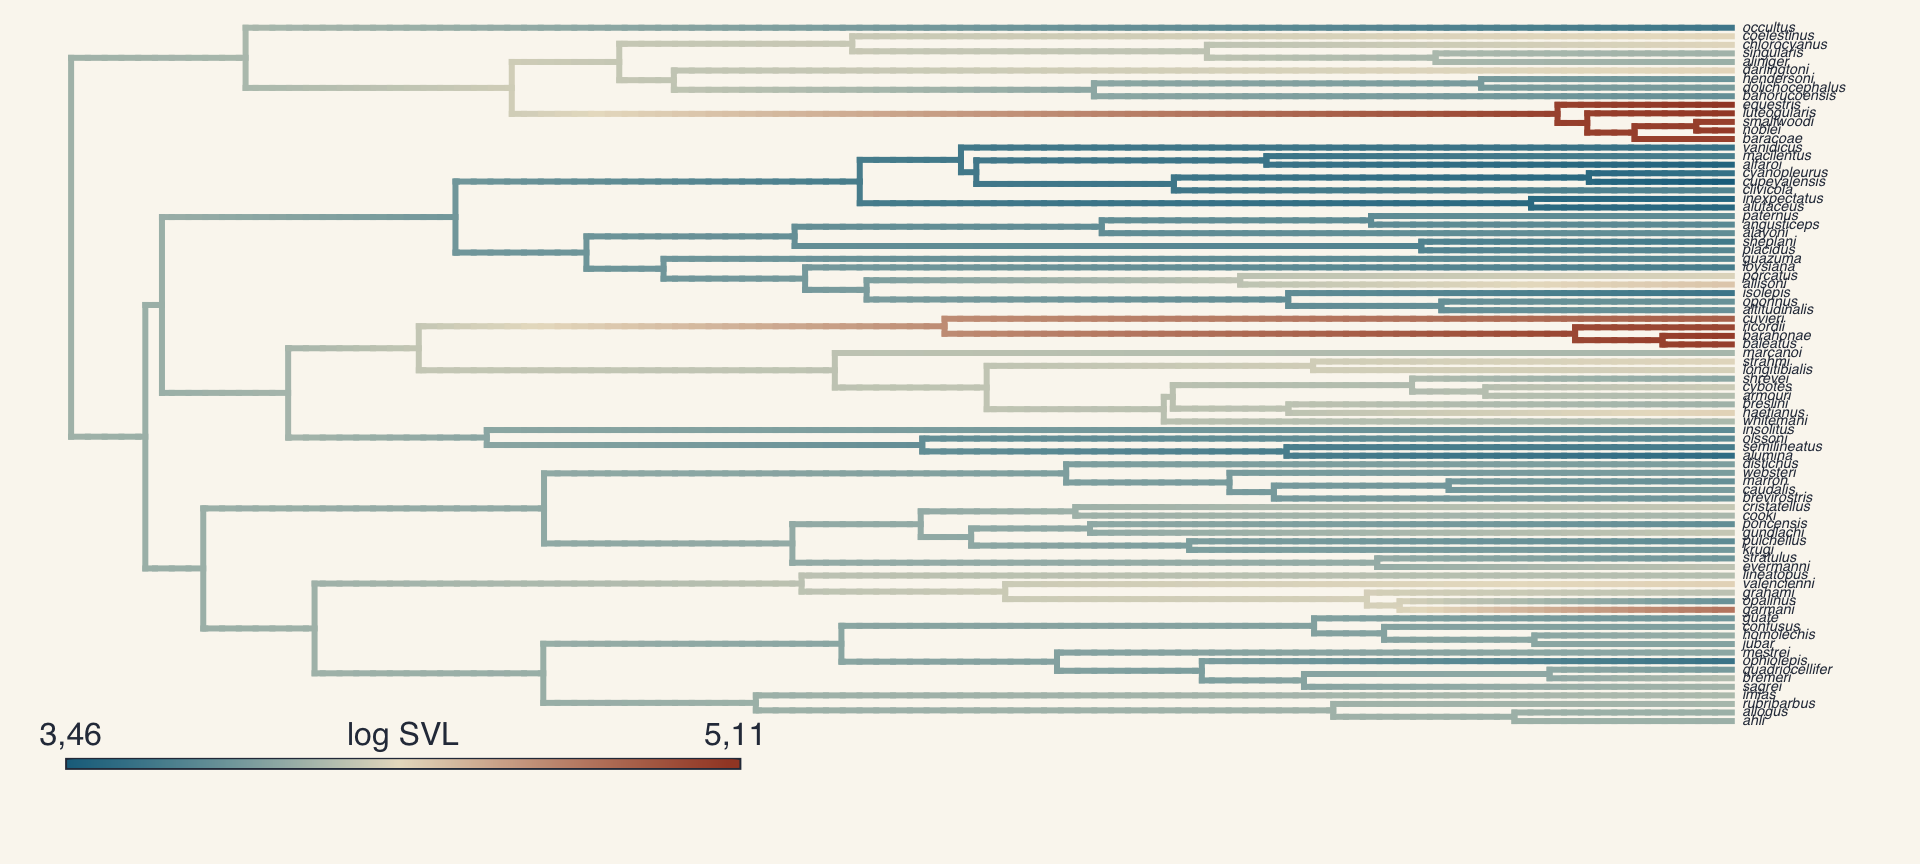
Revell (2013), Methods Ecol. Evol. 4: 754–759.
Fenograma com IC 95%
Computing density traitgram...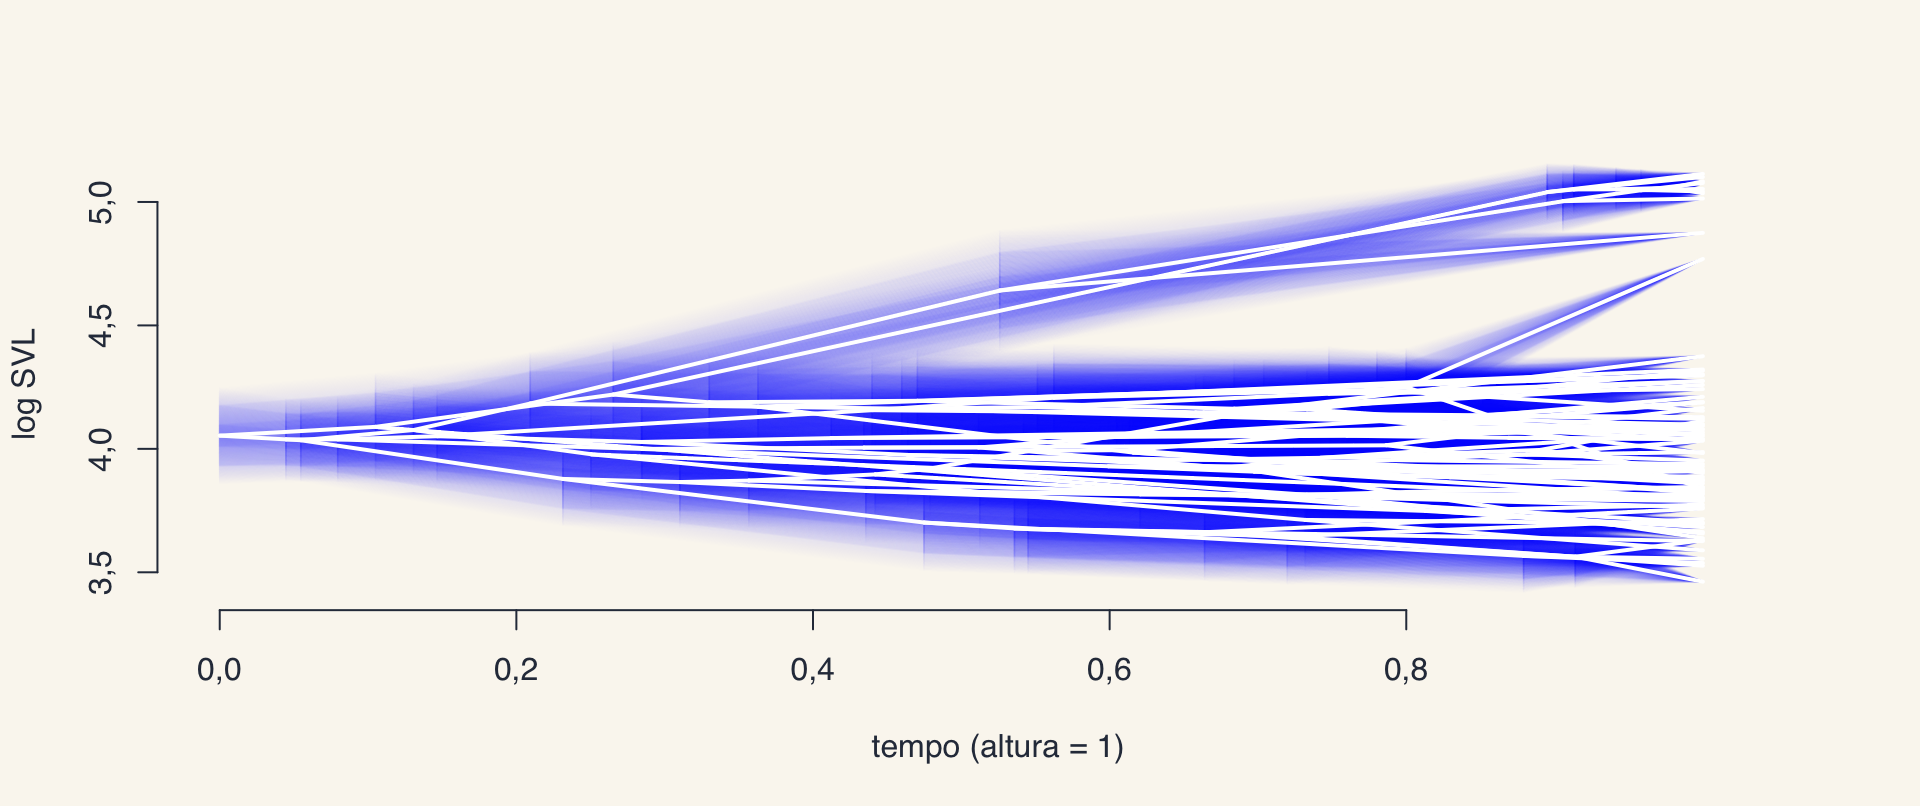
phytools::fancyTree(type = "phenogram95").
Uma tendência com fósseis
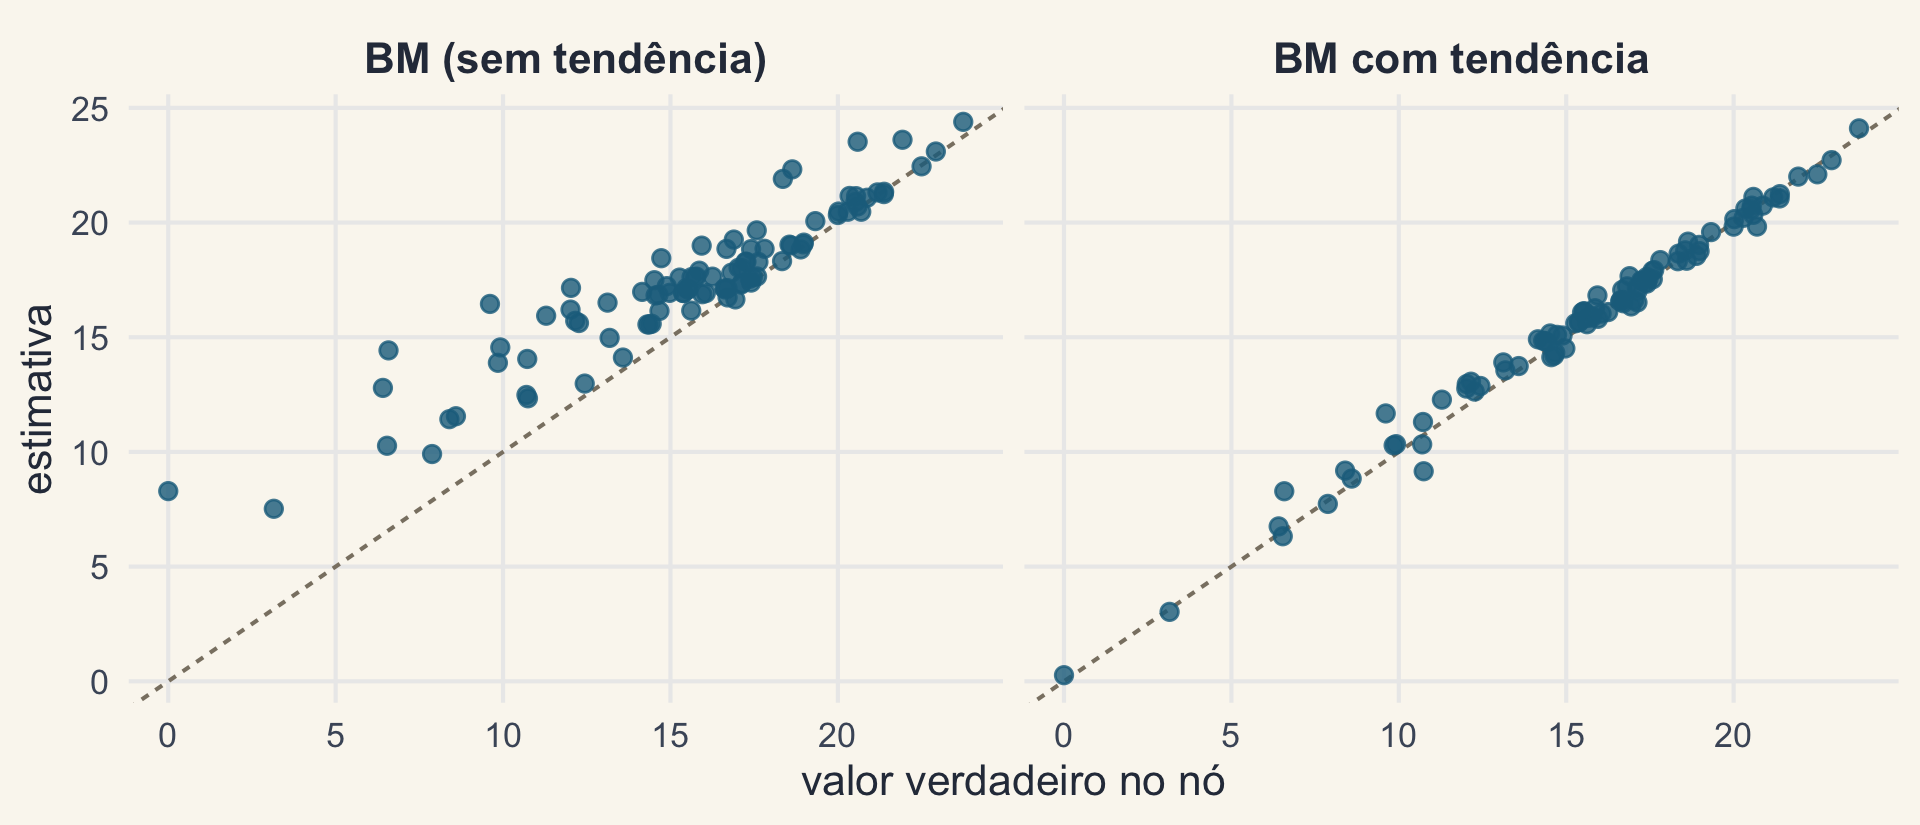
Simulação com tendência (μ > 0) numa árvore com fósseis. Sob BM, viés médio de 1,75; com a tendência no modelo (phytools::anc.trend), 0,17.
Morder ou sugar?
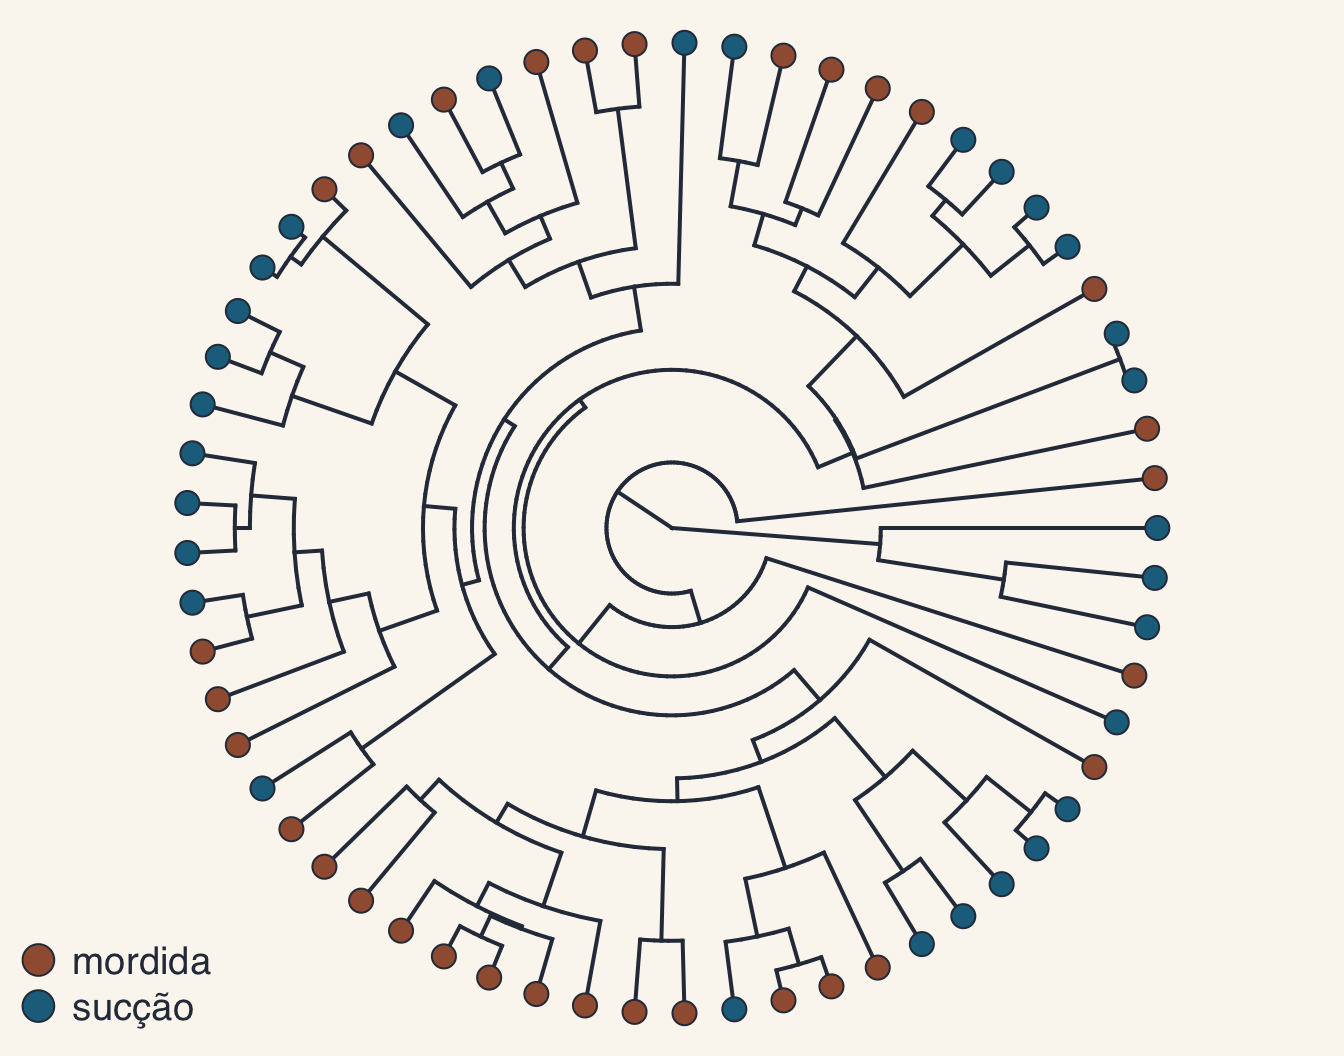
61 espécies de Elopomorpha; Mk ER: log L = -37,03 (o ARD, -37,00, não melhora). Dados de Collar et al. (2014), Nat. Commun. 5: 5505, usados na prática.
As probabilidades marginais
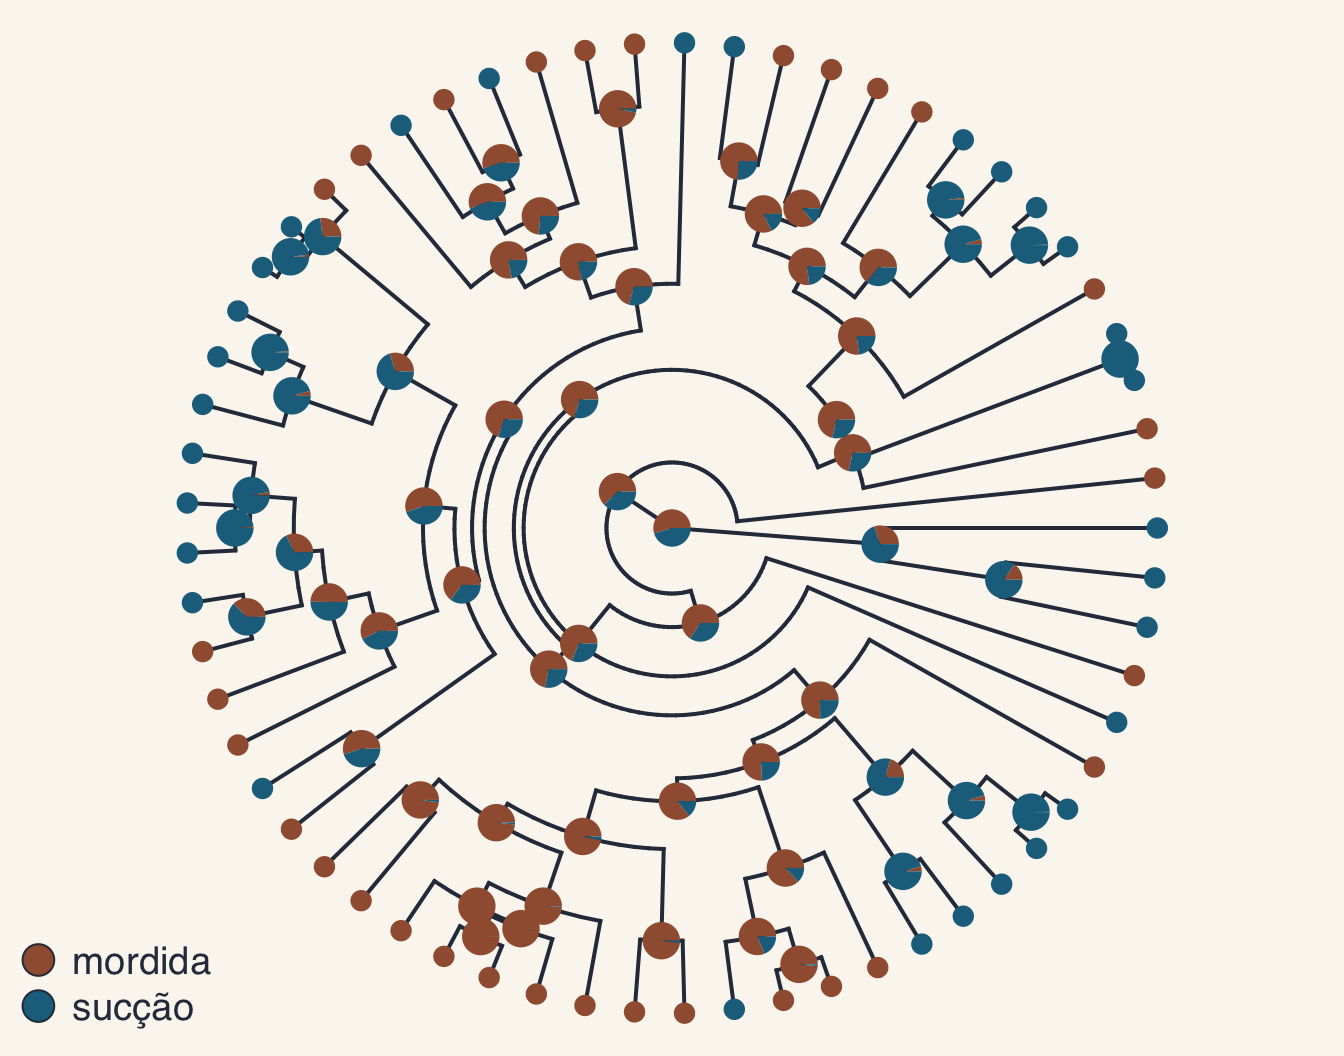
Em 32 dos 60 nós, nenhum estado passa de 0,8.
Marginal × conjunta
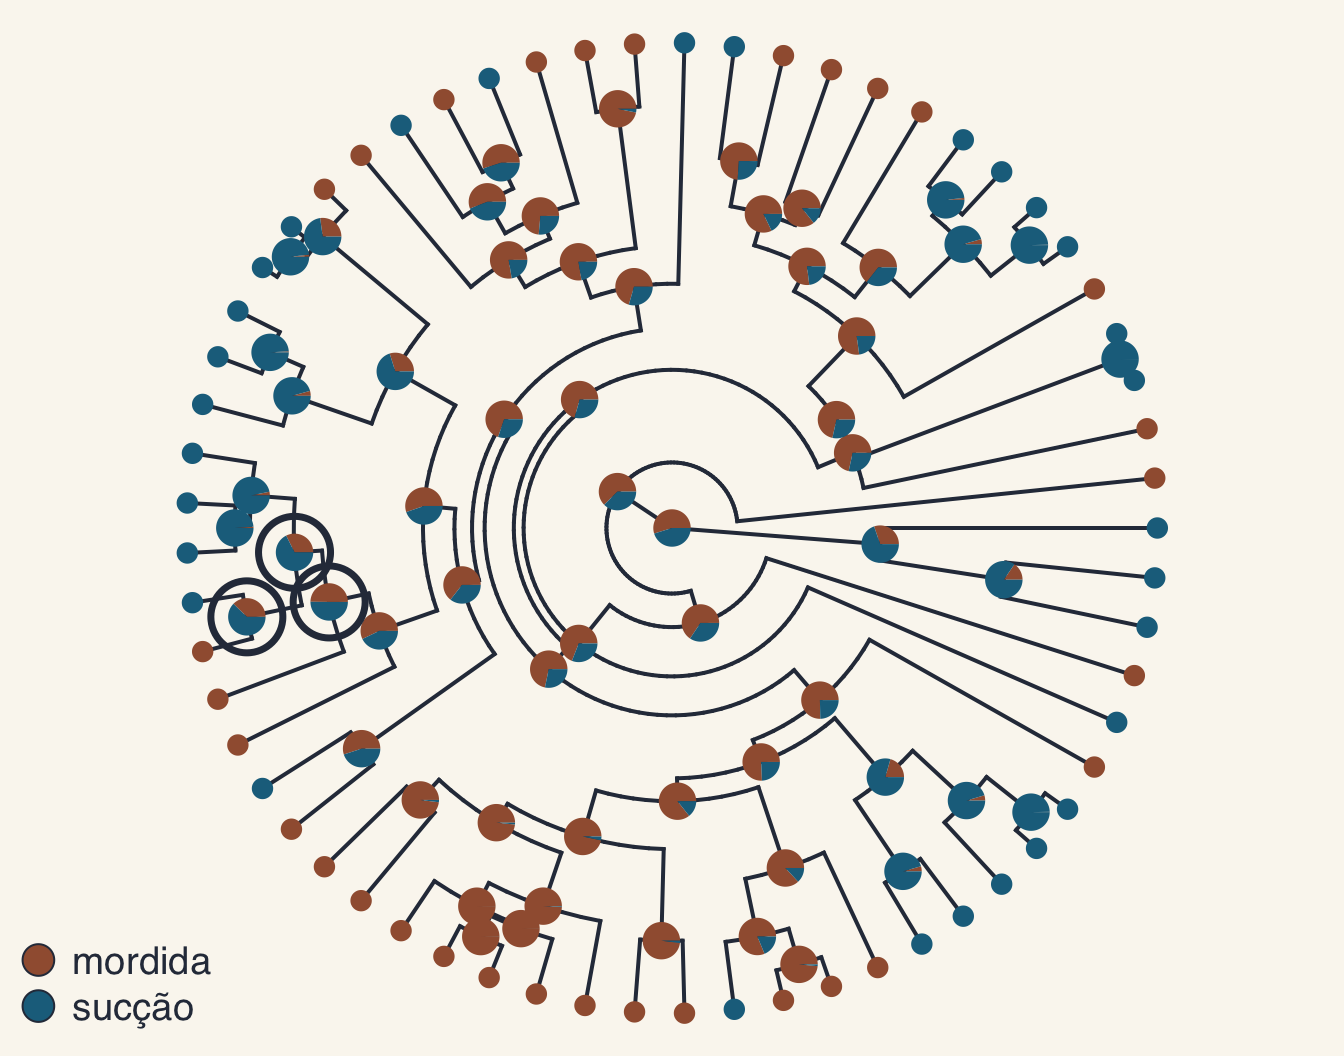
Discordam em 3 nós (anéis), onde as probabilidades marginais estão perto de 0,5.
Um mapa
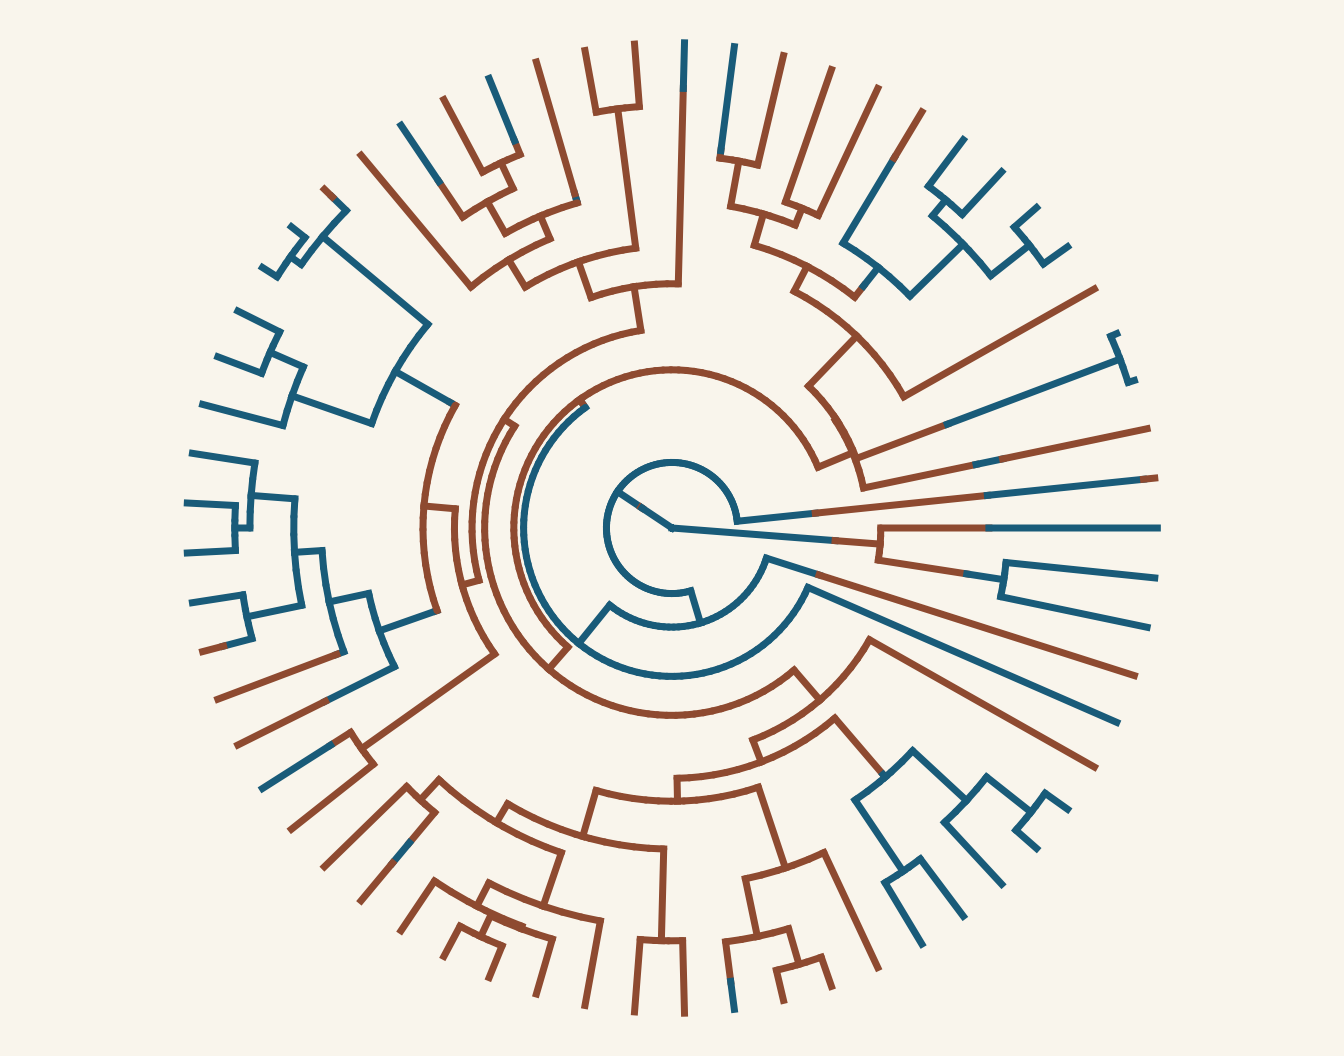
Uma história possível, com as mudanças no meio dos ramos.
Cada mapa é uma história diferente
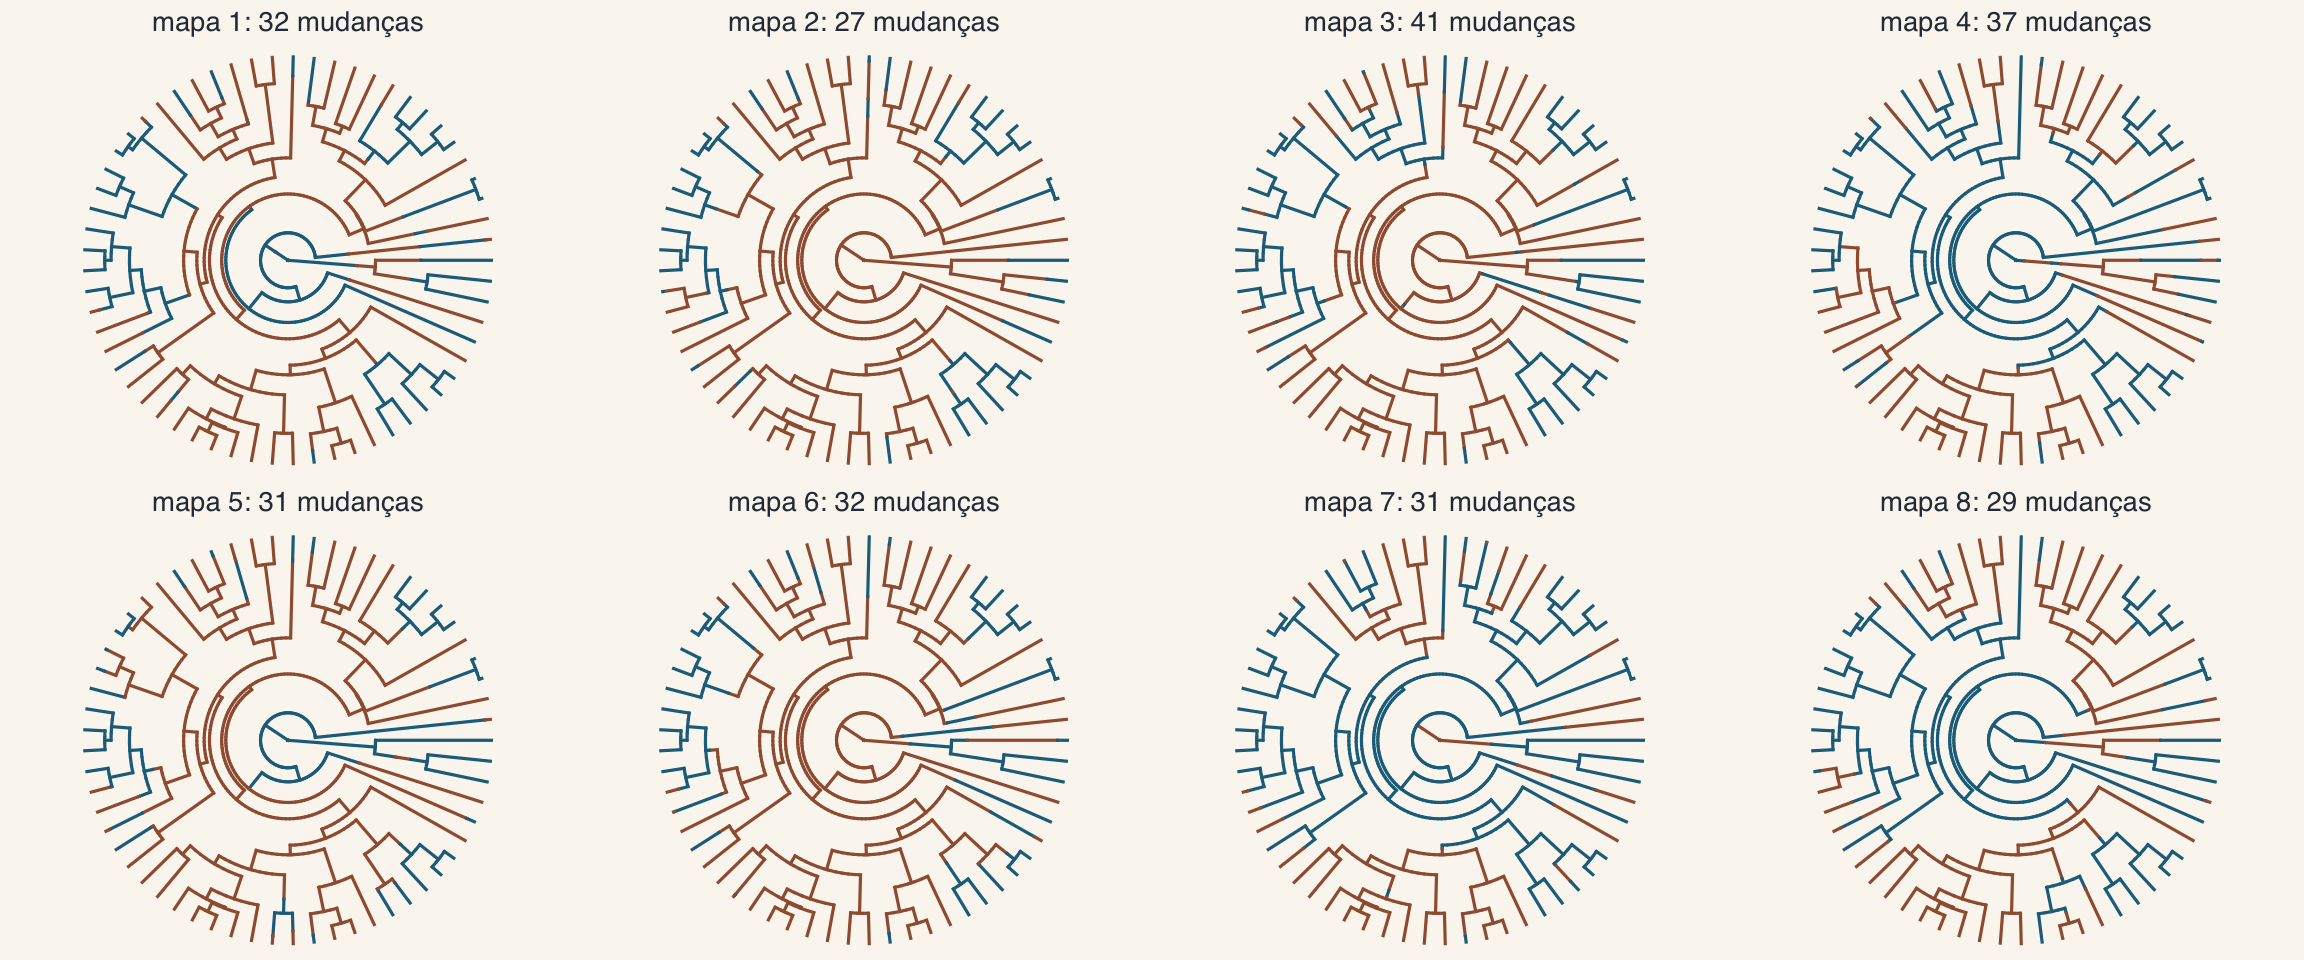
Mesmos dados, mesmo modelo: o método sorteia muitas histórias, e o resumo vem do conjunto.
Cem mapas
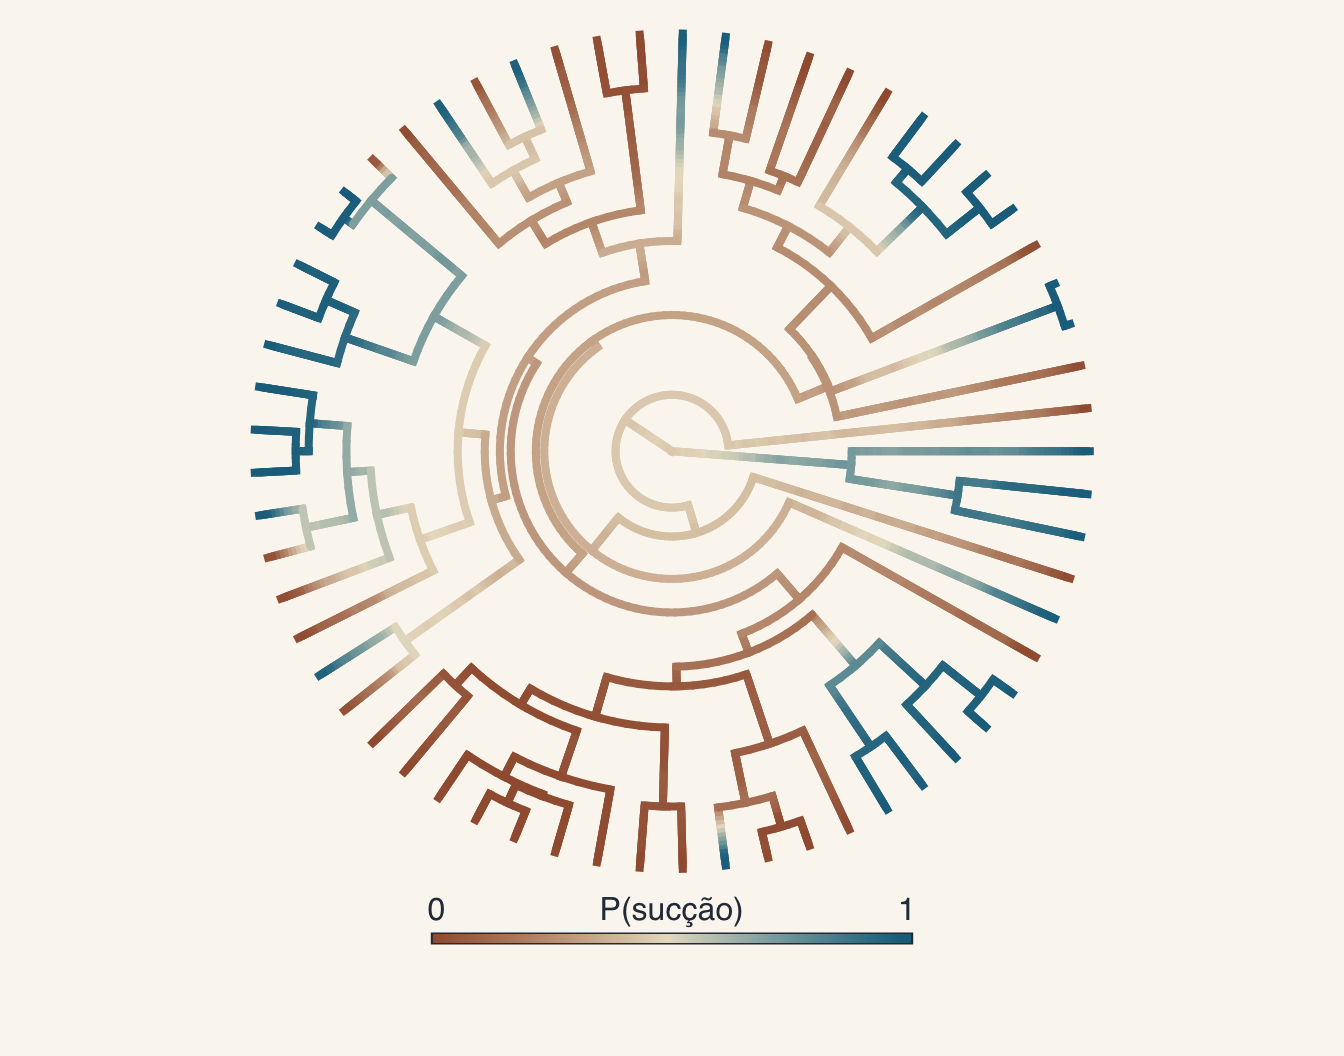
phytools::make.simmap(arvore, x, model = "ER", nsim = 100) e densityMap.
Quantas mudanças?
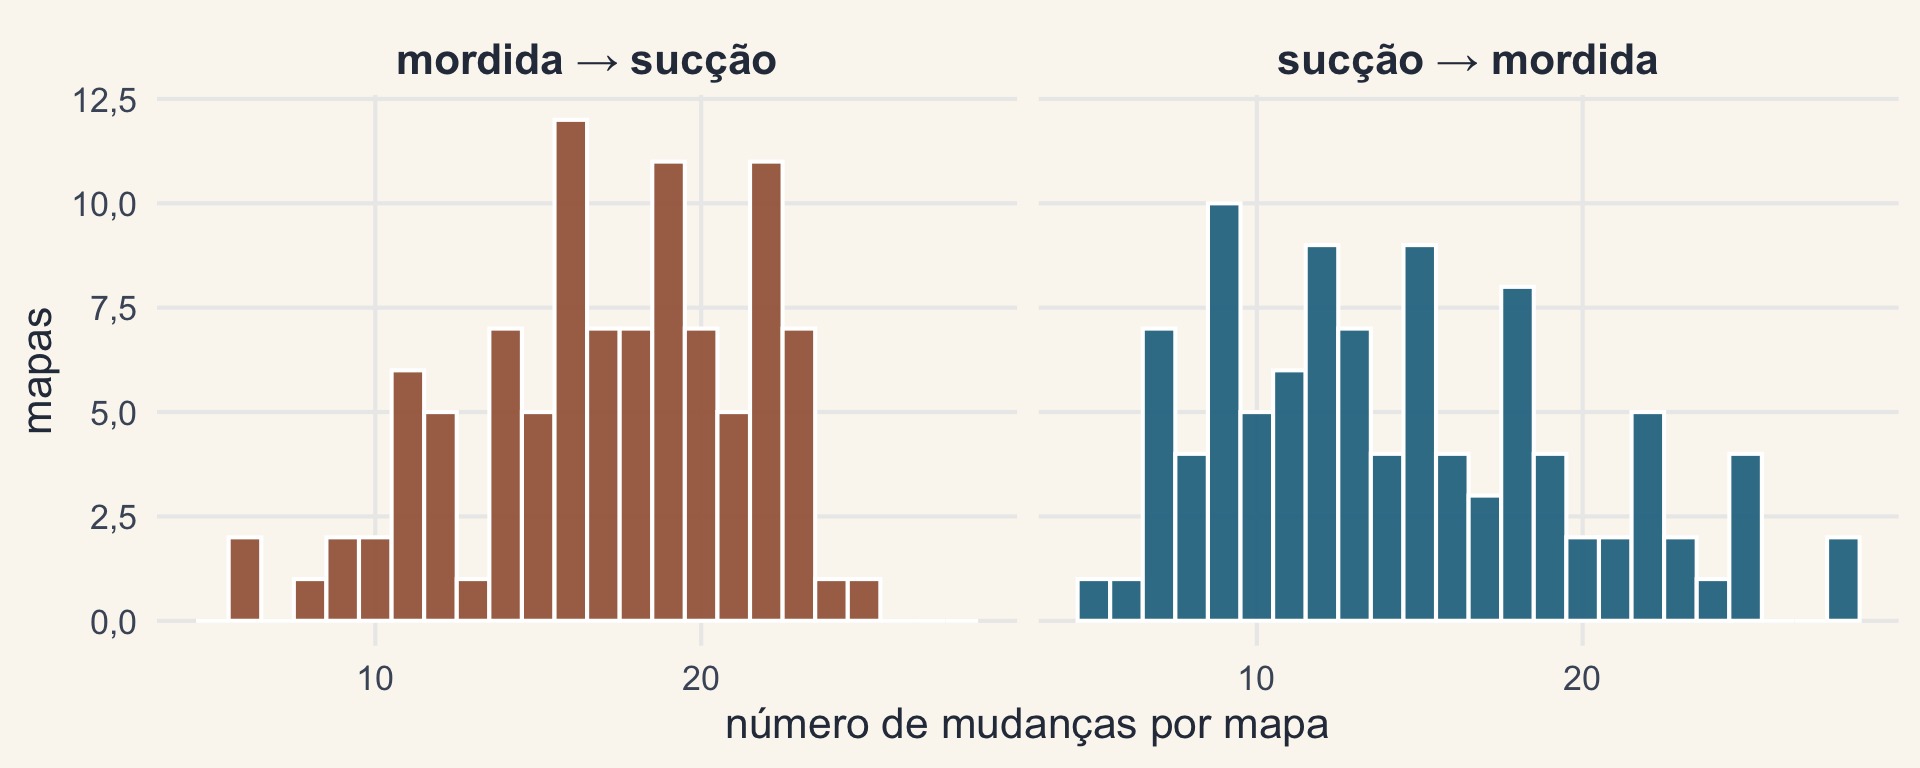
Média de 31,5 mudanças por mapa (IC 95%: 23 a 41).
E os Squamata da Aula 6?
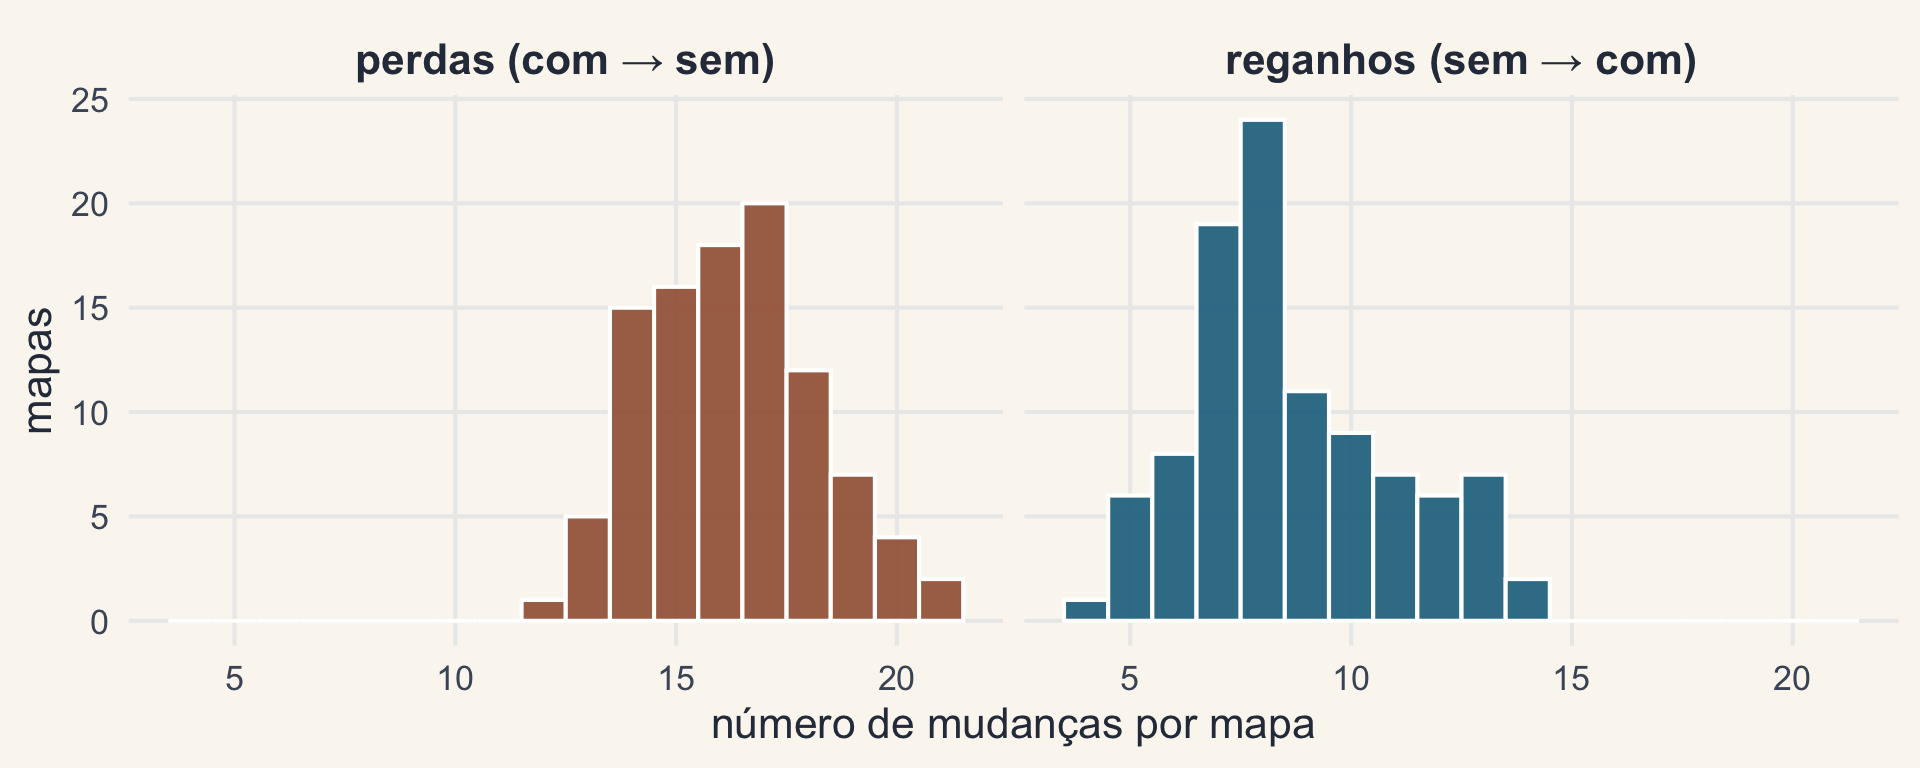
Sob ARD: 16,3 perdas (13 a 20) e 8,6 reganhos por mapa. Os reganhos dependem do modelo, que os dados não distinguem bem (Aula 6).
Filomorfoespaço
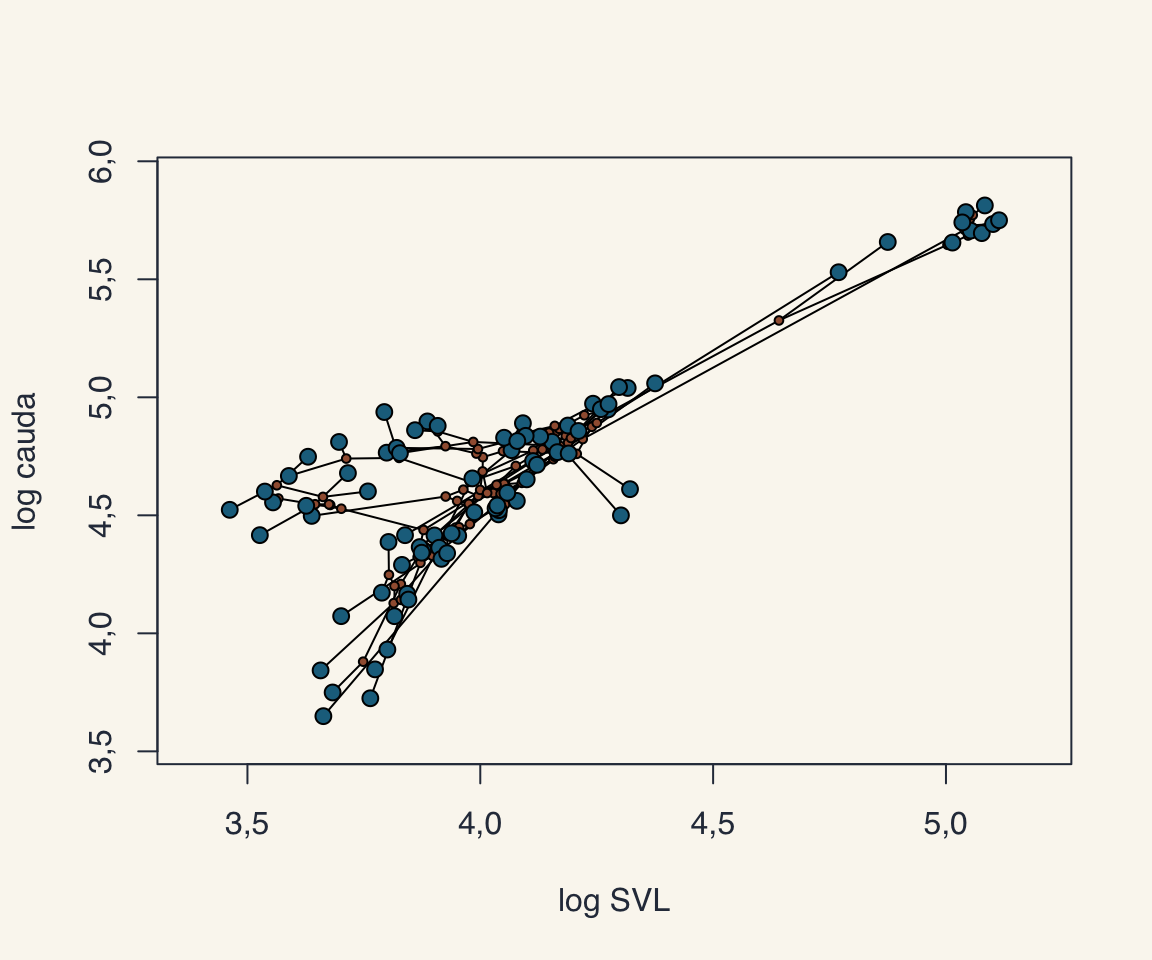
Os nós ficam nas estimativas por ML dos dois atributos; volta na Aula 8.
Como ler um filomorfoespaço
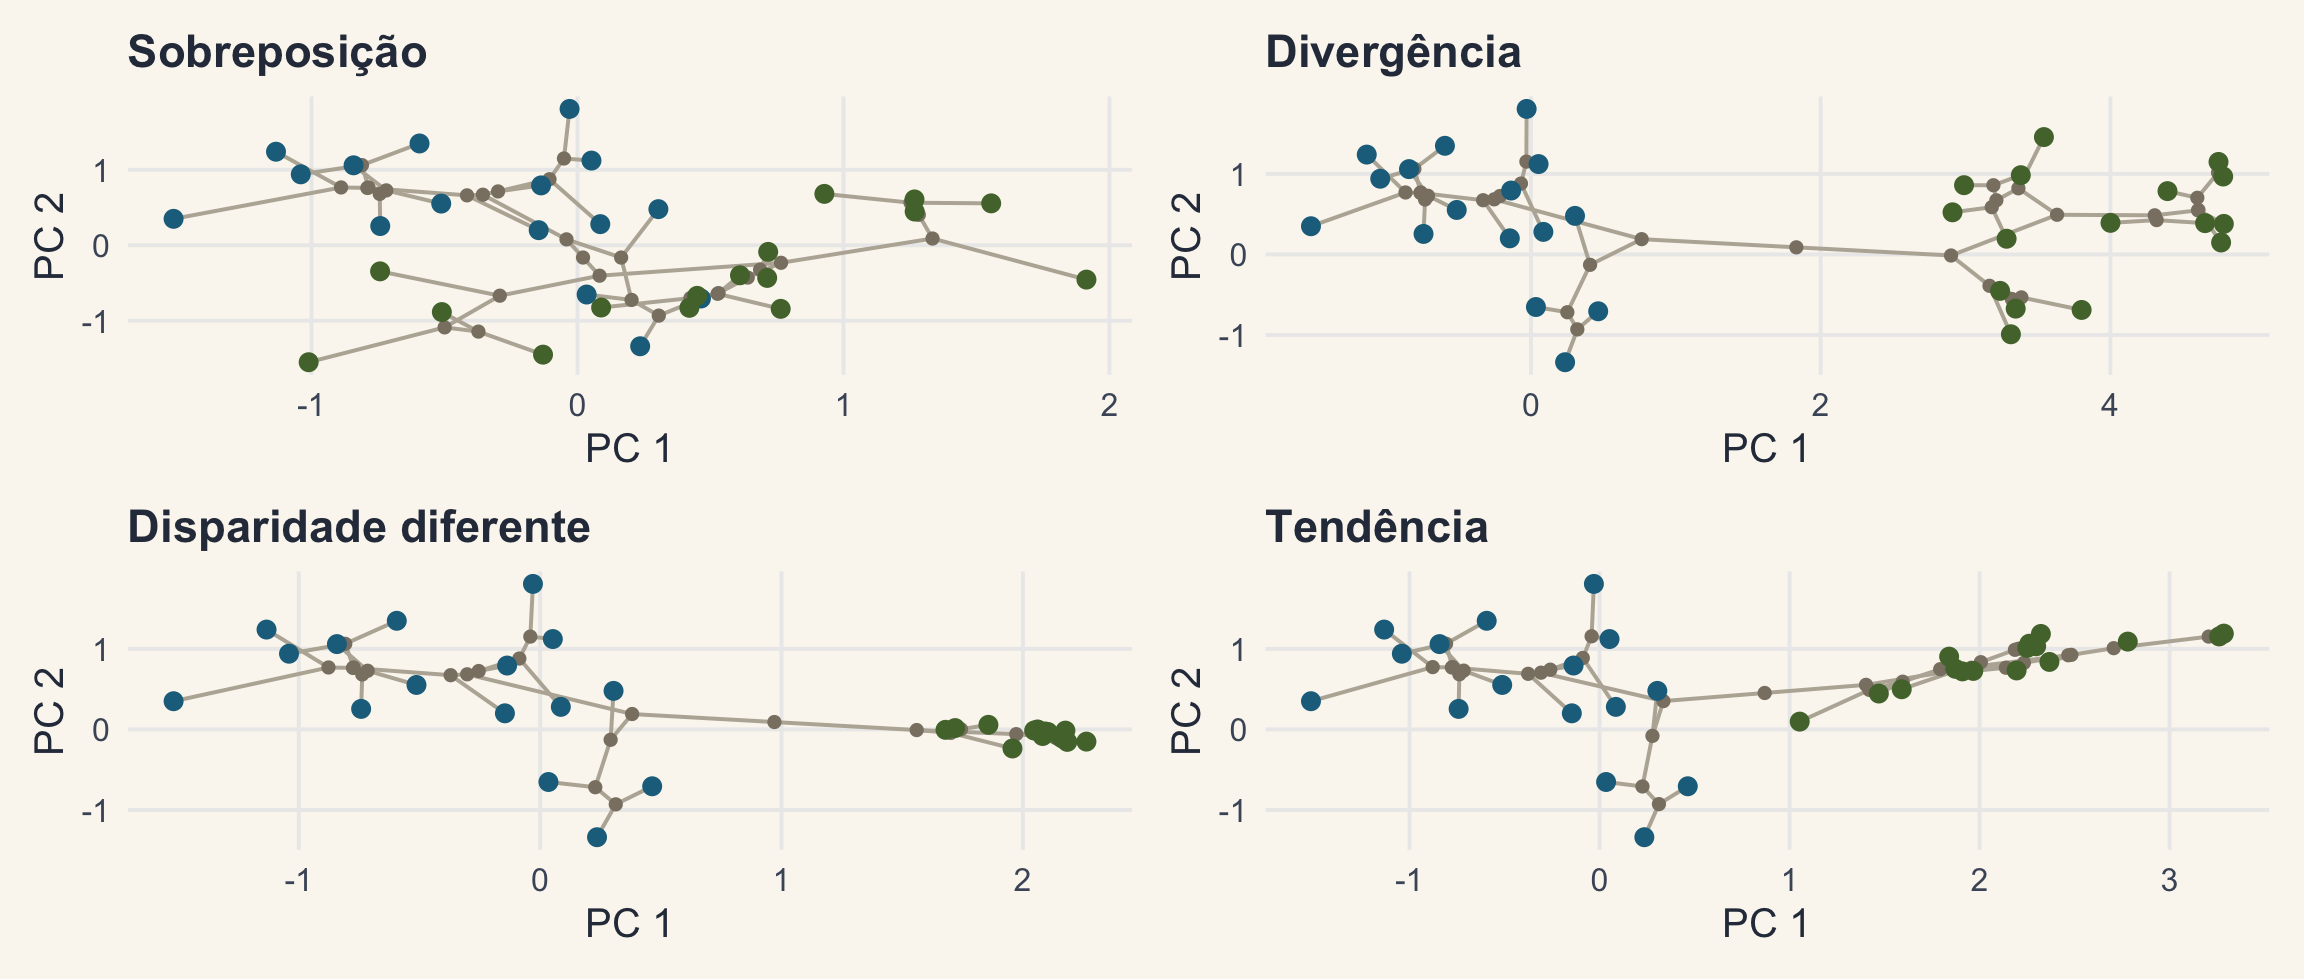
Dados simulados: dois clados de 16 espécies (azul e verde); nós cinza nas estimativas por ML. Ideia da Fig. 2 de Adams & Collyer (2019), Annu. Rev. Ecol. Evol. Syst. 50: 405–425.
Onde estamos
Agora é com vocês
Eu só queria saber como era o ancestral IC 95%: de 1,34 a 2,31
Almeida Júnior, Saudade (1899), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 7 e o desafio.