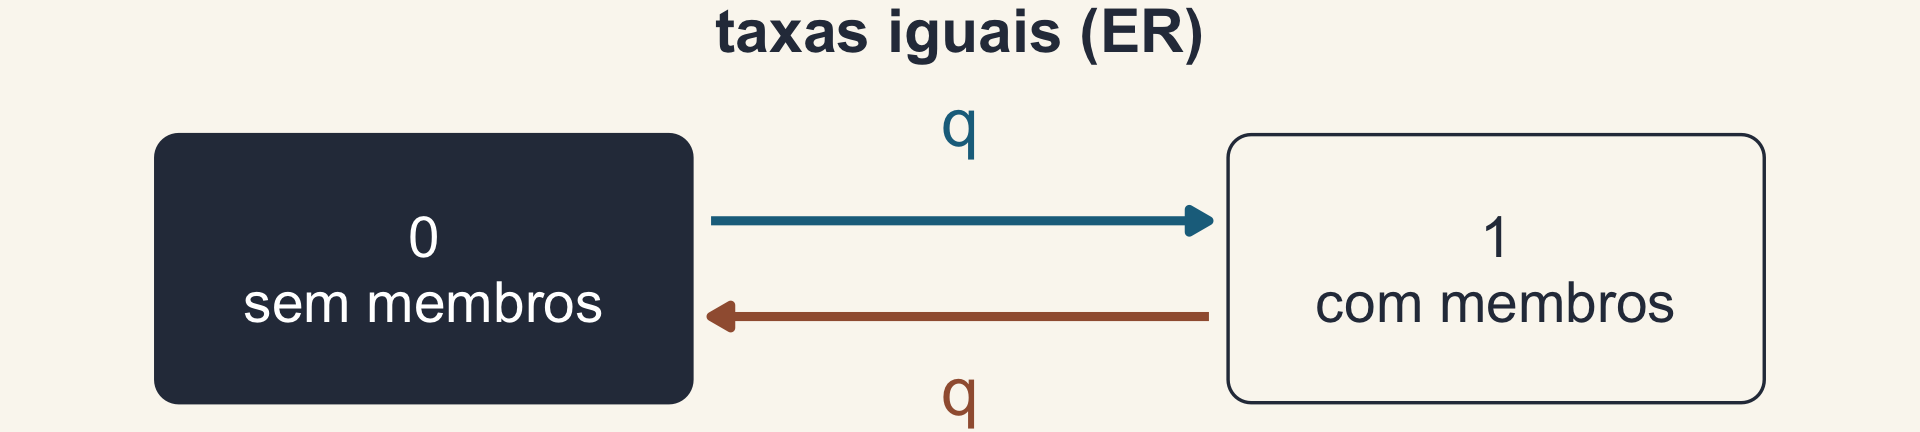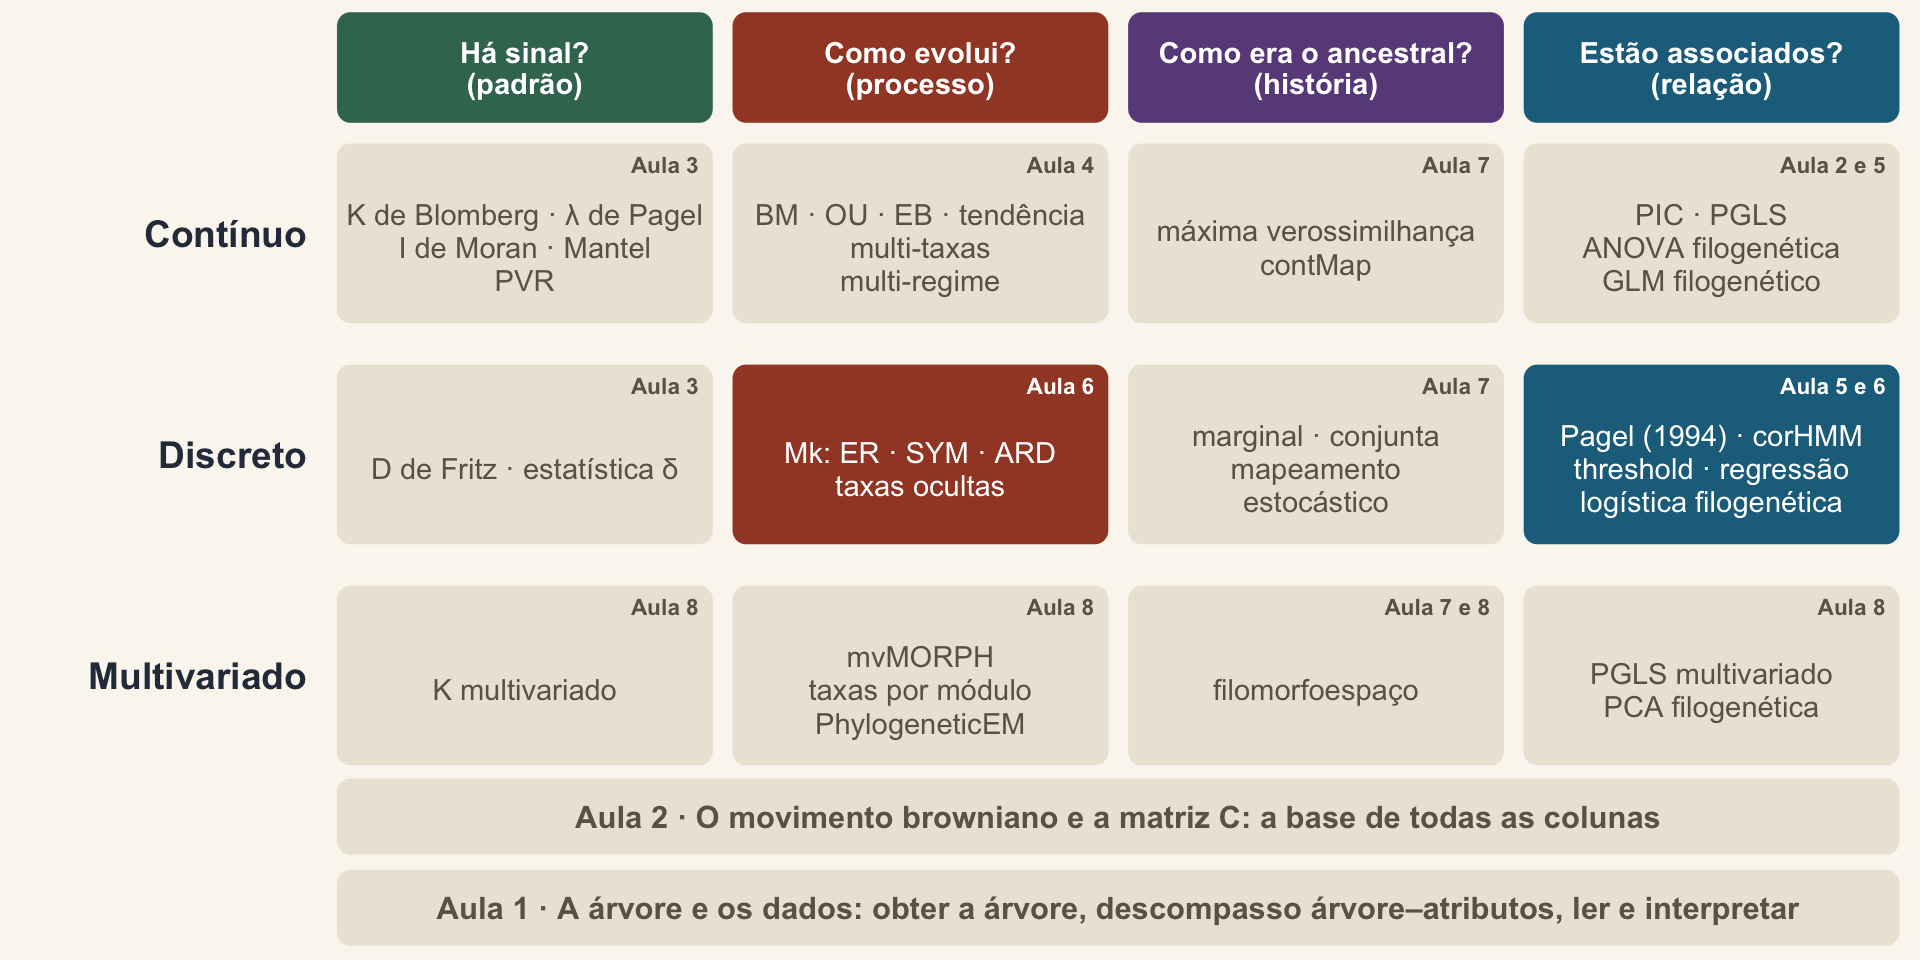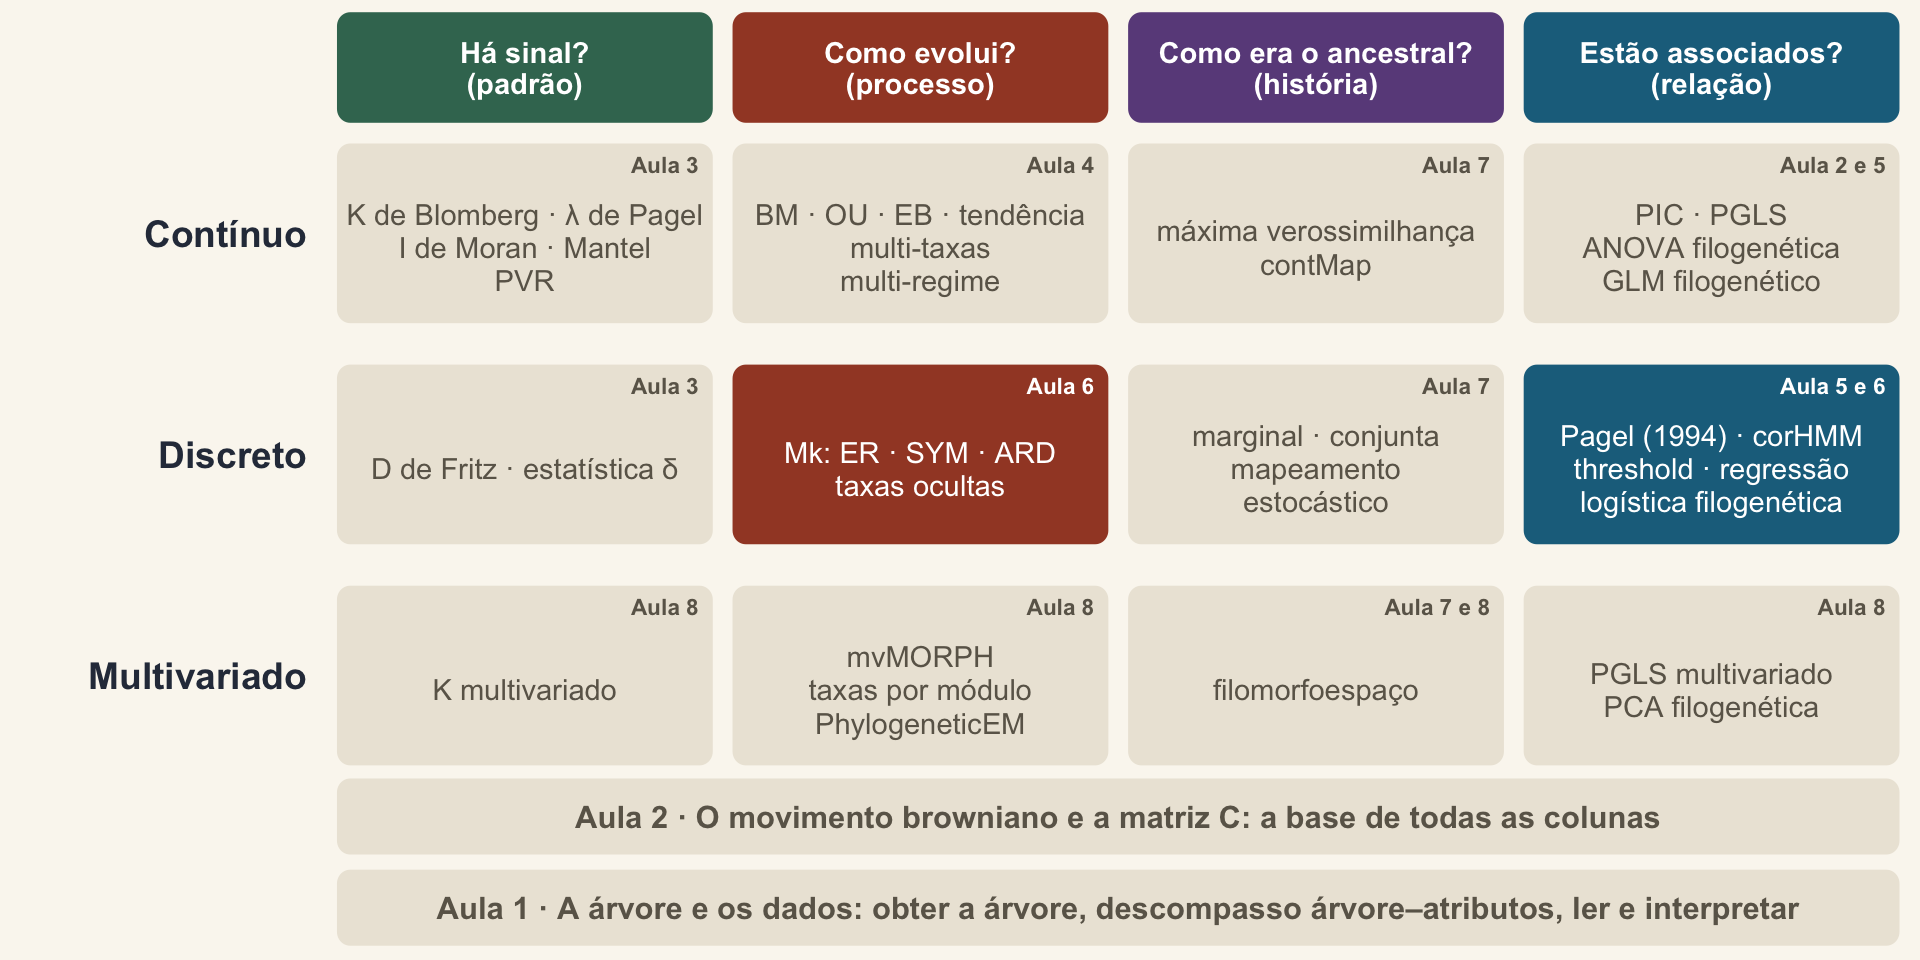
Aula 6 · Métodos Filogenéticos Comparativos · PPGBA/UFMS

Como evolui?
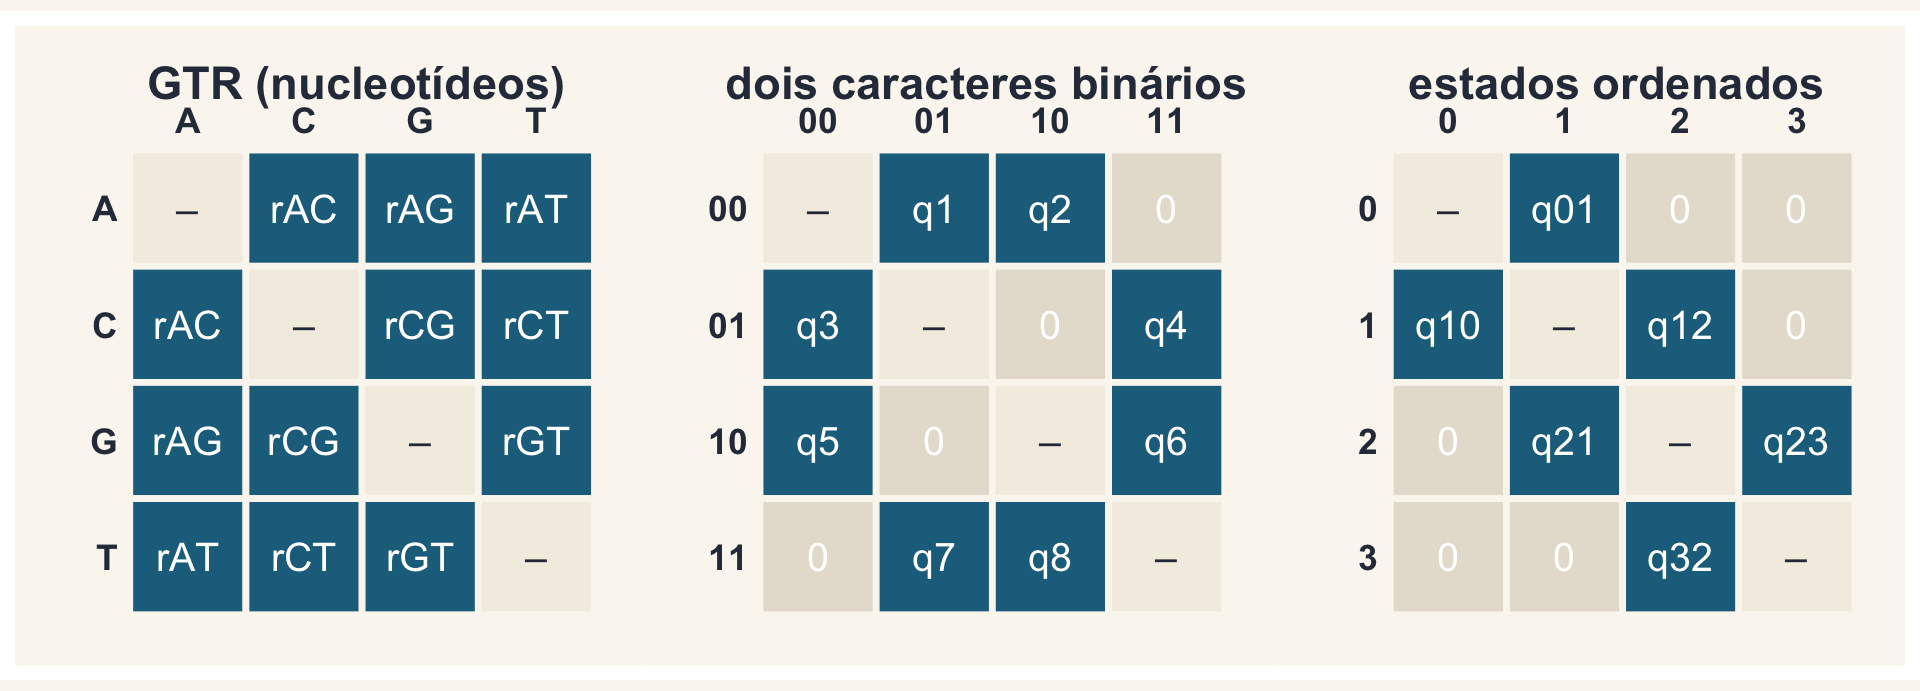
\[\mathbf{Q} = \begin{bmatrix} \cdot & q_{AC} & q_{AG} & q_{AT} \\ q_{CA} & \cdot & q_{CG} & q_{CT} \\ q_{GA} & q_{GC} & \cdot & q_{GT} \\ q_{TA} & q_{TC} & q_{TG} & \cdot \end{bmatrix}\]
Visão geral: Holder & Lewis (2003), Nat. Rev. Genet. 4: 275–284.

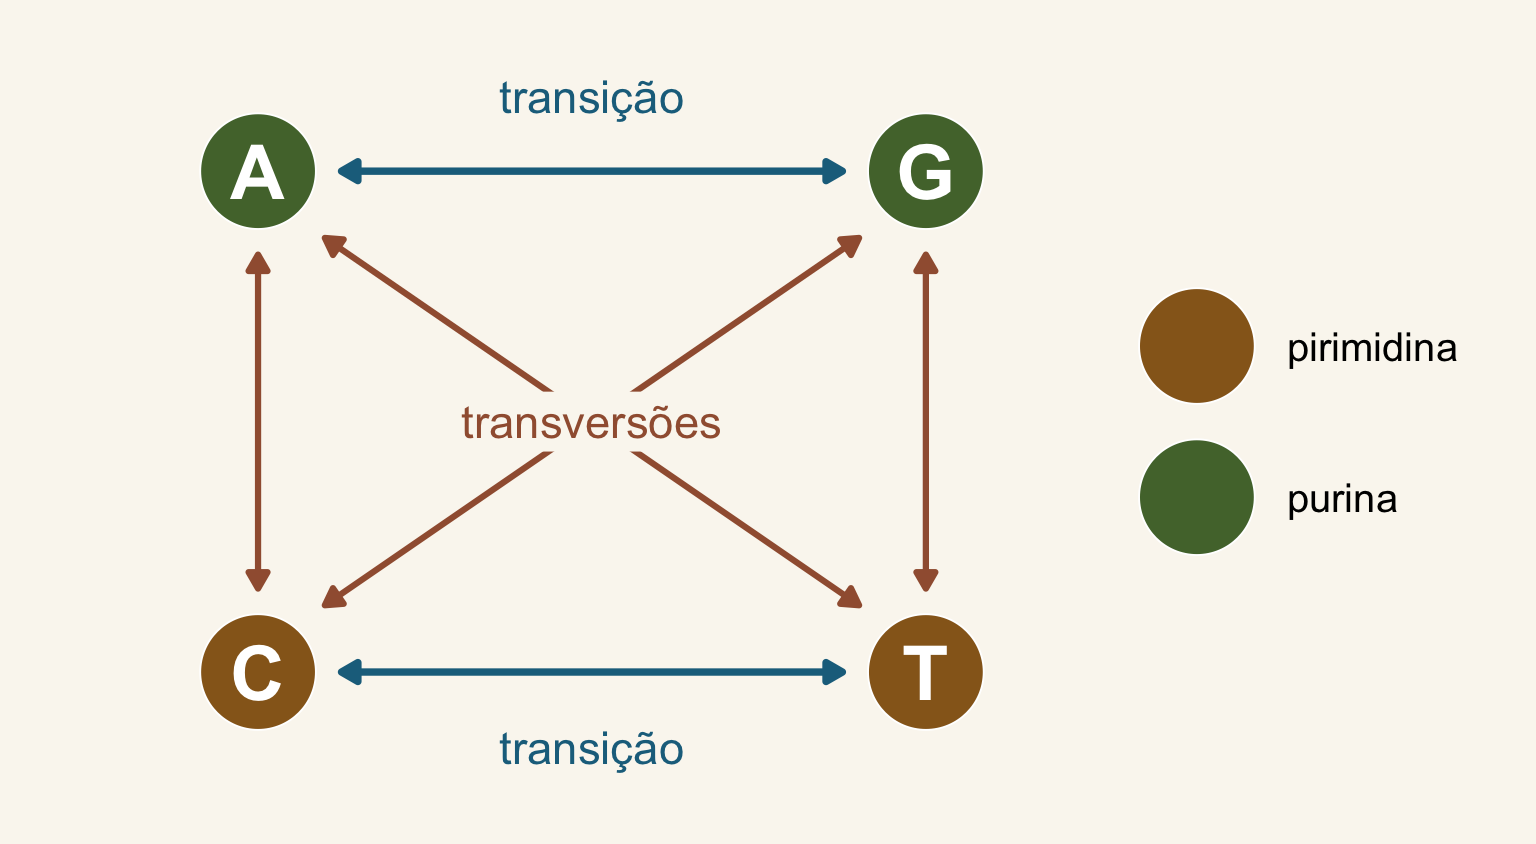
Transições: purina ↔︎ purina ou pirimidina ↔︎ pirimidina. Transversões: purina ↔︎ pirimidina. Redesenhado a partir de S. Carr, Memorial University.
O próximo estado depende só do estado atual, não de como se chegou nele: o processo tem “memória curta”.
Uma visualização interativa das cadeias de Markov: setosa.io/ev/markov-chains.
Esses pressupostos tornam possível modelar as substituições como um processo estocástico.
| Modelo | Frequências das bases | Taxas | Parâmetros |
|---|---|---|---|
| JC69 | iguais (¼ cada) | uma só | 0 |
| K2P | iguais | transição ≠ transversão | 1 |
| F81 | diferentes (A + T ≠ C + G) | uma só | 3 |
| HKY85 | diferentes | transição ≠ transversão | 4 |
| GTR | diferentes | uma por par de bases | 8 |
O K2P existe porque as transições costumam ser mais frequentes que as transversões; o HKY85 combina F81 e K2P; o GTR é o mais geral.
Jukes & Cantor (1969); Kimura (1980); Felsenstein (1981); Hasegawa, Kishino & Yano (1985); revisão em Yang & Rannala (2012). Parâmetros livres além dos comprimentos de ramo.

Os modelos de substituição usam o mesmo arcabouço (processos de Markov) que os métodos comparativos para caracteres discretos: correlação entre caracteres binários, caracteres multiestado, estados ordenados.
Redesenhado de O’Meara (2012), Annu. Rev. Ecol. Evol. Syst. 43: 267–285.
O processo de Markov adaptado para caracteres morfológicos: k estados e uma taxa única q para qualquer mudança (o “JC69 da morfologia”).
\[\mathbf{Q} = \begin{bmatrix} -(k-1)q & q & \cdots & q \\ q & -(k-1)q & \cdots & q \\ \vdots & & \ddots & \vdots \\ q & q & \cdots & -(k-1)q \end{bmatrix}\]
Lewis (2001), Syst. Biol. 50: 913–925.
Como evolui?

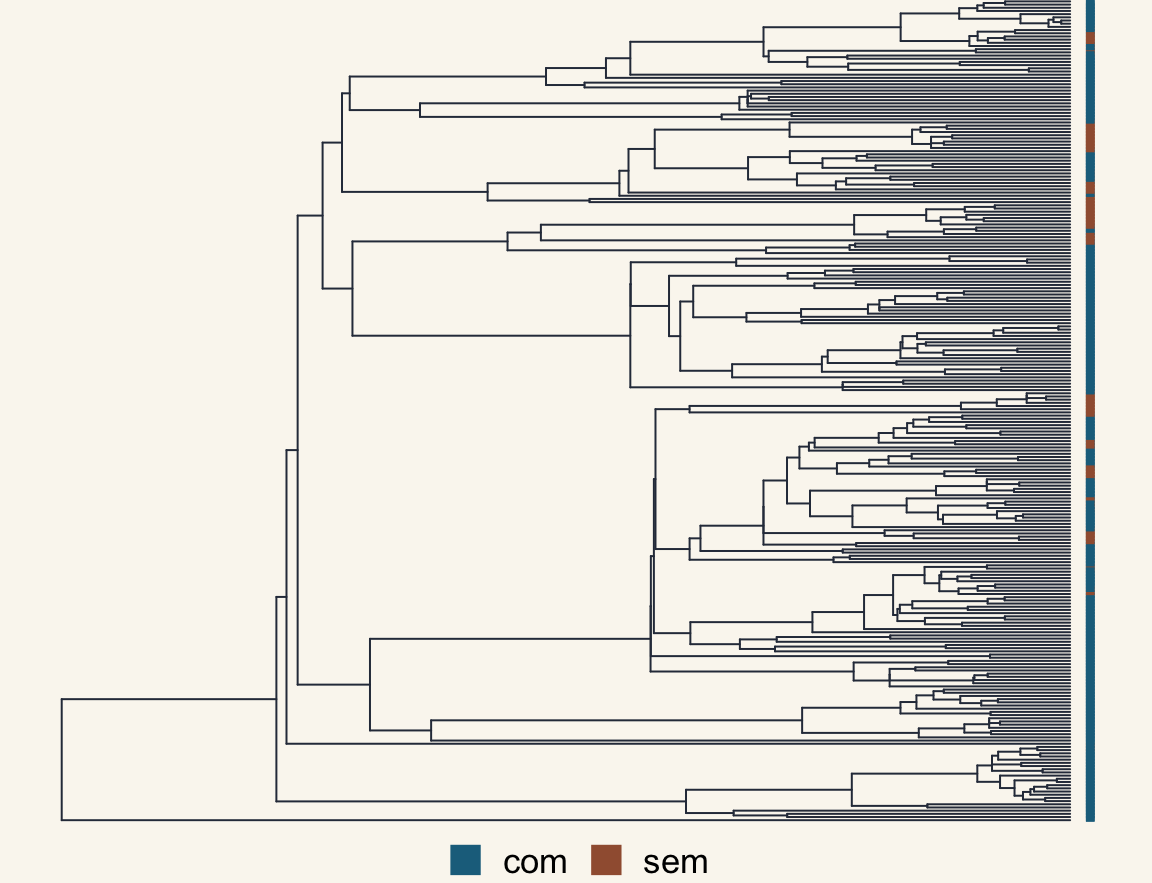
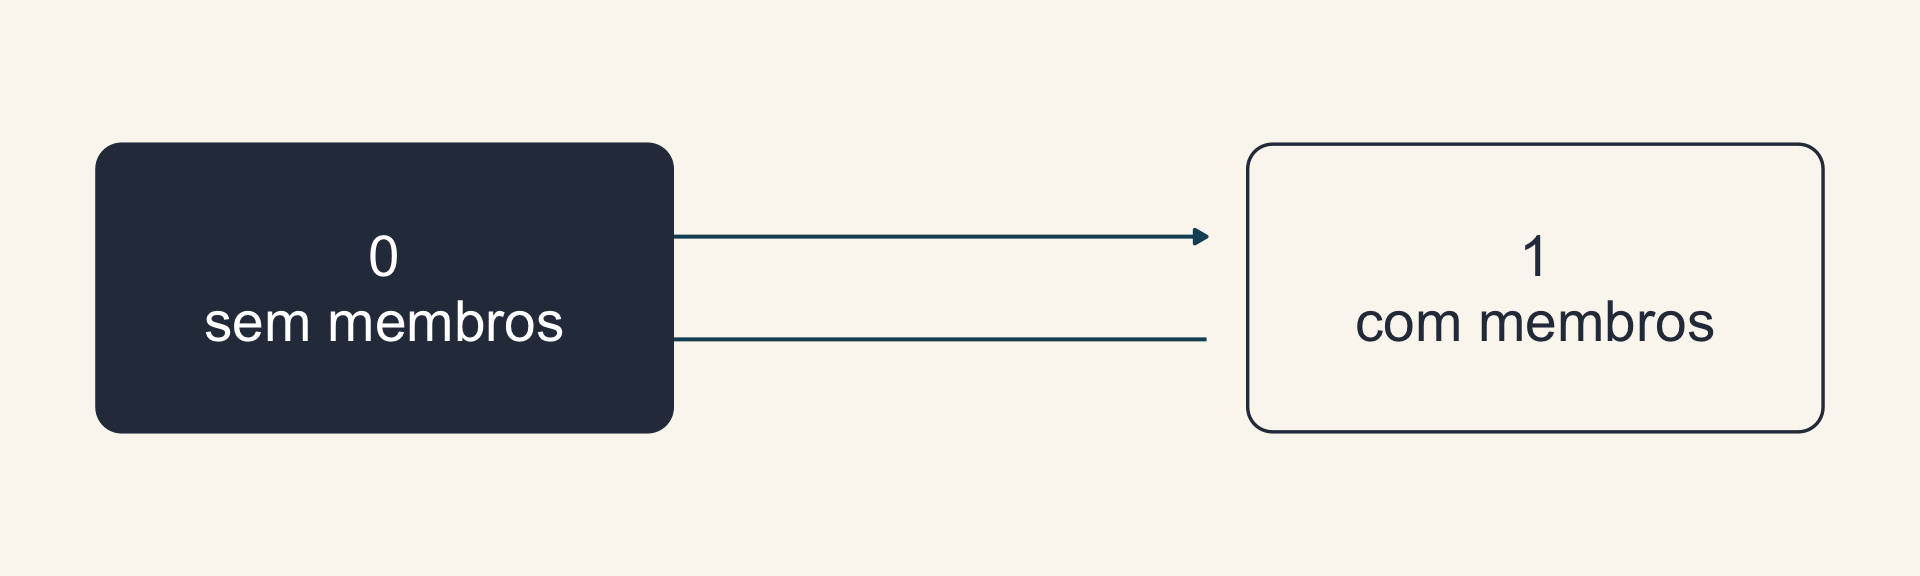
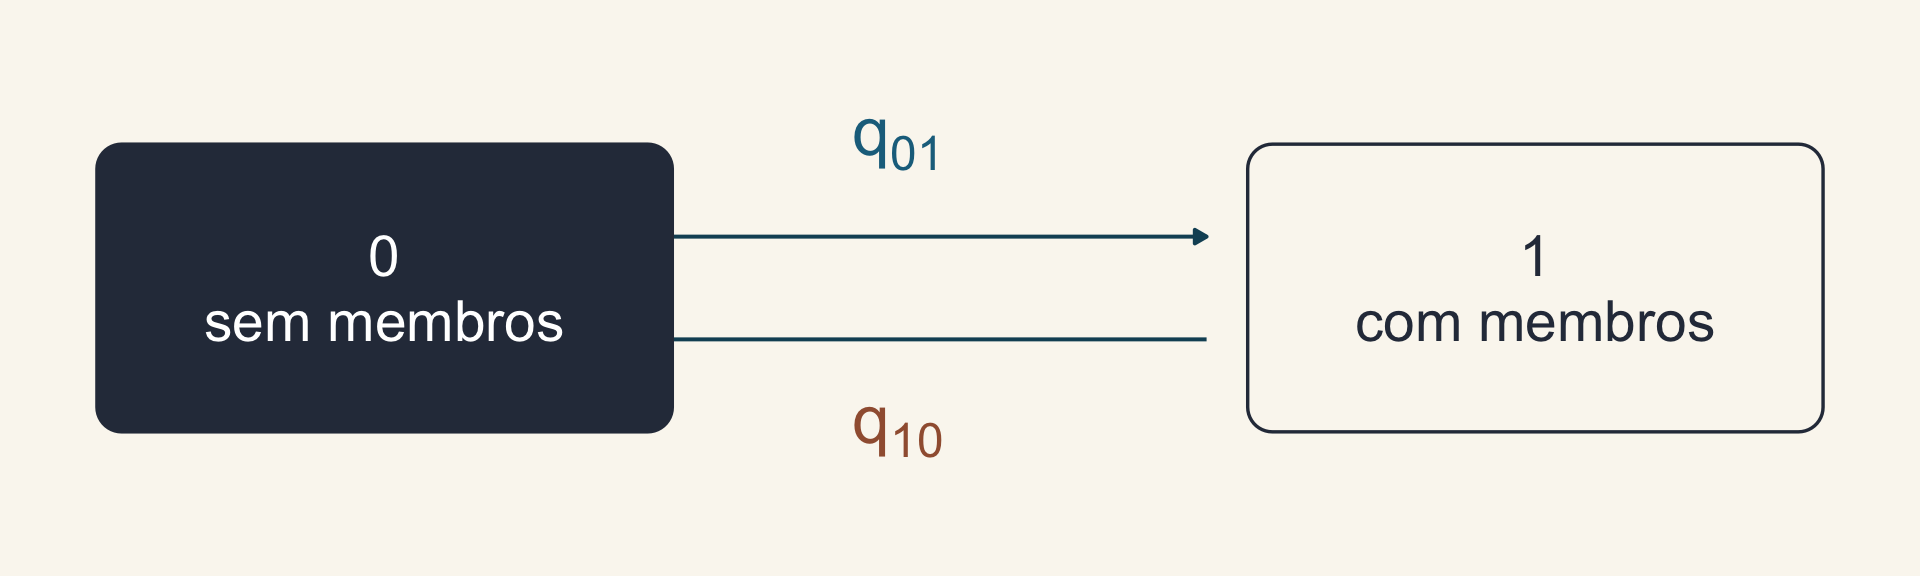
258 espécies, 51 sem membros. Dados de Brandley, Huelsenbeck & Wiens (2008), Evolution 62: 2042–2064, usados na prática.


q01 e q10 são taxas instantâneas de mudança de estado.


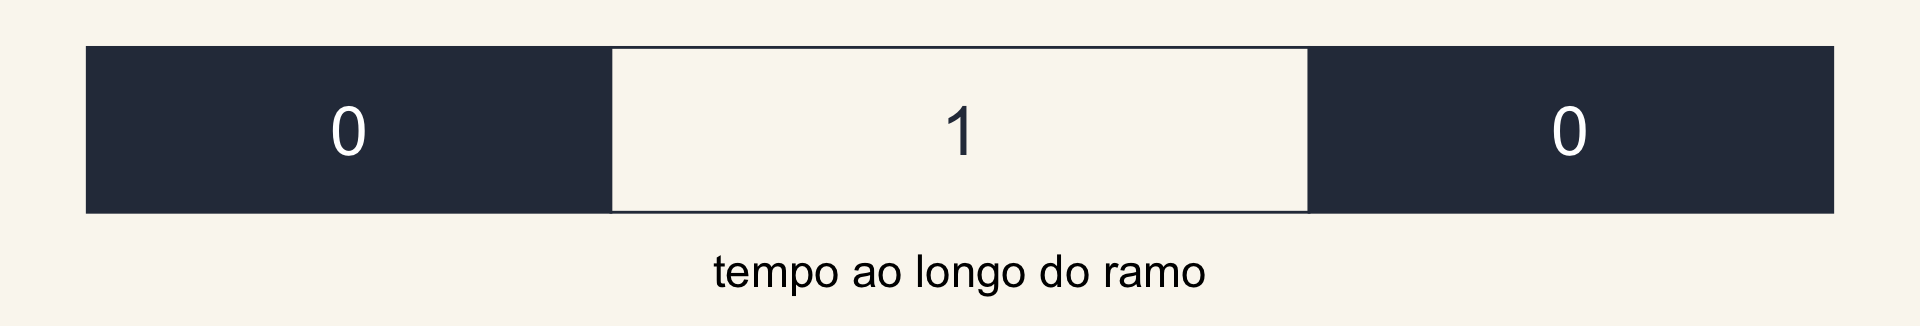
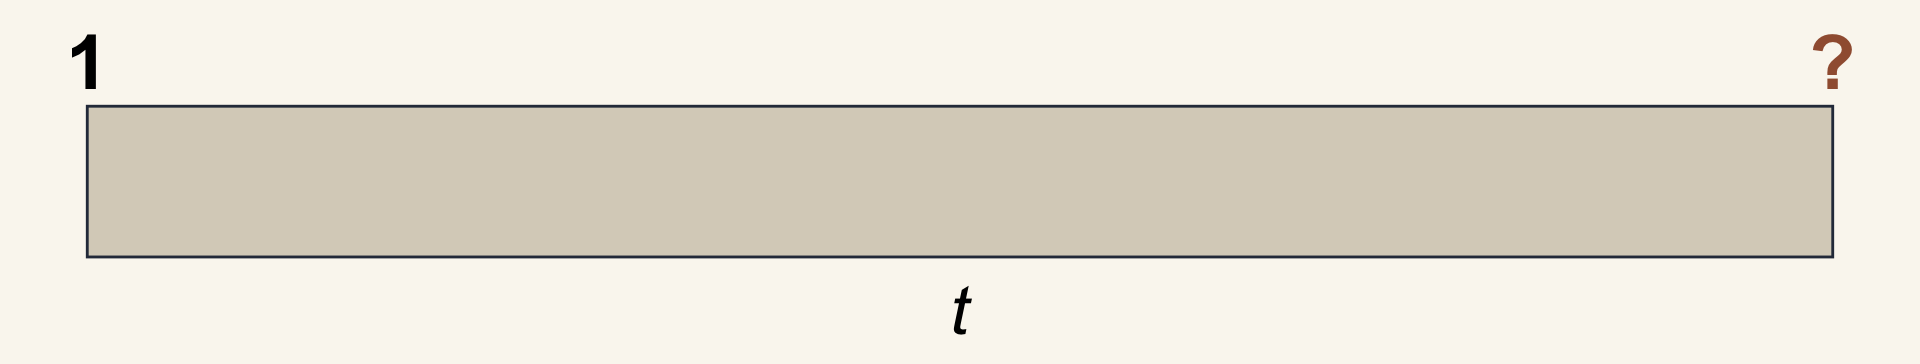
Sabemos o estado no início do ramo (1). Qual a probabilidade de, depois do tempo t, ele ter mudado para 0, ou seja, P10(t)?
\[\mathbf{Q} = \begin{bmatrix} -q_{01} & q_{01} \\ q_{10} & -q_{10} \end{bmatrix}\]
As probabilidades de transição ao longo de um ramo de comprimento t vêm da exponenciação da matriz:
\[\mathbf{P}(t) = e^{\mathbf{Q}t}\]
Pij(t): probabilidade de estar em j no fim do ramo, partindo de i. Cada linha de P(t) soma 1.
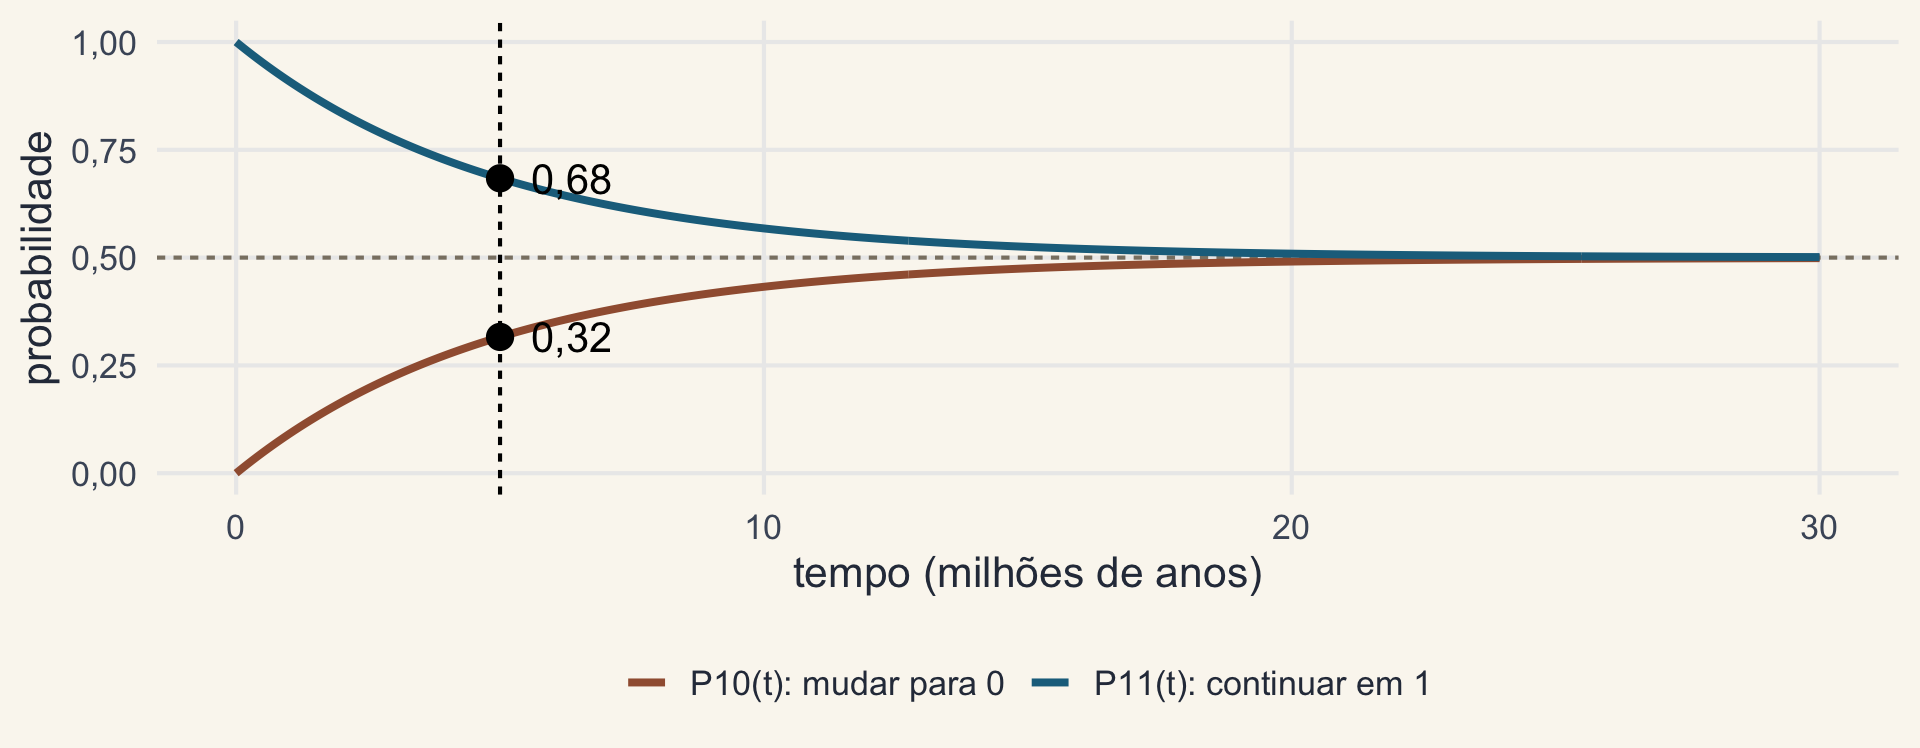
q01 = q10 = 0,1 e t = 5 milhões de anos
\[\mathbf{Q}t = \begin{bmatrix} -0{,}1 & 0{,}1 \\ 0{,}1 & -0{,}1 \end{bmatrix} \times 5 = \begin{bmatrix} -0{,}5 & 0{,}5 \\ 0{,}5 & -0{,}5 \end{bmatrix}\]
Com duas taxas iguais, a exponencial tem forma fechada:
\[P_{11}(t) = \tfrac{1}{2} + \tfrac{1}{2}e^{-2qt} = 0{,}5 + 0{,}5 \times e^{-1} = 0{,}5 + 0{,}184 = 0{,}684\]
\[e^{\mathbf{Q}t} = \begin{bmatrix} 0{,}68 & 0{,}32 \\ 0{,}32 & 0{,}68 \end{bmatrix}\]

Com o tempo, as duas probabilidades convergem para as frequências de equilíbrio (0,5 e 0,5): em ramos longos, o estado no início diz pouco sobre o estado no fim.

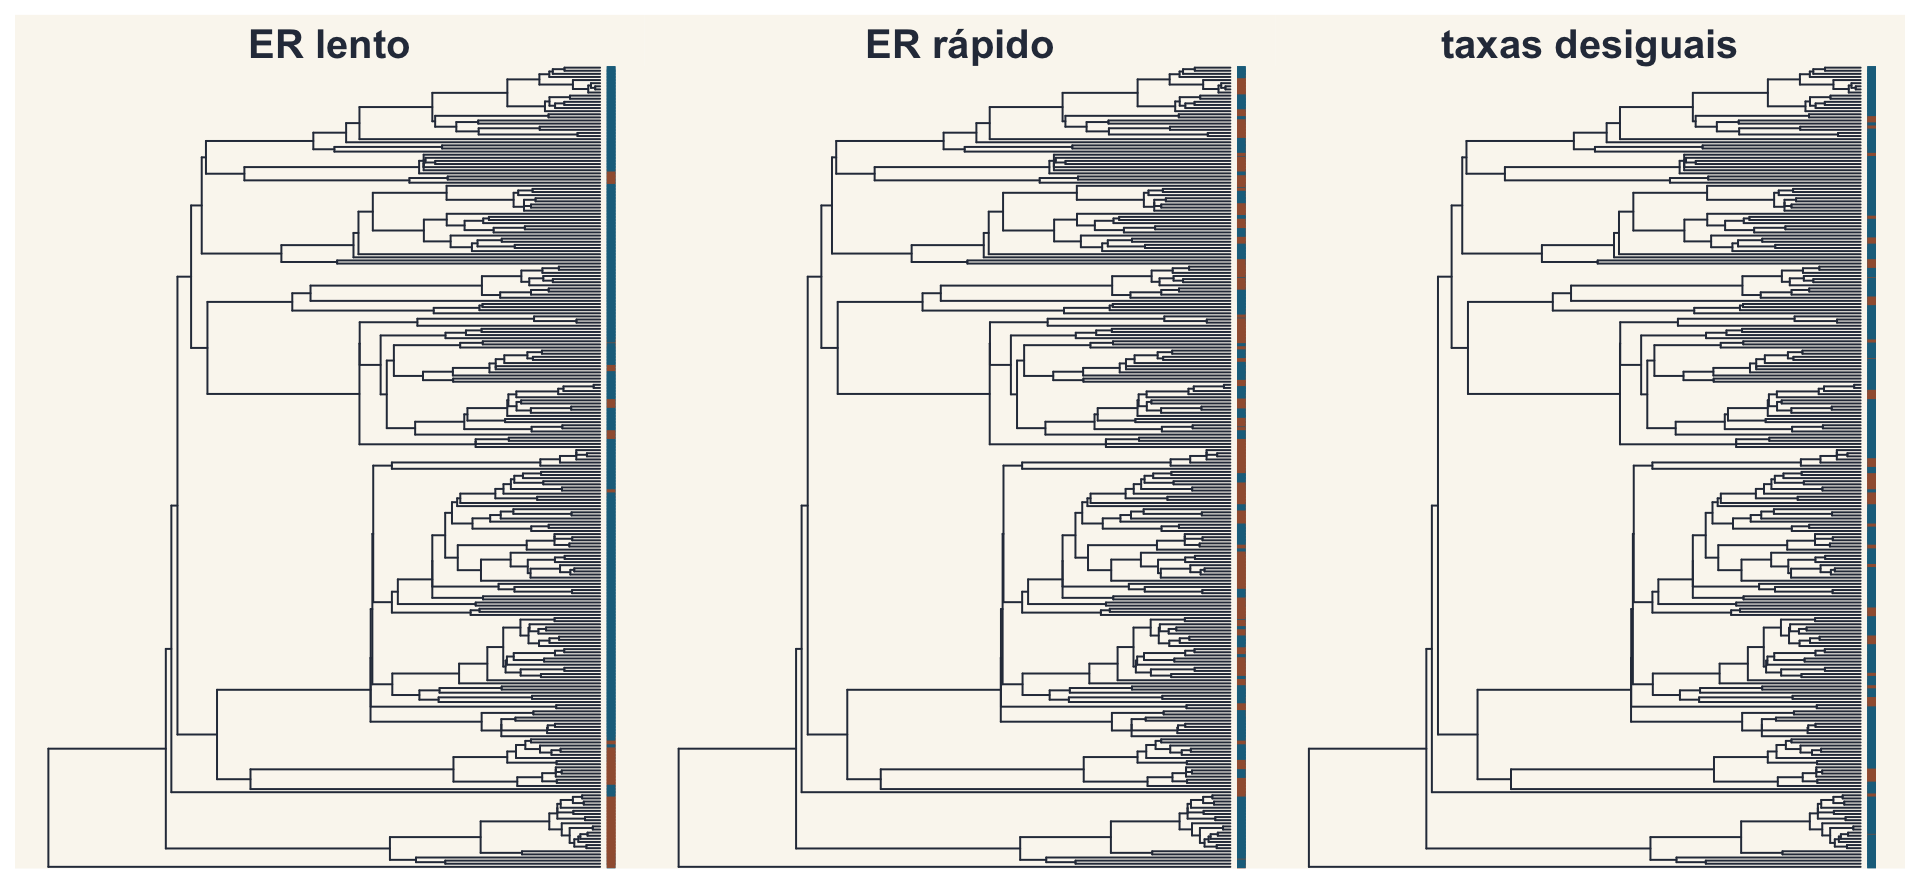
Simulações com phytools::sim.Mk na árvore dos Squamata (azul: com membros; ferrugem: sem). Ideia de Harmon (2019), cap. 7.
Como evolui?


Taxas iguais: log L = -80,5
\[\mathbf{Q}_{ER} = \begin{bmatrix} -0{,}0019 & 0{,}0019 \\ 0{,}0019 & -0{,}0019 \end{bmatrix}\]
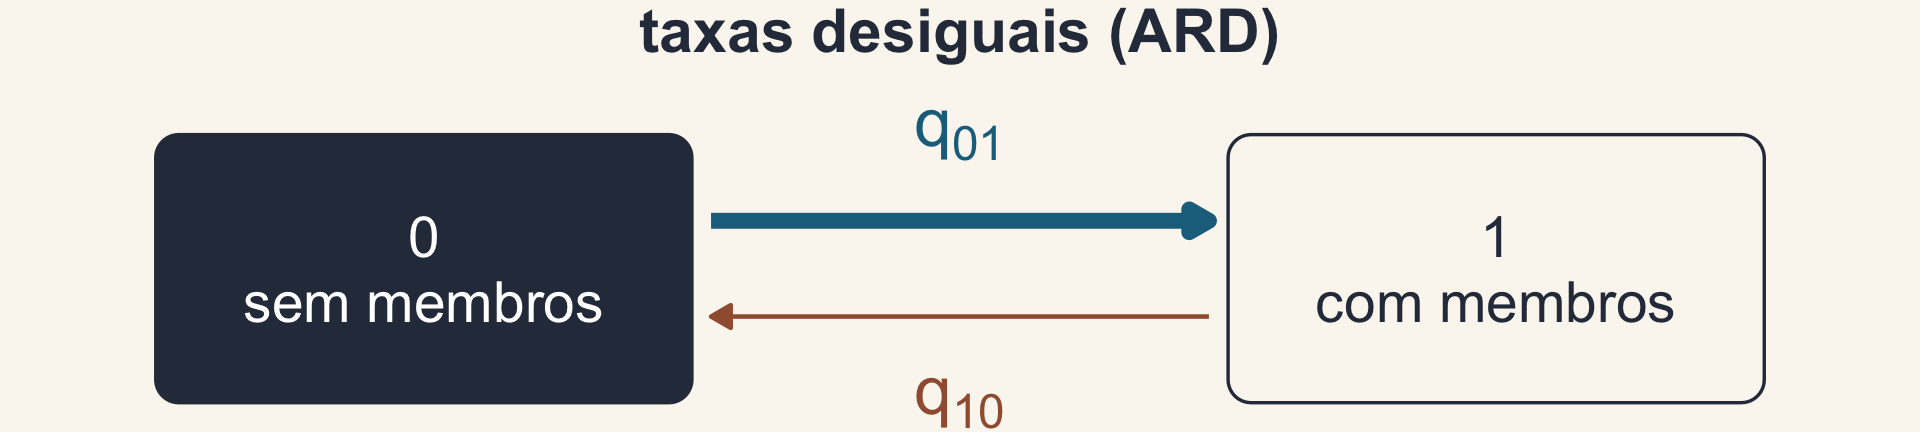
Taxas desiguais: log L = -79,4
\[\mathbf{Q}_{ARD} = \begin{bmatrix} -0{,}0016 & 0{,}0016 \\ 0{,}0038 & -0{,}0038 \end{bmatrix}\]
Linhas e colunas na ordem do geiger: com, sem membros.
AICc: 162,99 (ER) × 162,81 (ARD). A diferença é de 0,18: os dados não distinguem os dois modelos, e a taxa maior de “reganho” no ARD não tem suporte.
O Mk estima taxas, não o número de mudanças. Para contar quantas vezes os membros foram perdidos, é preciso reconstruir a história na árvore.
Os mesmos modelos servem para estimar os estados nos nós internos e para o mapeamento estocástico: é o tema da Aula 7.
Em vez de um valor ótimo, a distribuição posterior das taxas.
Como evolui?

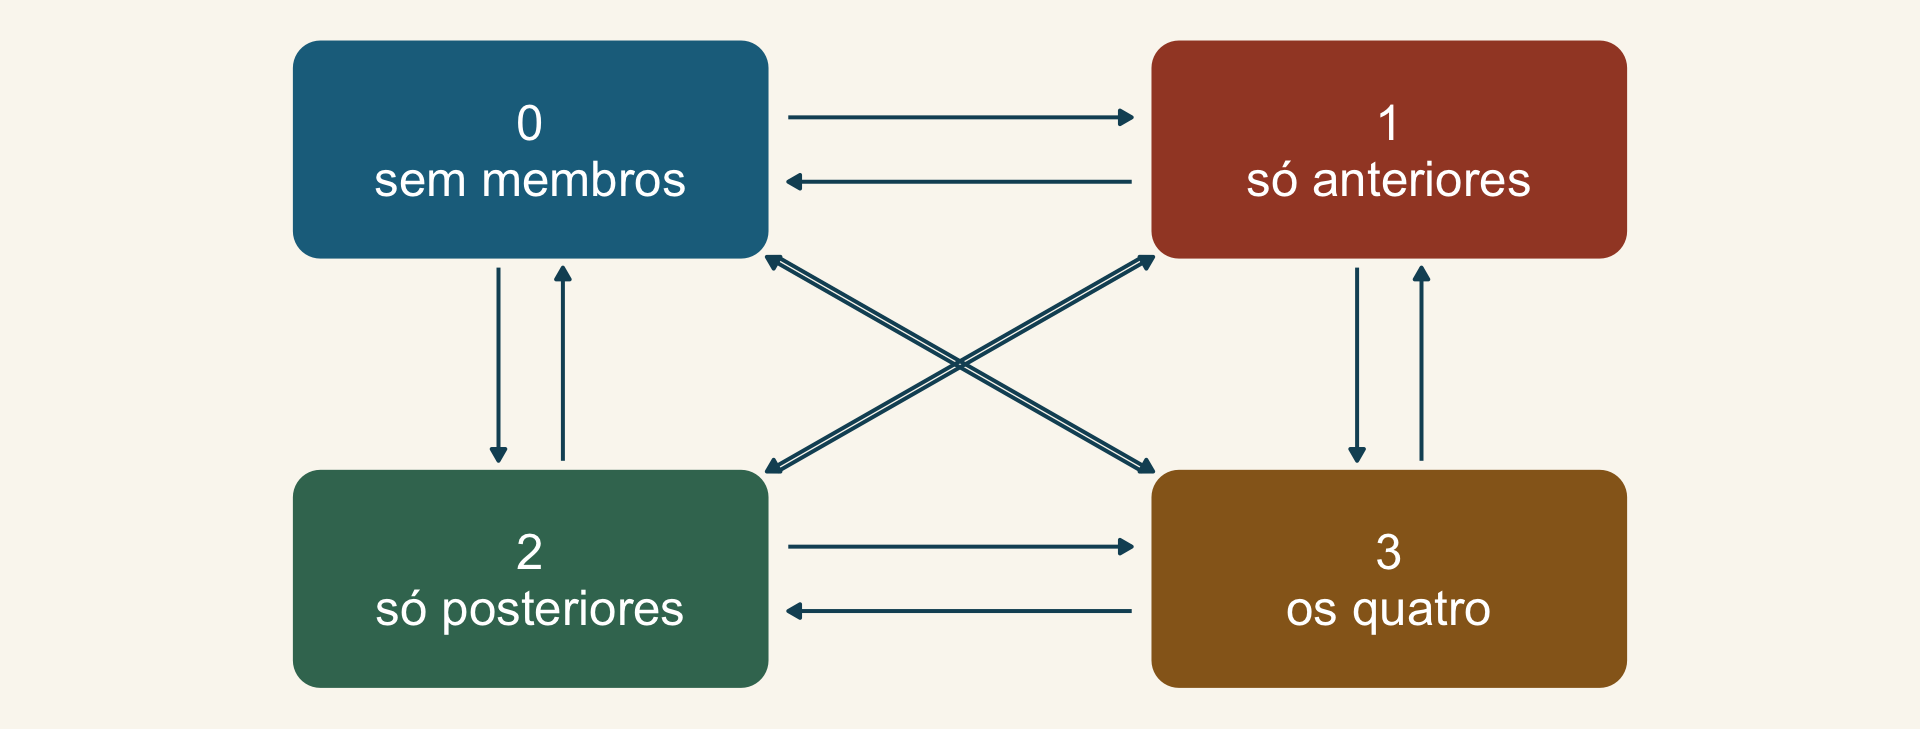
Os Squamata da prática: 51 sem membros, 3 só com os anteriores, 41 só com os posteriores e 163 com os quatro.


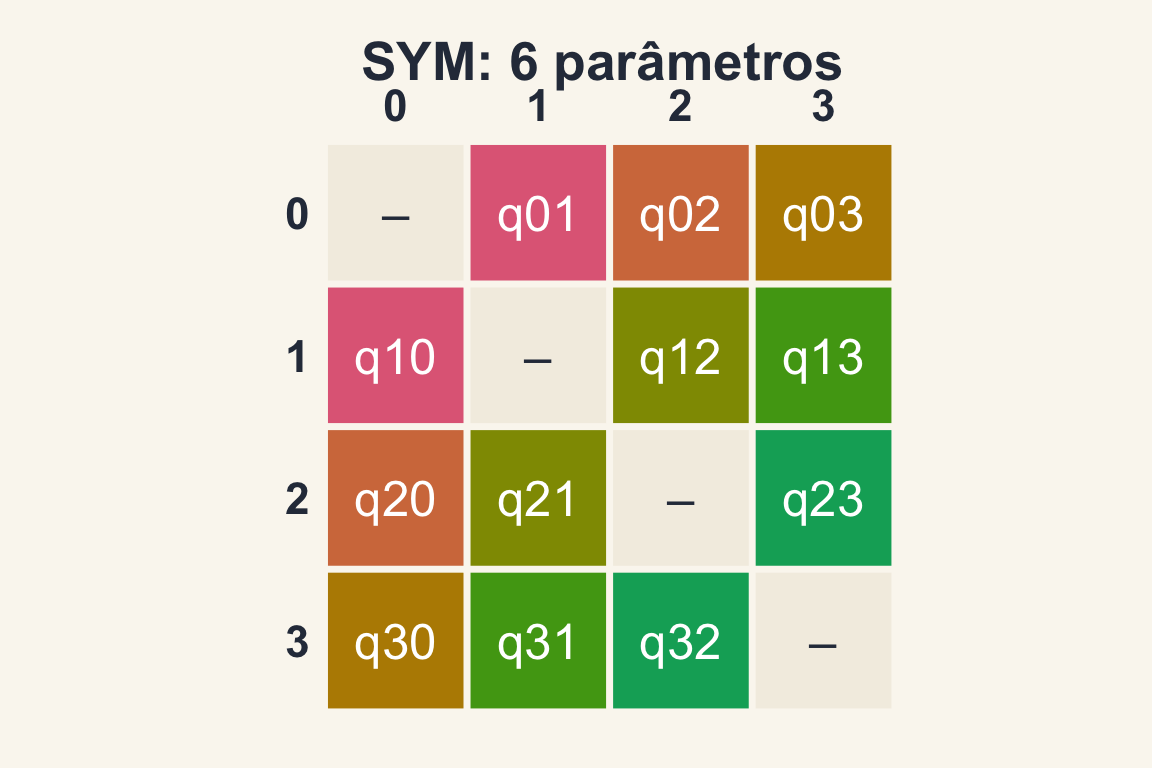
SYM: a taxa de i para j é igual à de j para i.

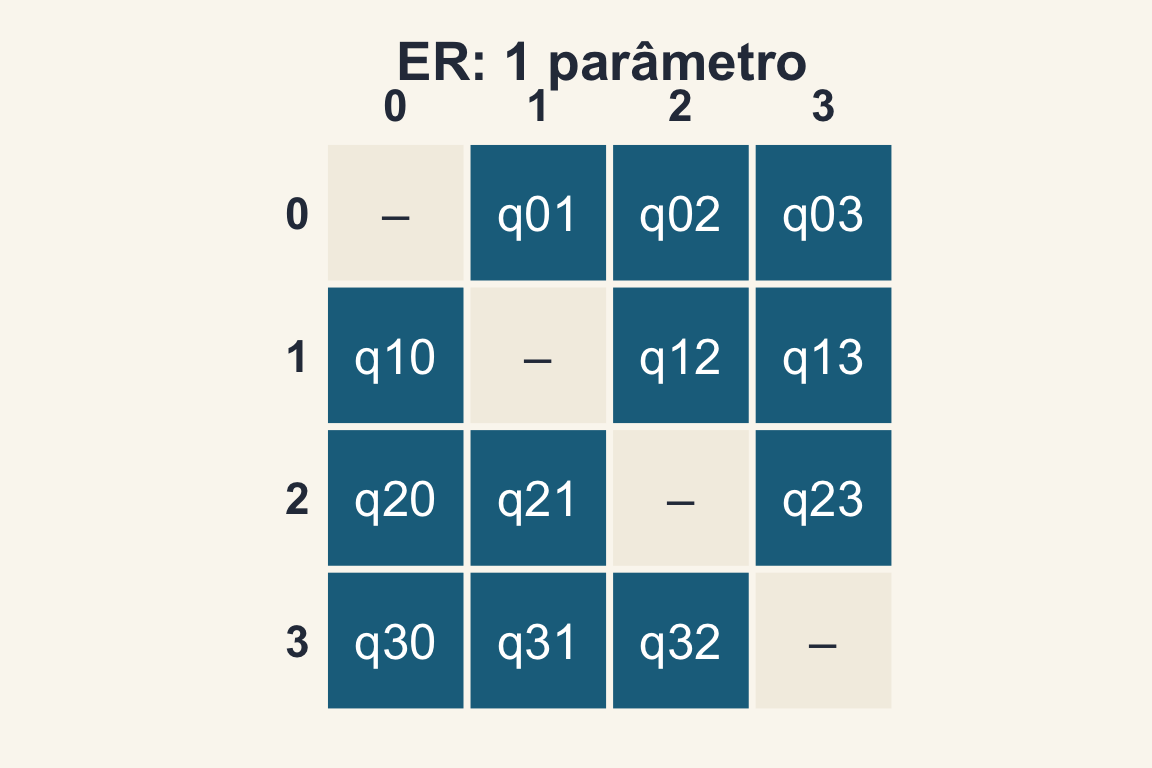
| Modelo | k | log L | AICc | ΔAICc | wi |
|---|---|---|---|---|---|
| ER | 1 | -137,2 | 276,4 | 14,7 | 0,001 |
| SYM | 6 | -124,7 | 261,7 | 0,0 | 0,942 |
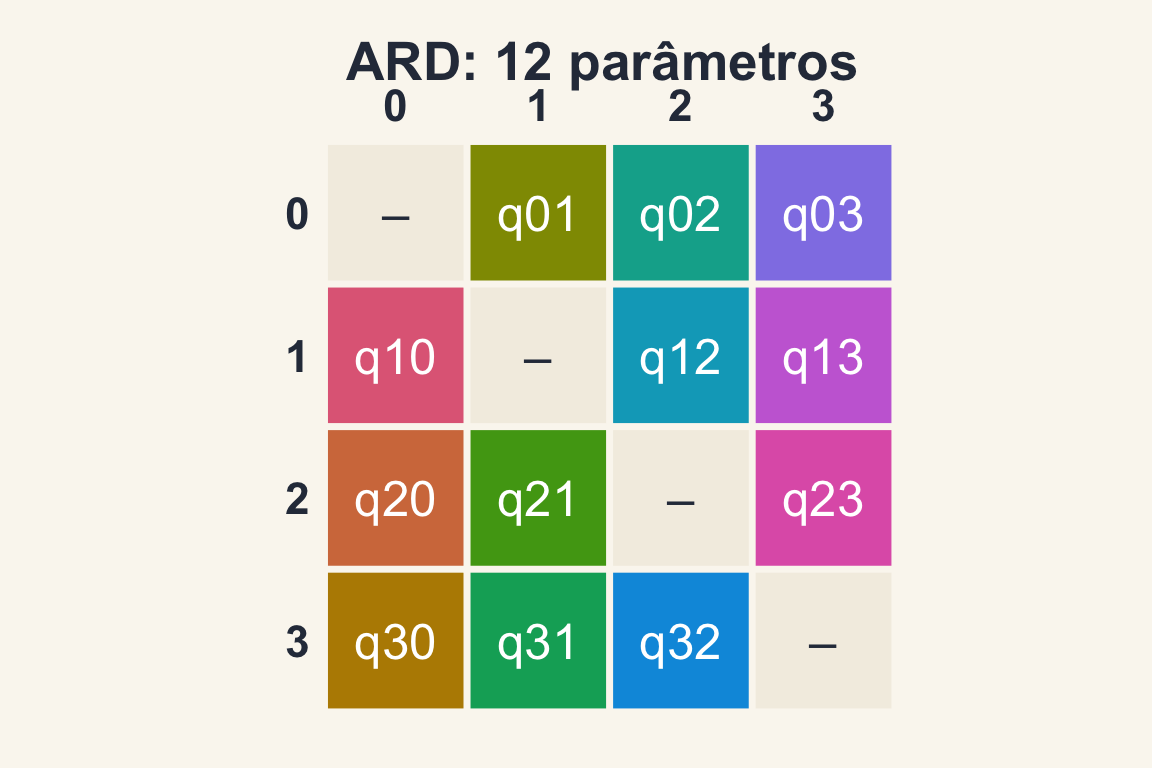
| ARD | 12 | -121,0 | 267,3 | 5,6 | 0,057 |
O modelo simétrico vence: as taxas variam entre pares de estados, mas os dados não sustentam taxas diferentes nos dois sentidos.
Como evolui?

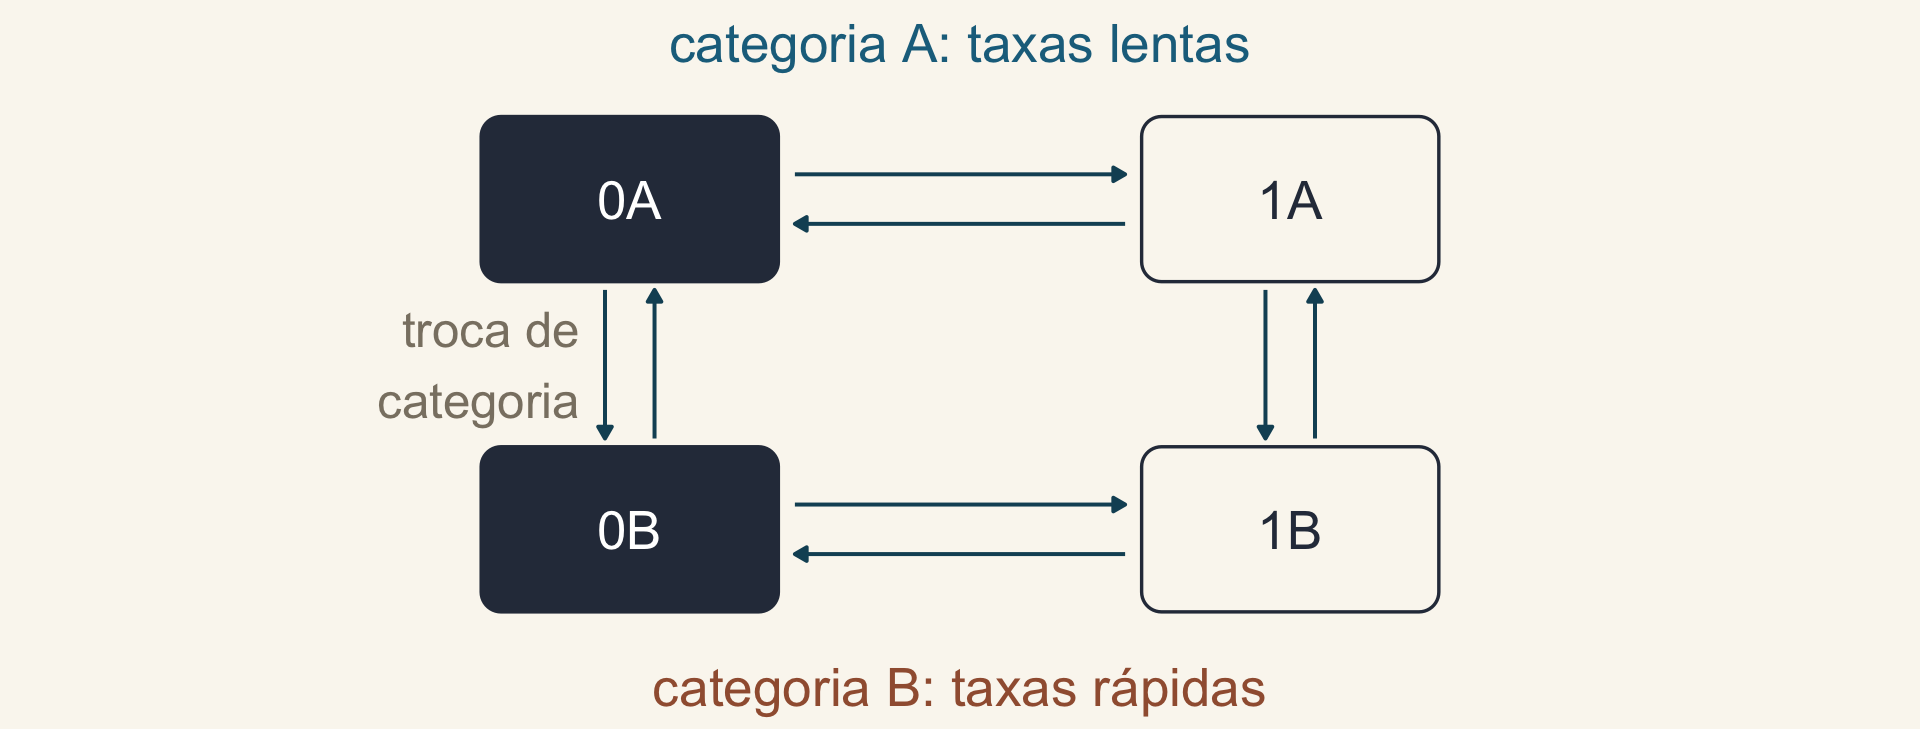
Cada estado observado (0, 1) se divide em categorias não observadas (A, B) com taxas próprias: o modelo de Markov oculto (HMM).
Beaulieu, O’Meara & Donoghue (2013), Syst. Biol. 62: 725–737; pacote corHMM.
Estão associados?
Perguntas mais comuns:
Pagel (1994), Proc. R. Soc. B 255: 37–45.

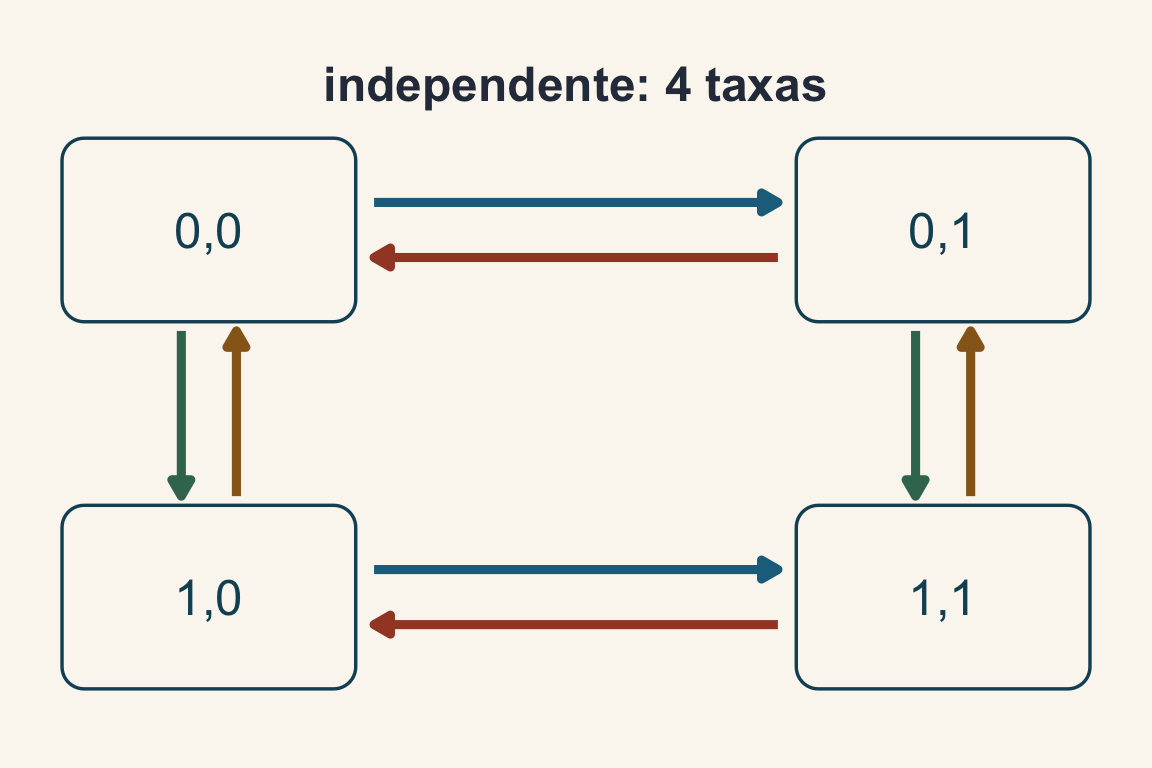
As taxas de um caráter não dependem do estado do outro.

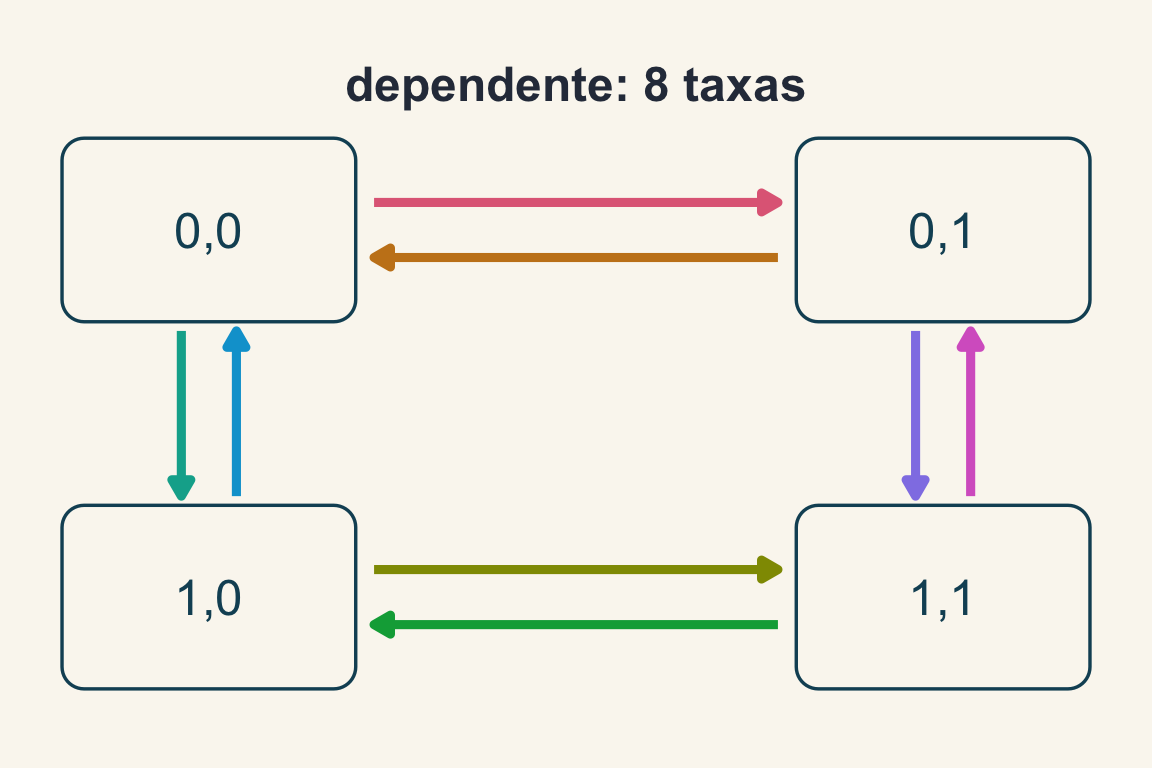
As taxas de um caráter dependem do estado do outro.
Estados (X, Y): 0,0 · 0,1 · 1,0 · 1,1
\[\mathbf{Q} = \begin{bmatrix} -(q_{12}+q_{13}) & q_{12} & q_{13} & 0 \\ q_{21} & -(q_{21}+q_{24}) & 0 & q_{24} \\ q_{31} & 0 & -(q_{31}+q_{34}) & q_{34} \\ 0 & q_{42} & q_{43} & -(q_{42}+q_{43}) \end{bmatrix}\]
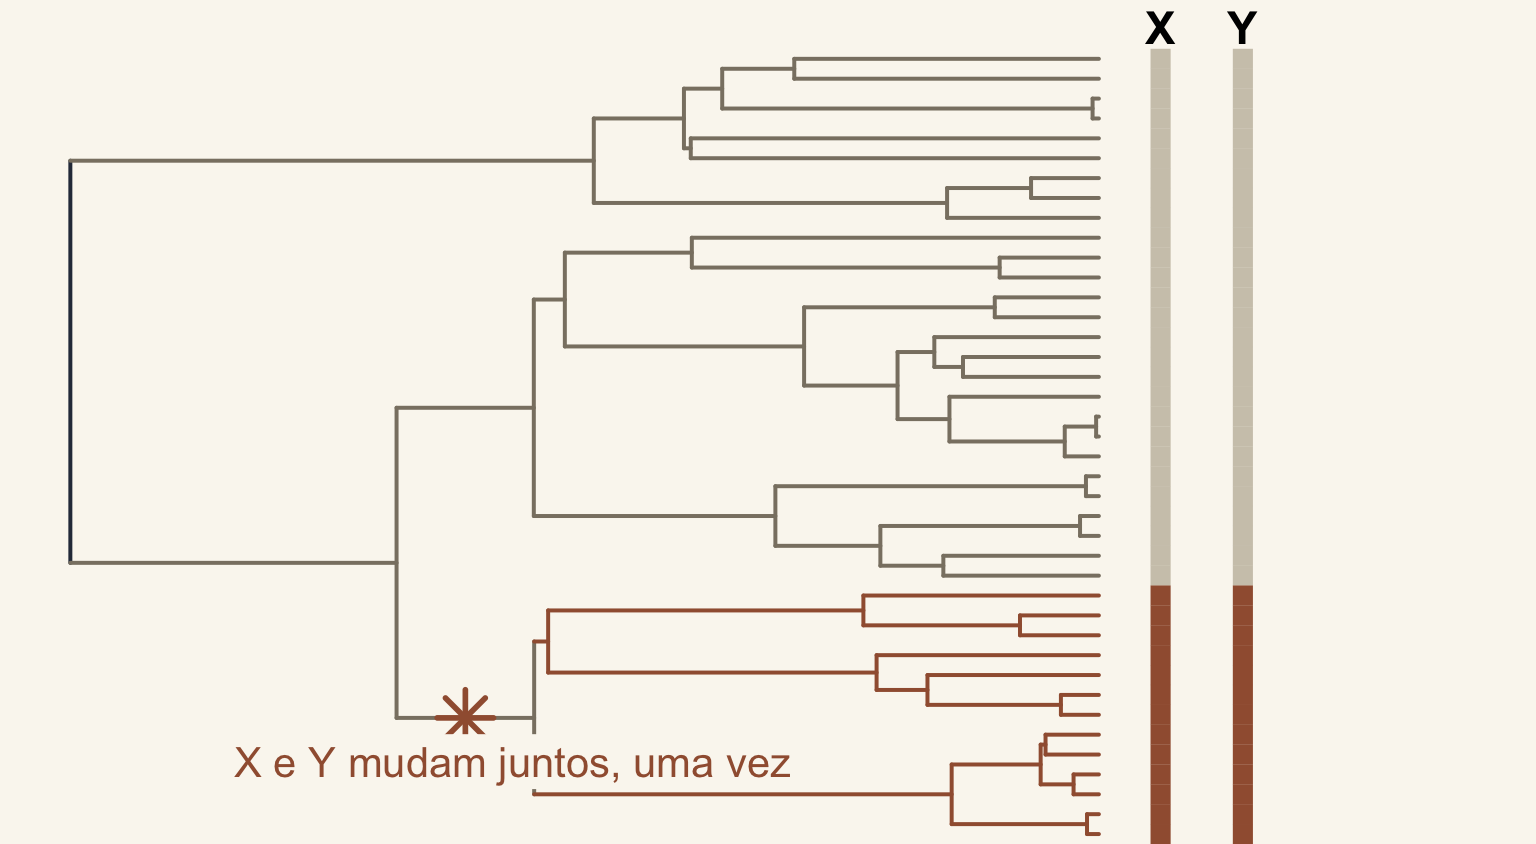
Dados da prática (300 espécies): log L = -233,0 (independente) × -206,6 (dependente); p < 0,001.

Uma única mudança conjunta, num clado, basta para o teste de Pagel apontar correlação “significativa”.
Maddison & FitzJohn (2015), Syst. Biol. 64: 127–136; Uyeda, Zenil-Ferguson & Pennell (2018), Syst. Biol. 67: 1091–1109.
Se a variação de taxas ao longo da árvore entra no modelo independente, uma mudança única deixa de favorecer o modelo dependente.
Boyko & Beaulieu (2023), Syst. Biol. 72: 476–488; Boyko & Beaulieu (2021), Methods Ecol. Evol. 12: 468–478.
| Modelo | log L | AICc | ΔAICc | wi |
|---|---|---|---|---|
| independente | -233,4 | 474,9 | 44,3 | < 0,001 |
| independente + taxas ocultas | -206,5 | 433,8 | 3,3 | 0,164 |
| correlacionado | -207,0 | 430,6 | 0,0 | 0,836 |
| correlacionado + taxas ocultas | -205,1 | 448,7 | 18,1 | < 0,001 |
O modelo independente com taxas ocultas ajusta quase tão bem quanto o correlacionado: o suporte à correlação continua, mas bem mais modesto do que o teste de Pagel sugeria (p < 0,001).
btw chama o BayesTraits (exige o executável instalado e não é atualizado desde 2021)corHMM faz o teste completo dentro do RPagel & Meade (2006), Am. Nat. 167: 808–825; BayesTraits.
Estão associados?
Diferença em relação ao Mk
Felsenstein (2012), Am. Nat. 179: 145–156.
Wright (1934), Genetics 19: 506–536.

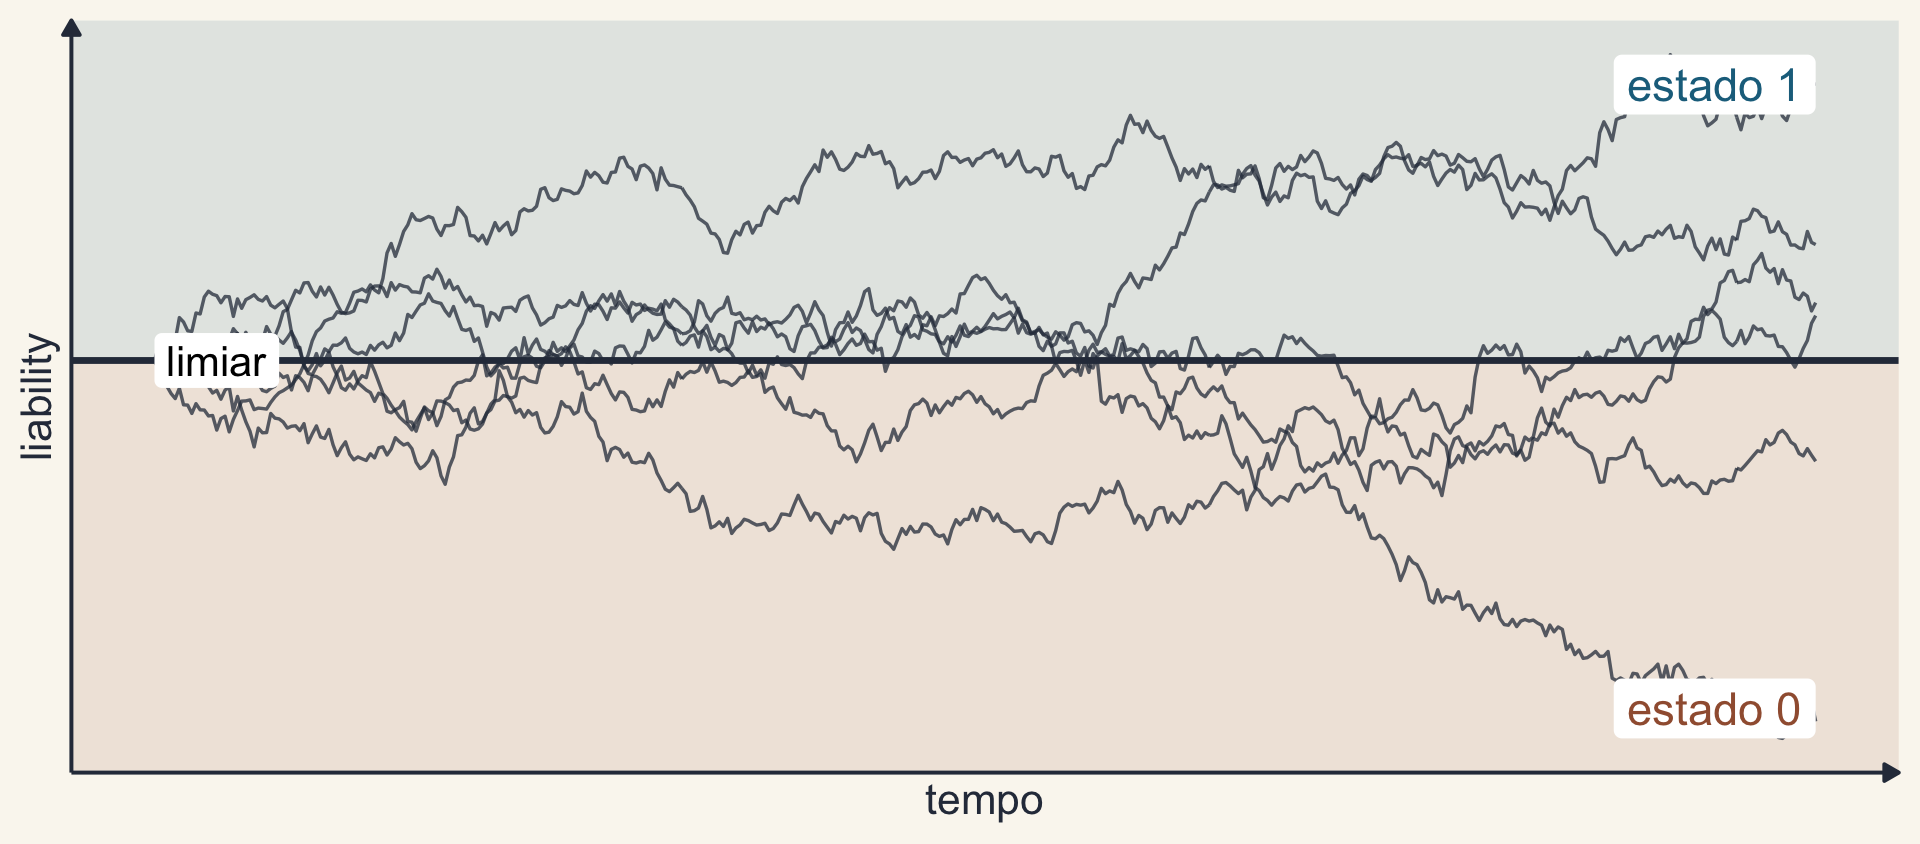
A liability evolui como no BM; só vemos de que lado do limiar ela está. Ideia do blog do phytools; estados ancestrais sob o limiar: Revell (2014), Evolution 68: 743–759.
phytools (threshBayes) ou por verossimilhança no programa threshml, de J. FelsensteinFelsenstein (2012), Am. Nat. 179: 145–156.


Pagel deu p < 0,001 Mas foi uma mudança só, num clado
Almeida Júnior, Caipira picando fumo (1893), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 6 e o desafio.
Métodos Filogenéticos Comparativos · PPGBA/UFMS