Regressão filogenética (PGLS)

Aula 5 · Métodos Filogenéticos Comparativos · PPGBA/UFMS

Diogo B. Provete

Hoje

  1. Do OLS ao GLS
  2. PGLS na prática
  3. Diagnóstico
  4. ANOVA e ANCOVA filogenéticas
  5. Além do PGLS: GLM filogenético
  6. Quando a correlação muda na árvore
  7. Incerteza filogenética

Onde estamos

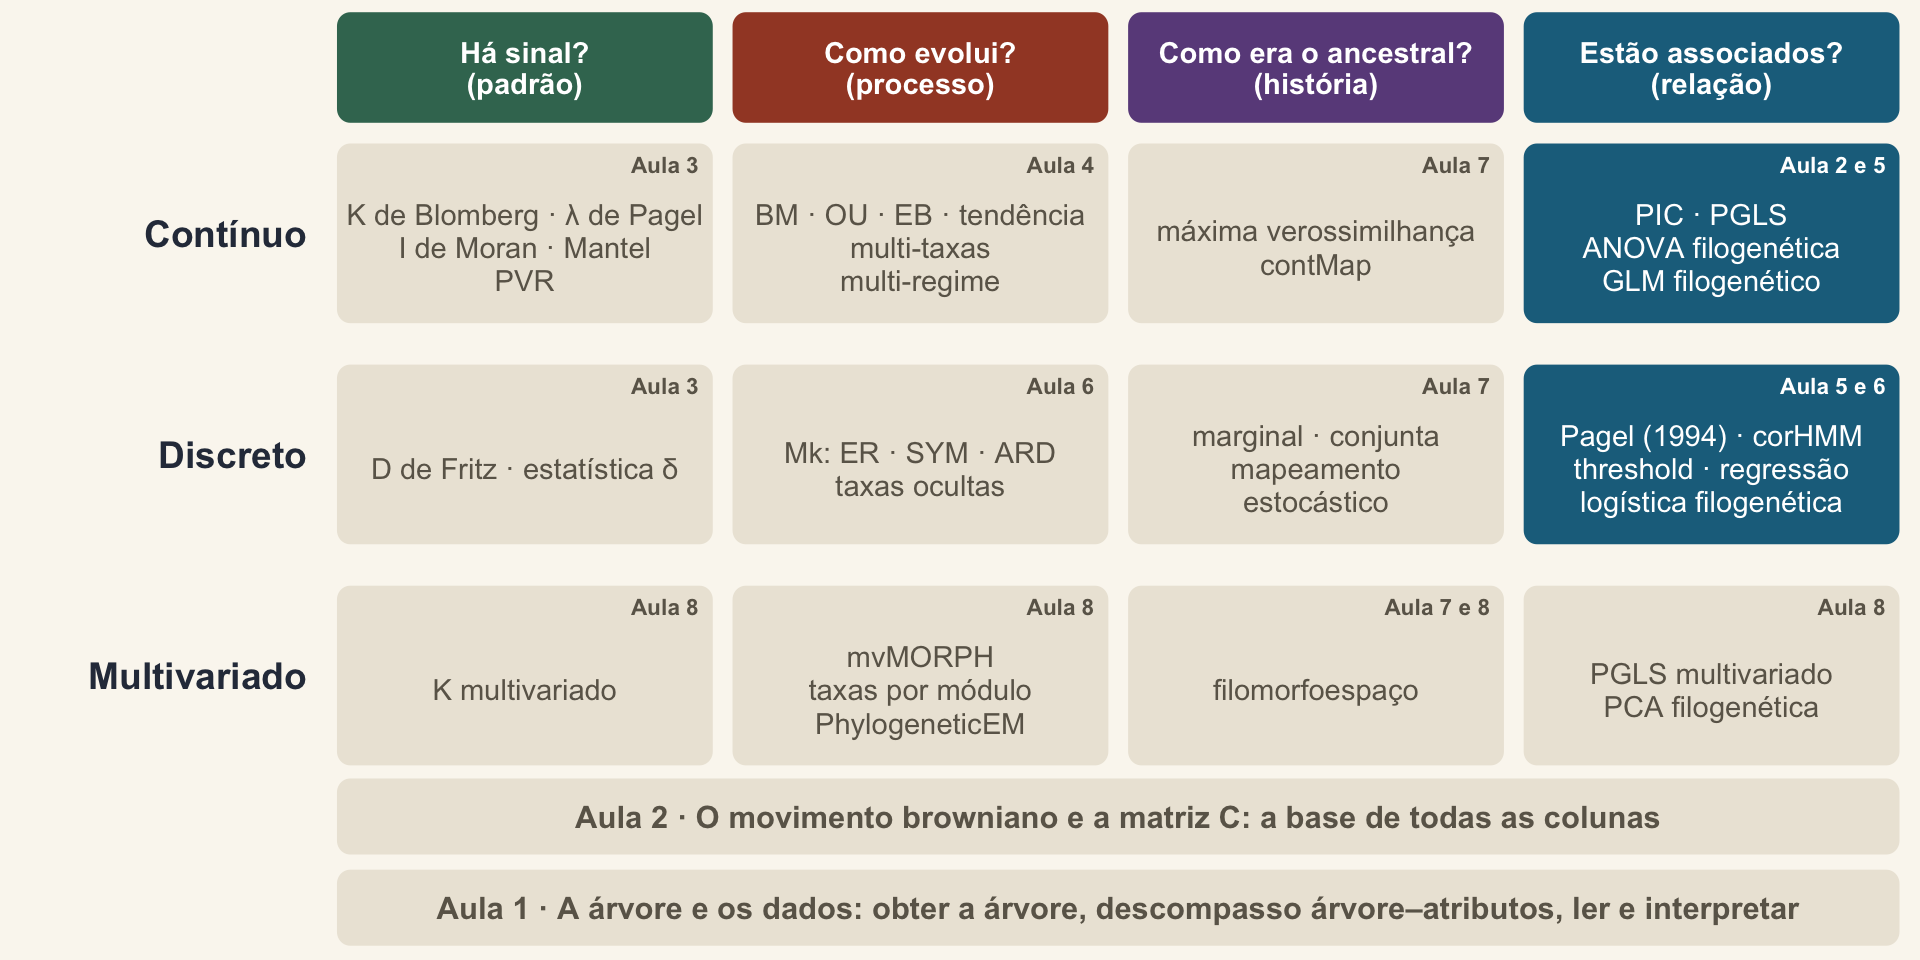
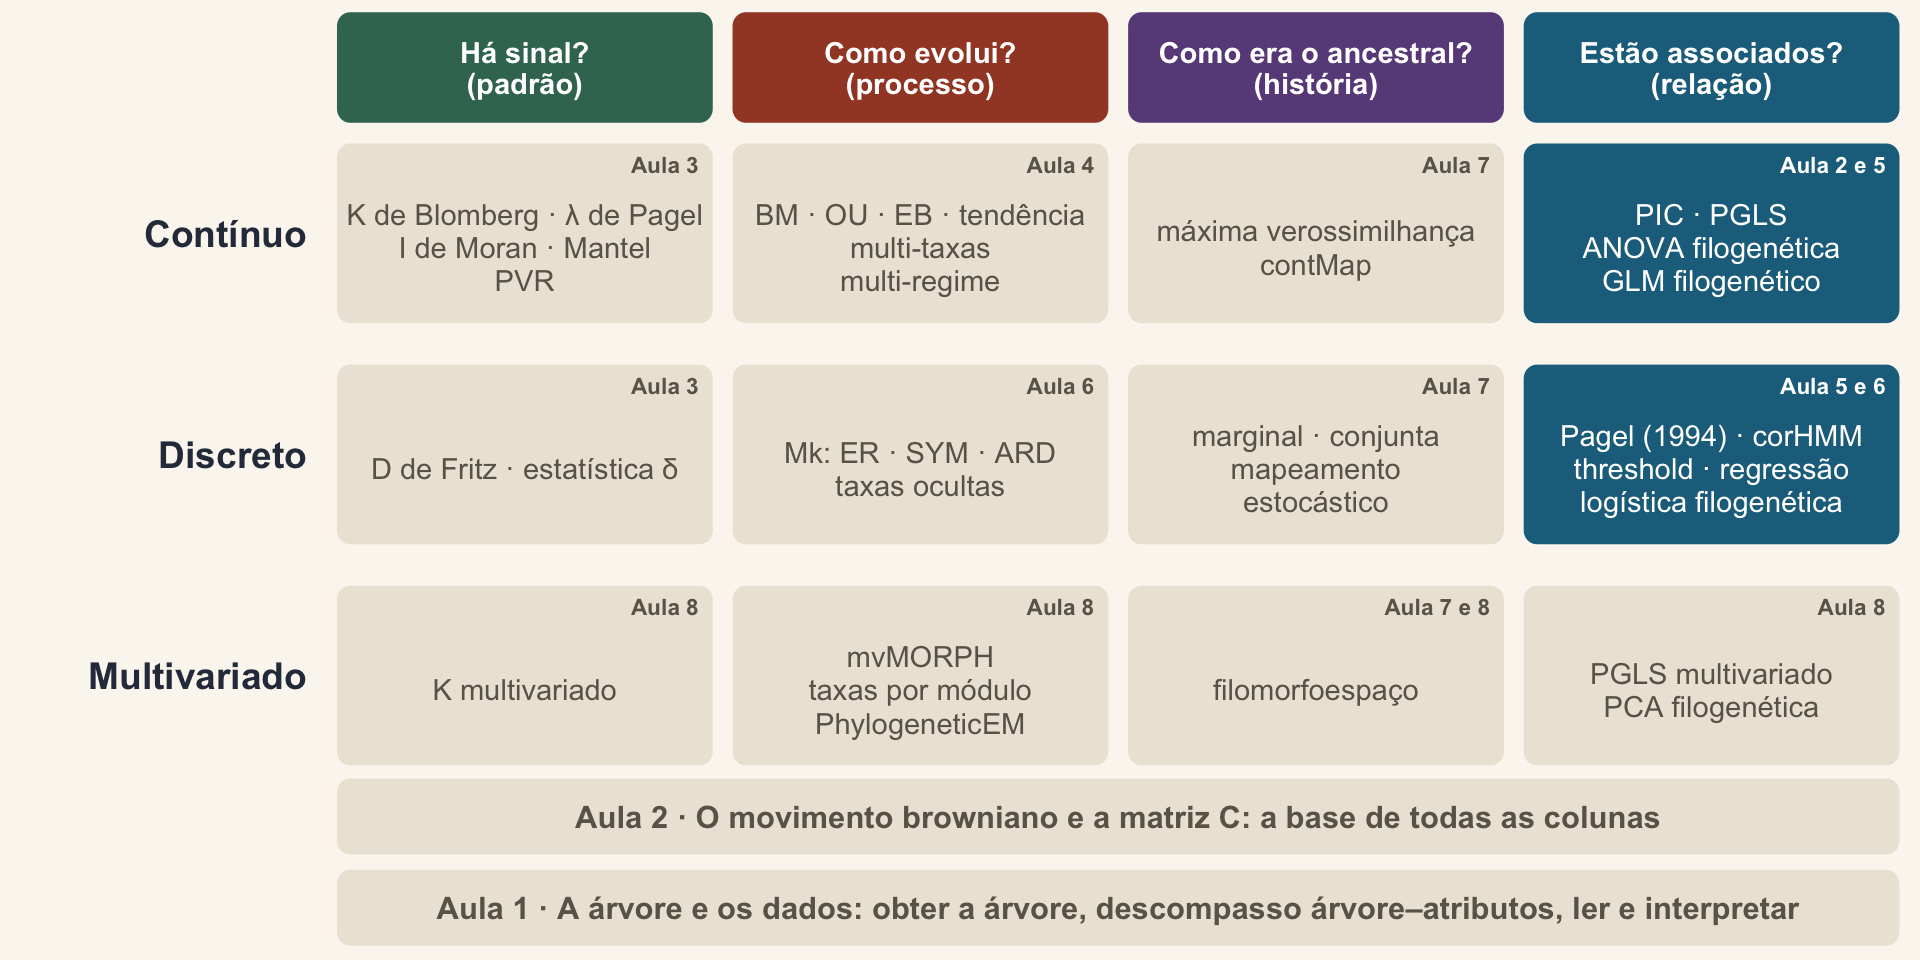
Mapa dos métodos com a célula dos atributos contínuos associados (PIC, PGLS, ANOVA filogenética, GLM filogenético) destacada.

1. Do OLS ao GLS

Estão associados?

Antes, relembrando o modelo linear (OLS)
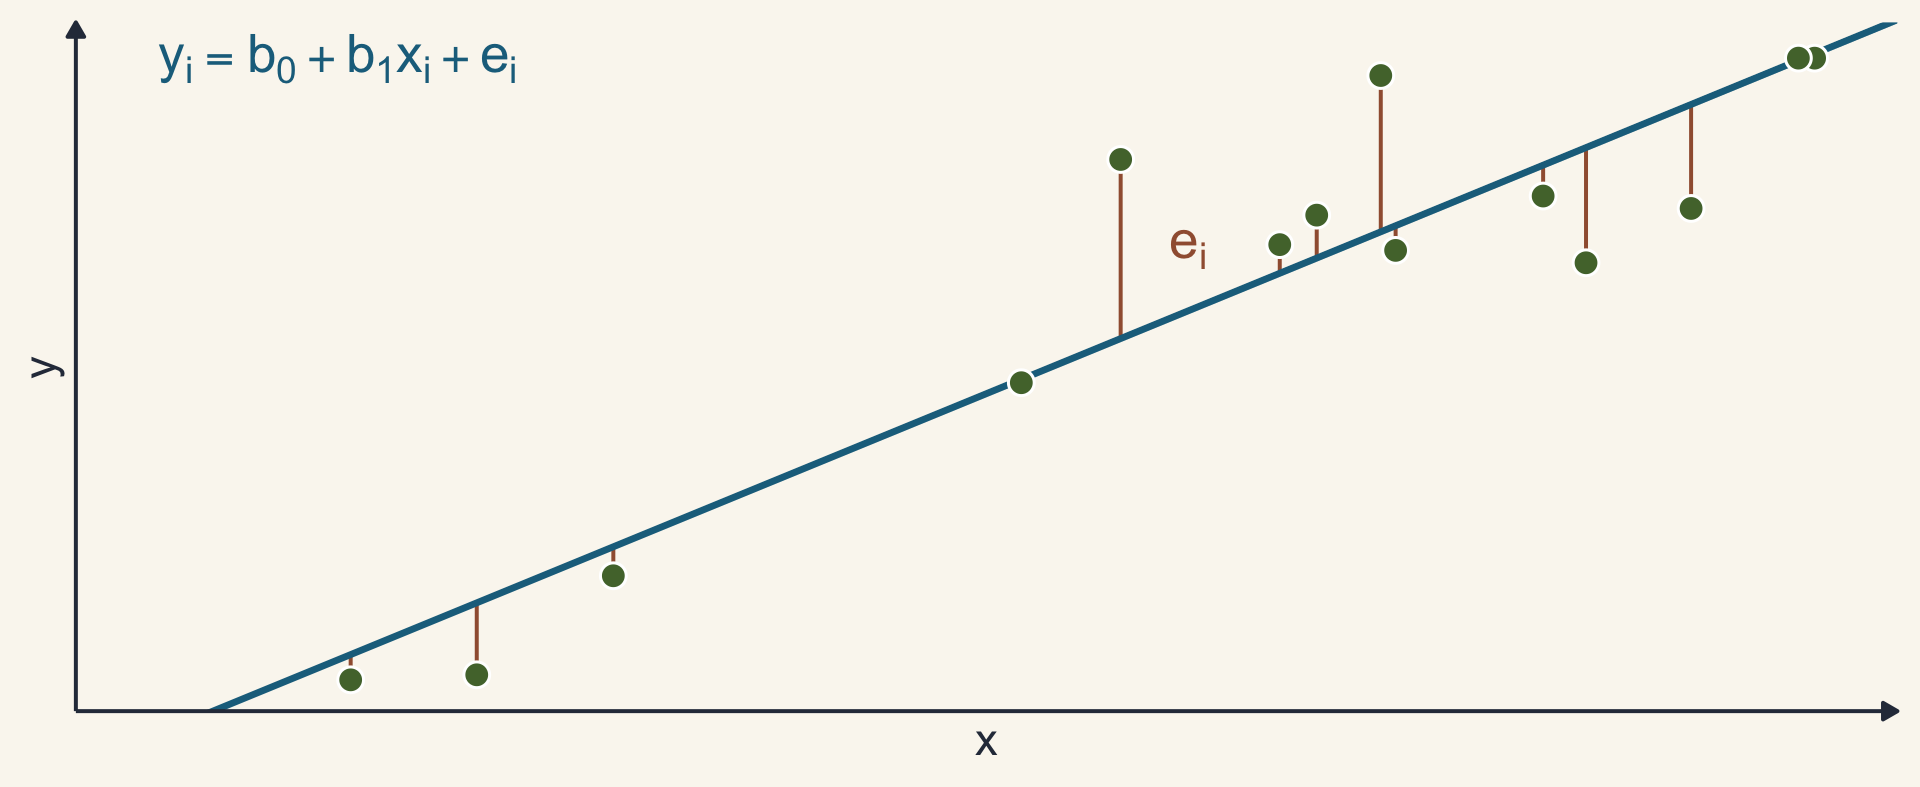
Dispersão de 14 pontos com a reta de regressão; os resíduos aparecem como segmentos verticais entre cada ponto e a reta, e a equação y igual a b0 mais b1 x mais e está escrita no canto.

Os mínimos quadrados ordinários (ordinary least squares, OLS) escolhem a reta que minimiza a soma dos resíduos ao quadrado.

Pressupostos do OLS (Gauss-Markov)

Matemática Tradução para língua humana
\(y = X\beta + \varepsilon\) Relação linear entre \(y\) e \(X\)
\(X\) é uma matriz \(n \times k\) de posto cheio As colunas de \(X\) são independentes
\(E(\varepsilon\varepsilon' \mid X) = \sigma^2 I\) Homocedasticidade e ausência de autocorrelação
\(\varepsilon \mid X \sim N(0, \sigma^2 I)\) Resíduos normais, com média zero e variância homogênea

A linha que ninguém desenha

Independência e homocedasticidade são duas afirmações sobre a mesma matriz:

\[ \operatorname{var}[\varepsilon_i \mid X] = \sigma^2 \qquad \operatorname{cov}[\varepsilon_i, \varepsilon_j \mid X] = 0 \;\; (i \neq j) \]

\[ E(\varepsilon\varepsilon' \mid X) = \begin{bmatrix} \sigma^2 & 0 & \cdots & 0 \\ 0 & \sigma^2 & \cdots & 0 \\ \vdots & \vdots & \ddots & \vdots \\ 0 & 0 & \cdots & \sigma^2 \end{bmatrix} = \sigma^2 I \]

Reaproveitado do curso de Análise de Dados Univariados. Ver Zuur et al. (2009).

Toda violação é um buraco nessa matriz

\[ \underbrace{\sigma^2\begin{bmatrix}1&0&0&0\\0&1&0&0\\0&0&1&0\\0&0&0&1\end{bmatrix}}_{\text{OLS}} \qquad \underbrace{\begin{bmatrix}\sigma_1^2&0&0&0\\0&\sigma_2^2&0&0\\0&0&\sigma_3^2&0\\0&0&0&\sigma_4^2\end{bmatrix}}_{\text{variância desigual}} \qquad \underbrace{\sigma^2\begin{bmatrix}1{,}44&1{,}26&0{,}20&0{,}20\\1{,}26&1{,}44&0{,}20&0{,}20\\0{,}20&0{,}20&1{,}44&1{,}42\\0{,}20&0{,}20&1{,}42&1{,}44\end{bmatrix}}_{\text{filogenia: } \sigma^2\mathbf{C}} \]

A filogenia preenche o que está fora da diagonal, com a matriz C da Aula 2 (aqui, as espécies 1 a 4 da árvore-guia).

O estimador GLS


\[\Large \hat\beta_{\text{GLS}} = \big(X' \color{#1c6e8c}{\mathbf{C}^{-1}} X\big)^{-1} X' \color{#1c6e8c}{\mathbf{C}^{-1}} y\]


Com \(\color{#1c6e8c}{\mathbf{C}} = I\) (uma estrela), volta a ser o OLS: \(\hat\beta = (X'X)^{-1}X'y\).

PGLS é o GLS com a matriz C da filogenia (ou uma transformação dela por um modelo evolutivo).

Filogenia, espaço e tempo são o mesmo problema estatístico, dados correlacionados: Ives & Zhu (2006), Ecol. Appl. 16: 20–32.

GLS na árvore-guia

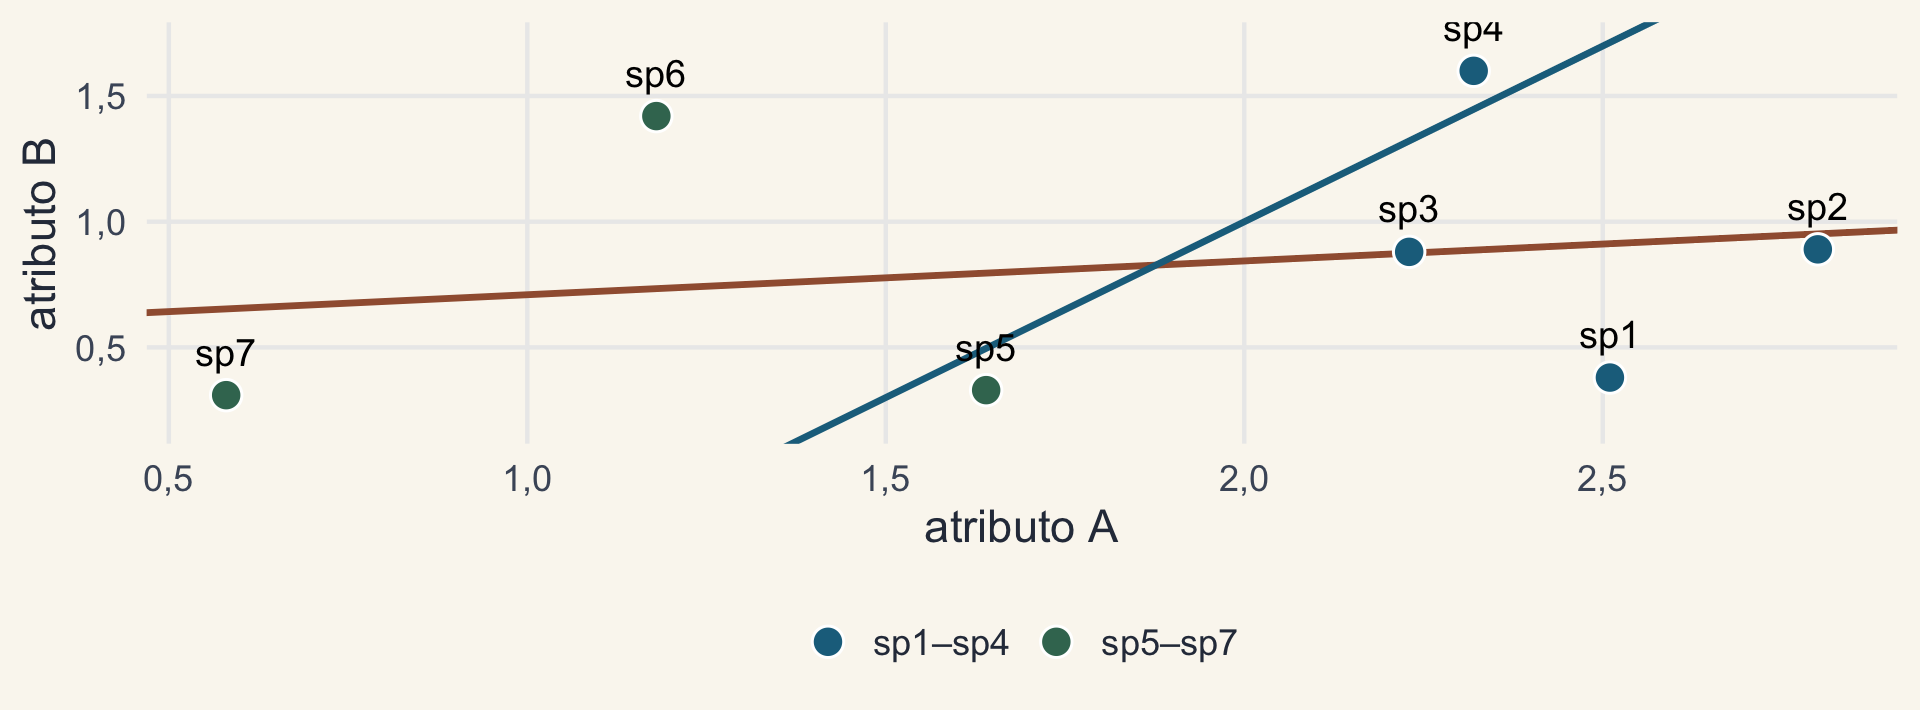
Atributo B contra A nas 7 espécies da árvore-guia, com duas retas: a do OLS, quase plana, inclinação 0,13; e a do GLS com C, íngreme, inclinação 1,40.

OLS (C = I): inclinação 0,135; GLS com C: 1,398, a mesma dos contrastes independentes da Aula 2. Sob BM, a equivalência é exata.

Blomberg, Lefevre, Wells & Waterhouse (2012), Syst. Biol. 61: 382–391.

Quando usar o PGLS

  • Normalmente, para testar a associação entre atributos
  • Muito flexível: preditores contínuos, discretos (binários ou com vários estados) e combinações
  • Resposta binária: regressão logística filogenética (phylolm::phyloglm)
  • Pode incorporar diferentes modelos evolutivos, manipulando a estrutura de C

Grafen (1989), Phil. Trans. R. Soc. B 326: 119–157.

2. PGLS na prática

Estão associados?

A estimativa depende do modelo em C

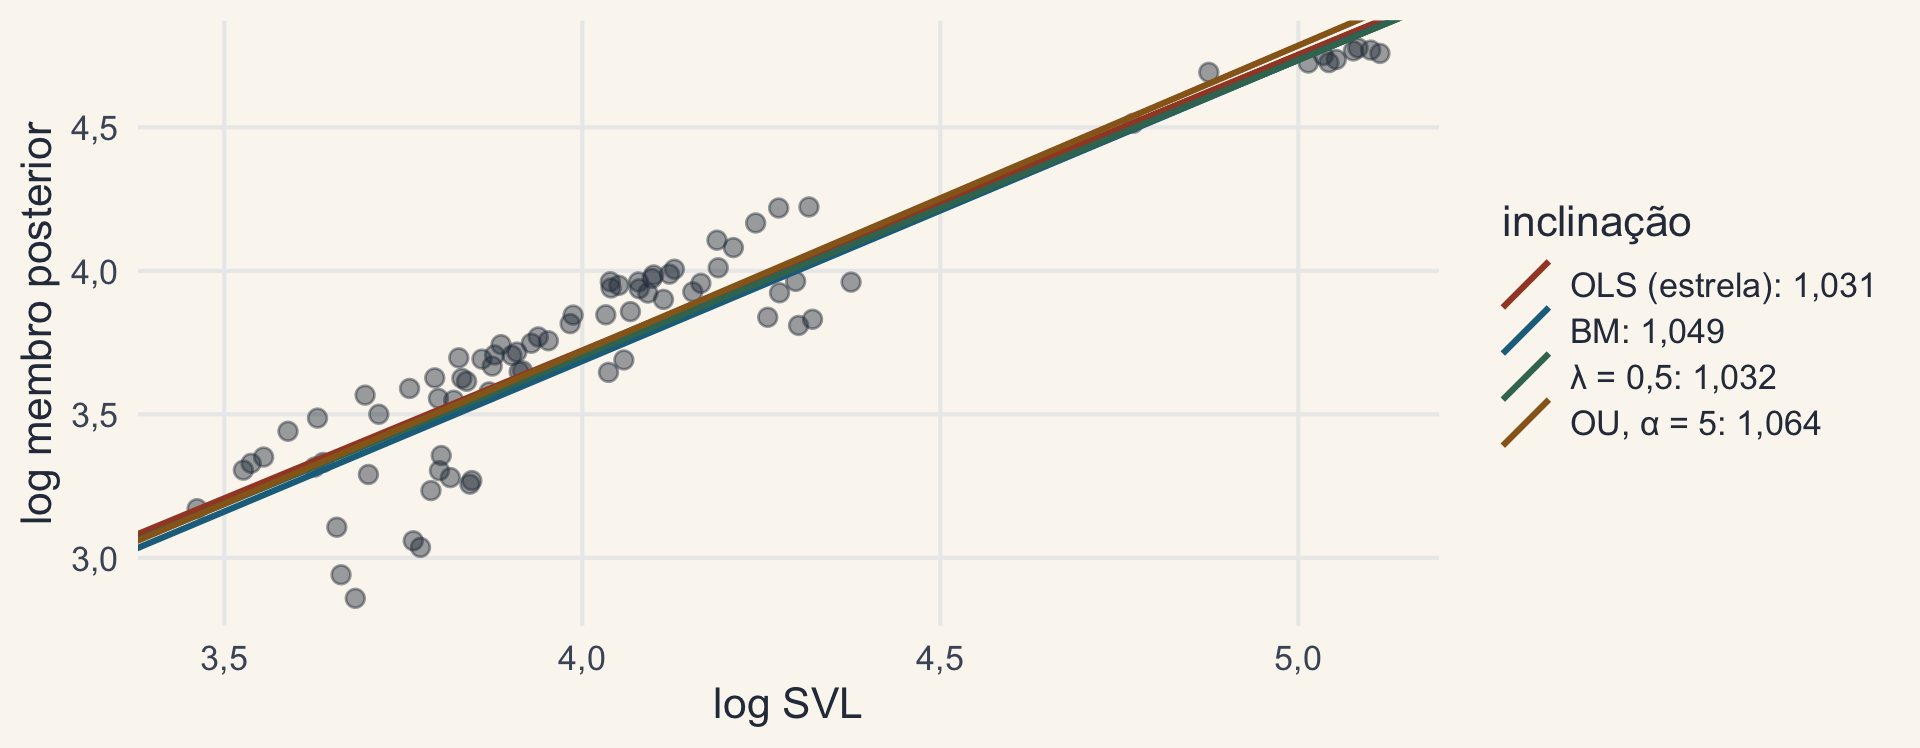
Membro posterior contra SVL dos Anolis, com quatro retas quase sobrepostas, uma para cada estrutura de covariância: OLS, BM, lambda igual a 0,5 e OU com alfa 5; as inclinações vão de 1,03 a 1,06.

Assume linearidade; a estimativa depende do modelo evolutivo (λ: Aula 3; OU: Aula 4). Nos Anolis, a inclinação muda pouco, mas em outros dados pode mudar muito.

Symonds & Blomberg (2014); ideia da figura: Mazel et al. (2016), Ecology 97: 286–293.

Erro comum num PGLS

Errado: testar o sinal filogenético na variável resposta ou na preditora para decidir se usa o PGLS.

Certo: o pressuposto é sobre os resíduos.

O melhor é ajustar um único modelo que estima, por máxima verossimilhança, o λ dos resíduos junto com os coeficientes da regressão.

Revell (2010), Methods Ecol. Evol. 1: 319–329.

Variáveis com sinal, resíduos sem sinal
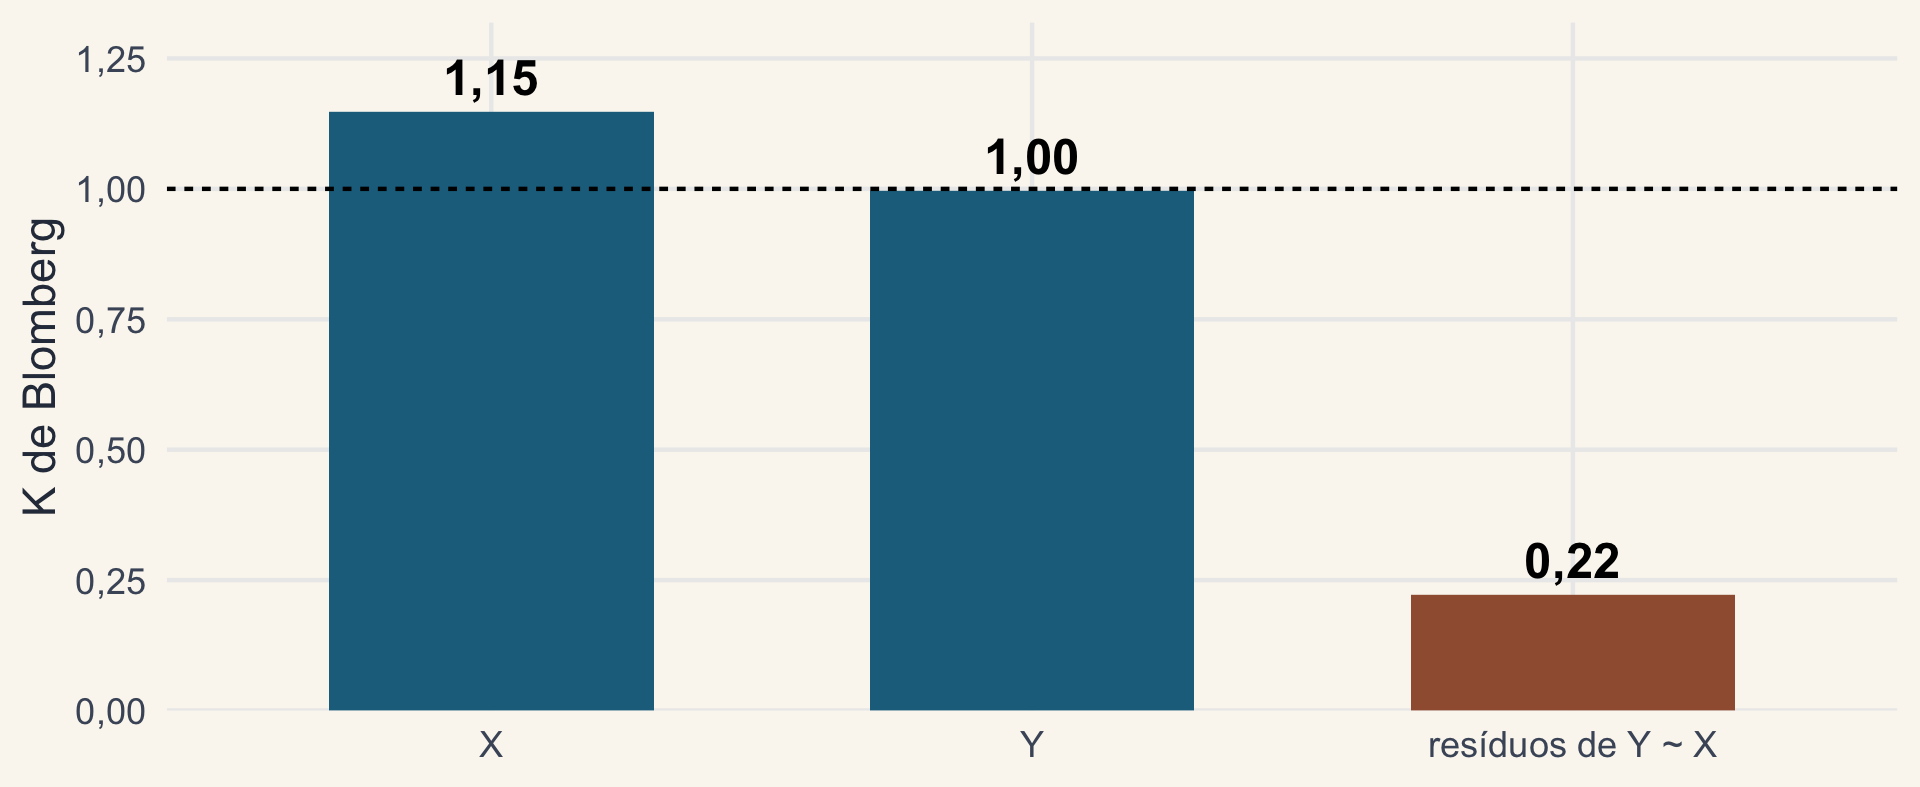
Barras do K de Blomberg: 1,15 para X, 1,00 para Y e 0,22 para os resíduos da regressão de Y em X.

X e Y simulados com sinal forte, mas Y = 1 + 1,2X + um erro sem estrutura filogenética: o λ dos resíduos é 0,00, e o OLS seria adequado.

Membros posteriores dos Anolis
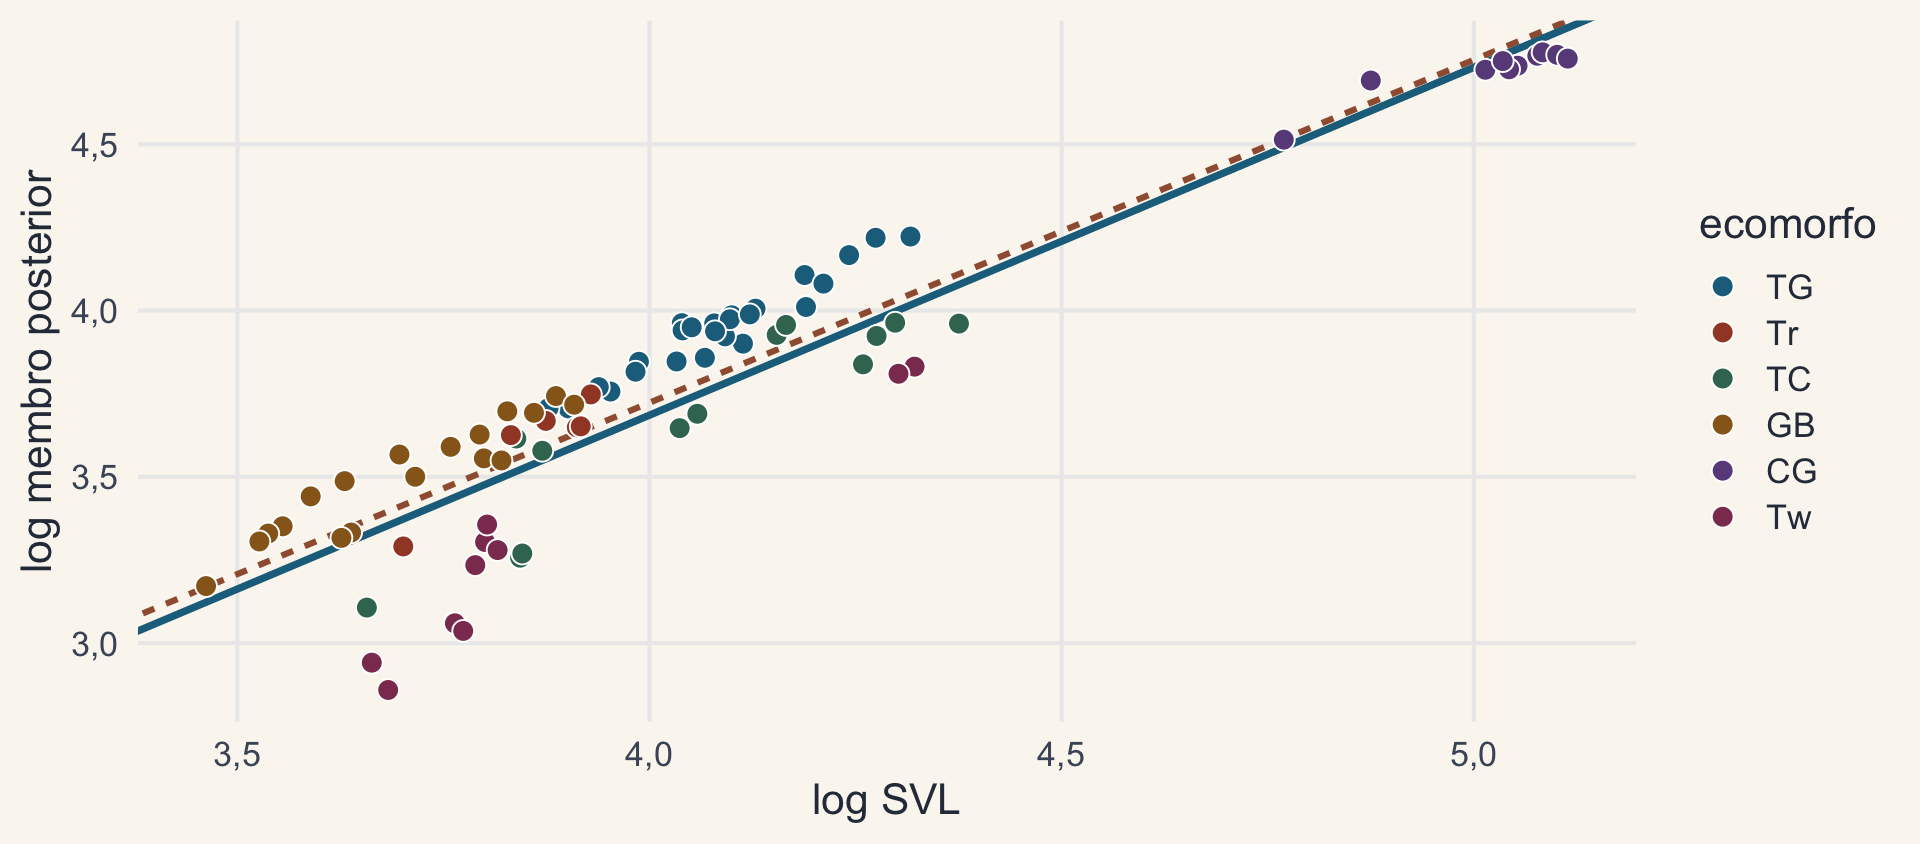
Log do membro posterior contra log do SVL de 82 espécies de Anolis, coloridas por ecomorfo; a reta do OLS (tracejada) e a do PGLS com lambda (contínua) quase coincidem.

O modelo em R

nlme::gls(hll ~ svl, data = dados, method = "ML",
          correlation = ape::corPagel(1, arvore, form = ~sp))
Estimativa EP p
Intercepto -0,499 0,194 = 0,012
log SVL 1,046 0,047 < 0,001

λ estimado: 1,013.

O corPagel pode dar λ um pouco acima de 1.

Quanto o modelo explica?

O R² do OLS não serve para modelos com resíduos correlacionados. O pacote rr2 calcula três R² para PGLS, phylolm e modelos mistos:

rr2::R2(pgls)
R² Ideia Anolis
R²lik verossimilhança contra o modelo só com intercepto 0,957
R²resid variância dos resíduos 0,961
R²pred variância das predições, com a parte filogenética 0,961

Ives (2019), Syst. Biol. 68: 234–251; Ives & Li (2018), J. Open Source Softw. 3: 1028. R² do OLS nos mesmos dados: 0,867.

3. Diagnóstico

Estão associados?

Diagnosticando um PGLS

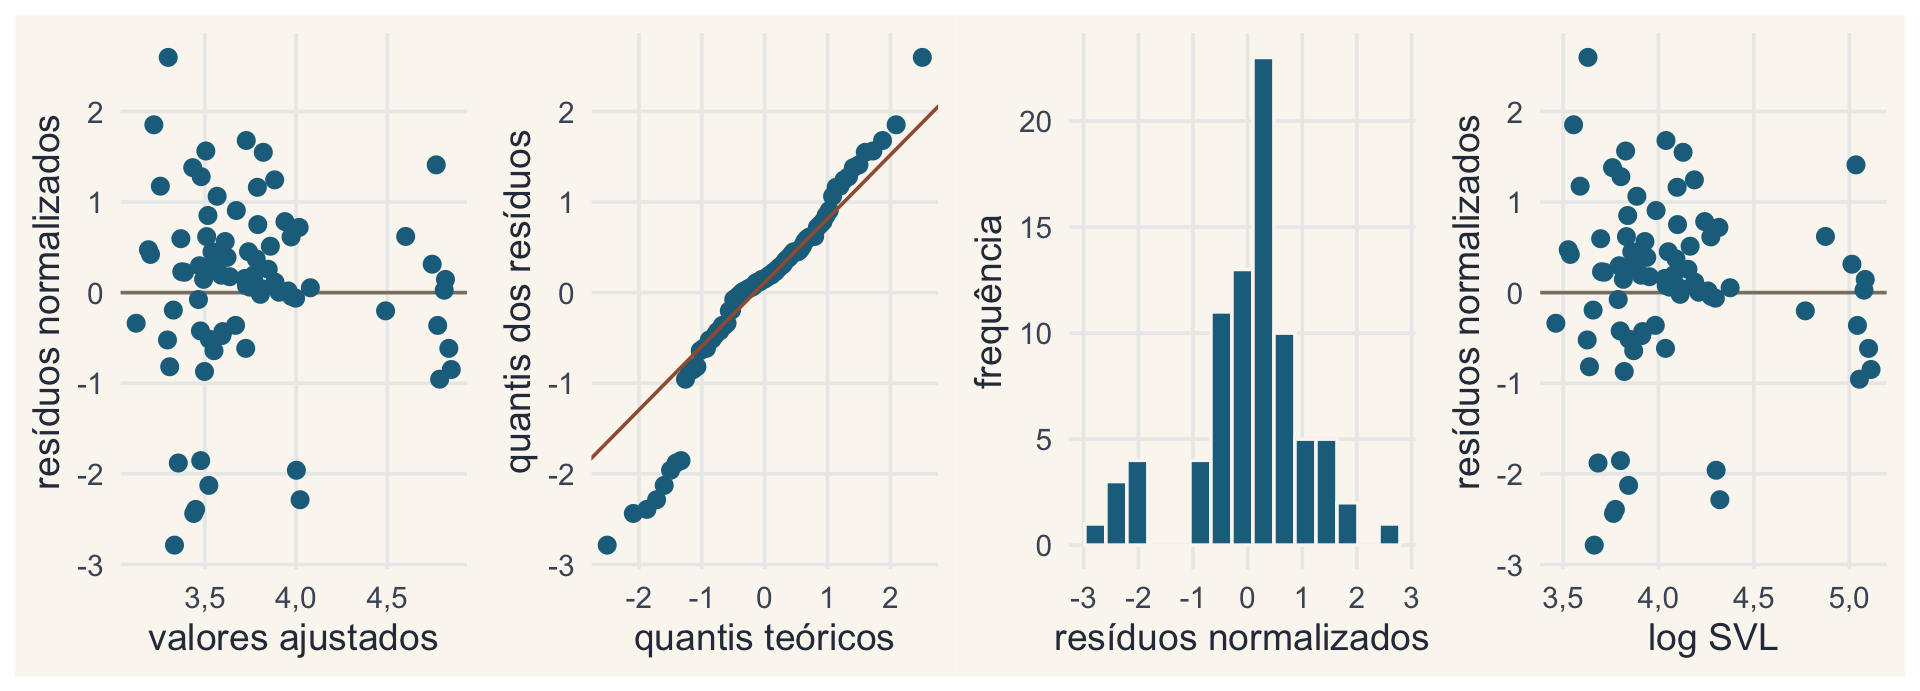
Quatro gráficos de diagnóstico do PGLS dos Anolis com resíduos normalizados: contra os valores ajustados, gráfico quantil-quantil, histograma e contra o SVL; um grupo de resíduos negativos aparece separado.

Use os resíduos normalizados (resid(modelo, type = "normalized")): os resíduos brutos de um GLS continuam correlacionados pela filogenia.

O grupo de resíduos negativos são os twig, de membros curtos: um preditor que falta no modelo (bloco 4).

Armadilhas comuns

  • Nomes: as pontas da árvore e as linhas da tabela precisam bater (geiger::name.check())
  • Ordem das linhas: no nlme::gls, diga qual coluna identifica a espécie (form = ~sp); sem isso, a correlação é aplicada na ordem das linhas
  • Árvore: ultramétrica e com comprimentos de ramo (Aula 1)

4. ANOVA e ANCOVA filogenéticas

Estão associados?

Um preditor categórico: o ecomorfo

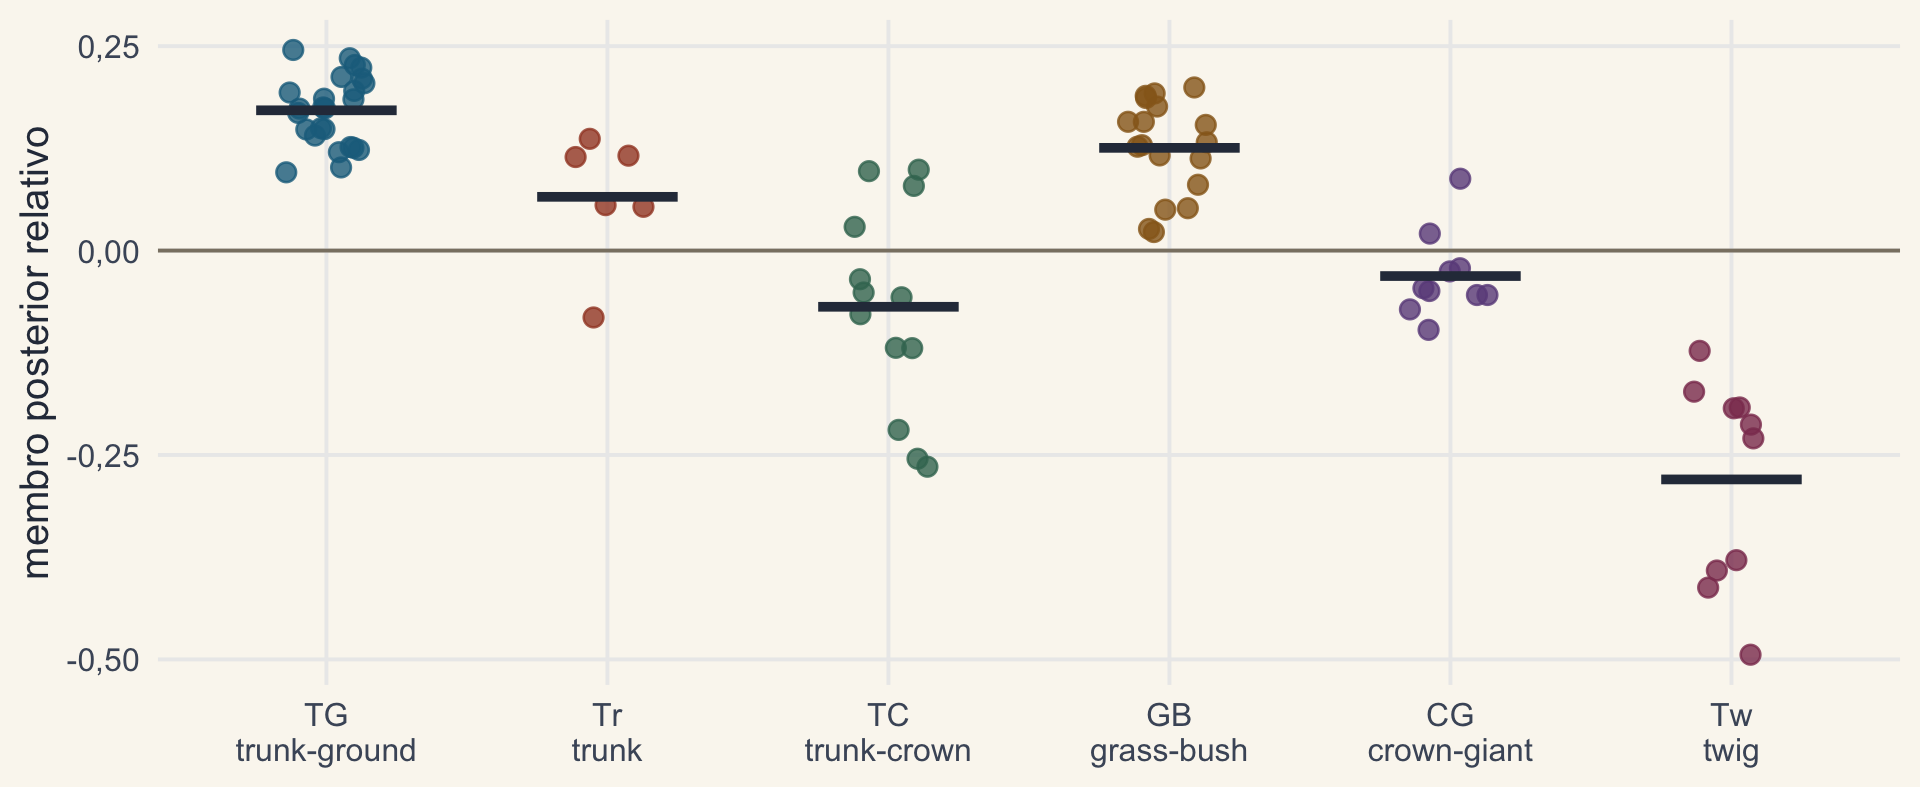
Membro posterior relativo (resíduo do PGLS) por ecomorfo: trunk-ground e grass-bush com membros longos, twig com membros curtos, os demais no meio; linhas pretas marcam as médias.

Membro posterior relativo: resíduo da regressão no SVL.

Ecomorfos dos Anolis: Losos (1990), Ecol. Monogr. 60: 369–388.

ANOVA filogenética
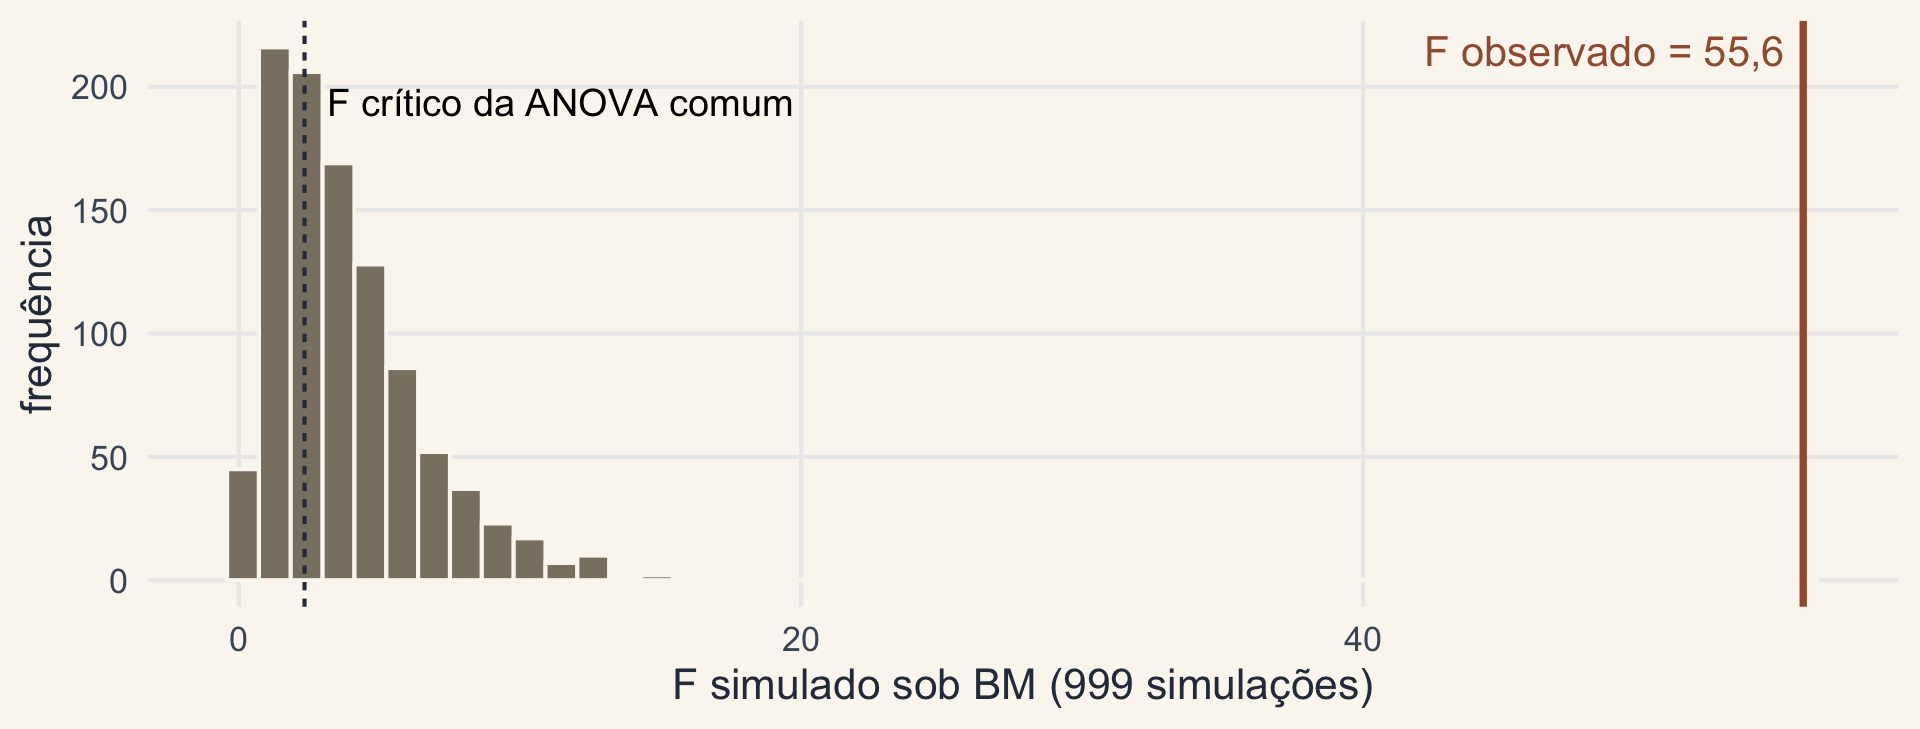
Histograma de valores de F simulados sob BM na árvore dos Anolis, quase todos abaixo de 10, com o F crítico da ANOVA comum perto de 2,3 e o F observado, 55,6, muito à direita.

O valor crítico de F vem de simulações sob BM na árvore, e não da tabela F: F = 55,6, p = 0,001.

Garland, Dickerman, Janis & Jones (1993), Syst. Biol. 42: 265. Em R: phytools::phylANOVA.

Cuidados com a ANOVA filogenética

  • Permutar os resíduos (RRPP) tem mais poder que simular dados sob BM na árvore, e serve para ANOVA e regressão, uni e multivariadas
  • Grupos agregados na árvore (cada grupo é um clado) se confundem com a filogenia: o poder cai, e poucas transições entre grupos lembram a pseudorreplicação da Aula 6
  • Em R: RRPP::lm.rrpp ou geomorph::procD.pgls

Adams & Collyer (2018), Evolution 72: 1204–1215.

ANCOVA filogenética

nlme::gls(hll ~ svl + eco, data = dados,
          correlation = ape::corBrownian(1, arvore, form = ~sp))
Termo gl F p
log SVL 1 1275,9 < 0,001
ecomorfo 5 25,4 < 0,001

Os grupos podem diferir também na taxa de evolução, e não só no intercepto e na inclinação: a ANCOVA filogenética de Fuentes-G. et al. (2016) estima as duas coisas.

5. Além do PGLS: GLM filogenético

Estão associados?

Respostas binárias e contagens

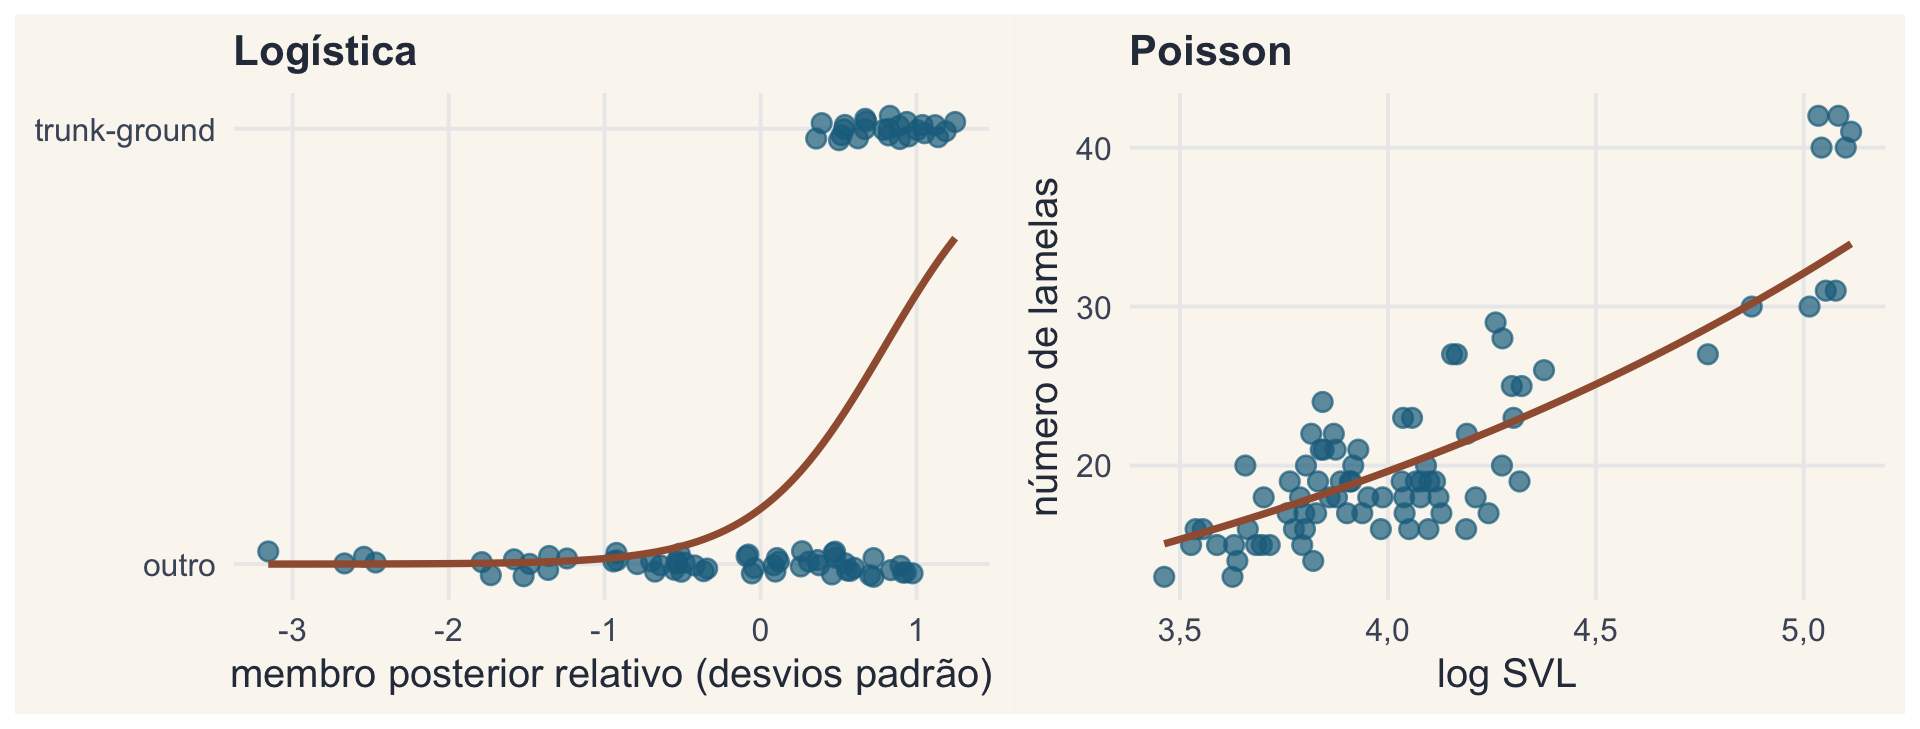
À esquerda, ser trunk-ground (0 ou 1) contra o membro posterior relativo, com a curva logística ajustada subindo. À direita, número de lamelas contra log SVL, com a curva de Poisson ajustada.

phylolm::phyloglm(tg ~ membro, data = dados, phy = arvore, method = "logistic_MPLE")
phylolm::phyloglm(lamelas ~ svl, data = dados, phy = arvore, method = "poisson_GEE")

Lendo os dois modelos

Modelo Coeficiente Estimativa p
Logística membro posterior (DP) 2,42 = 0,003
Poisson log SVL 0,49 < 0,001

DP: desvio padrão do membro posterior relativo. Trunk-ground têm membros posteriores relativamente longos; espécies maiores têm mais lamelas.

Lamelas: contagem reconstruída do log dos dados do phytools (round(exp(LAM)), de 13 a 42).

6. Quando a correlação muda na árvore

Estão associados?

Matrizes de covariância evolutiva por regime

E se a correlação entre dois atributos for diferente em partes da árvore (não estacionariedade)?

Revell & Collar (2009), Evolution 63: 1090–1100.

Versão bayesiana, com a incerteza das correlações: o pacote ratematrix.

Caetano & Harmon (2017), Methods Ecol. Evol. 8: 1920–1927.

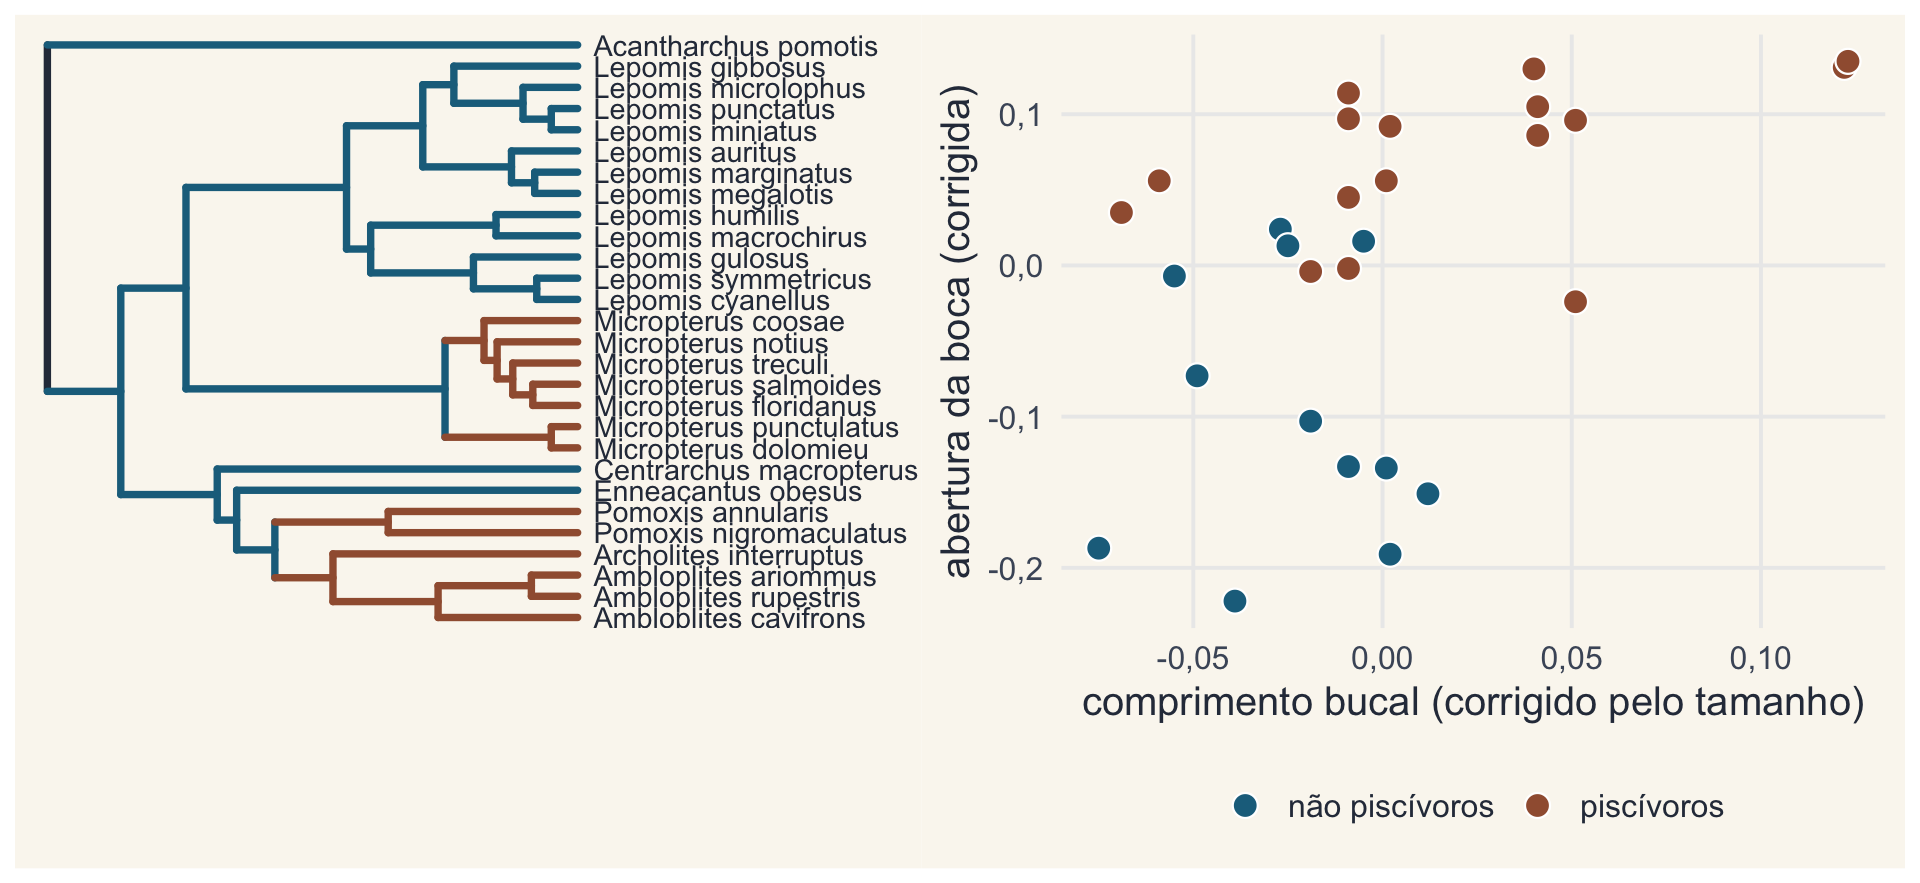
Os peixes Centrarchidae

À esquerda, a filogenia de 28 espécies de Centrarchidae com os ramos piscívoros em vermelho e os não piscívoros em azul. À direita, abertura da boca contra comprimento bucal, ambos corrigidos pelo tamanho, com os piscívoros em vermelho.

Os regimes (piscívoro ou não) são definidos a priori e mapeados nos ramos, como no BM com várias taxas (Aula 4).

Uma ou duas matrizes?

Modelo var(abertura) cov var(bucal) log L
Uma matriz 0,114 0,033 0,056 72,19
Não piscívoros 0,139 -0,002 0,012 81,24
Piscívoros 0,076 0,080 0,129

Razão de verossimilhança: p < 0,001. Nos piscívoros, os dois atributos evoluem juntos; nos outros, quase não covariam.

Calculado com phytools::evol.vcv nos dados sunfish do phytools. O log L de uma matriz bate com o do artigo (72,19); o de duas não (lá, 76,85), e as taxas estão em outra escala.

7. Incerteza filogenética

Estão associados?

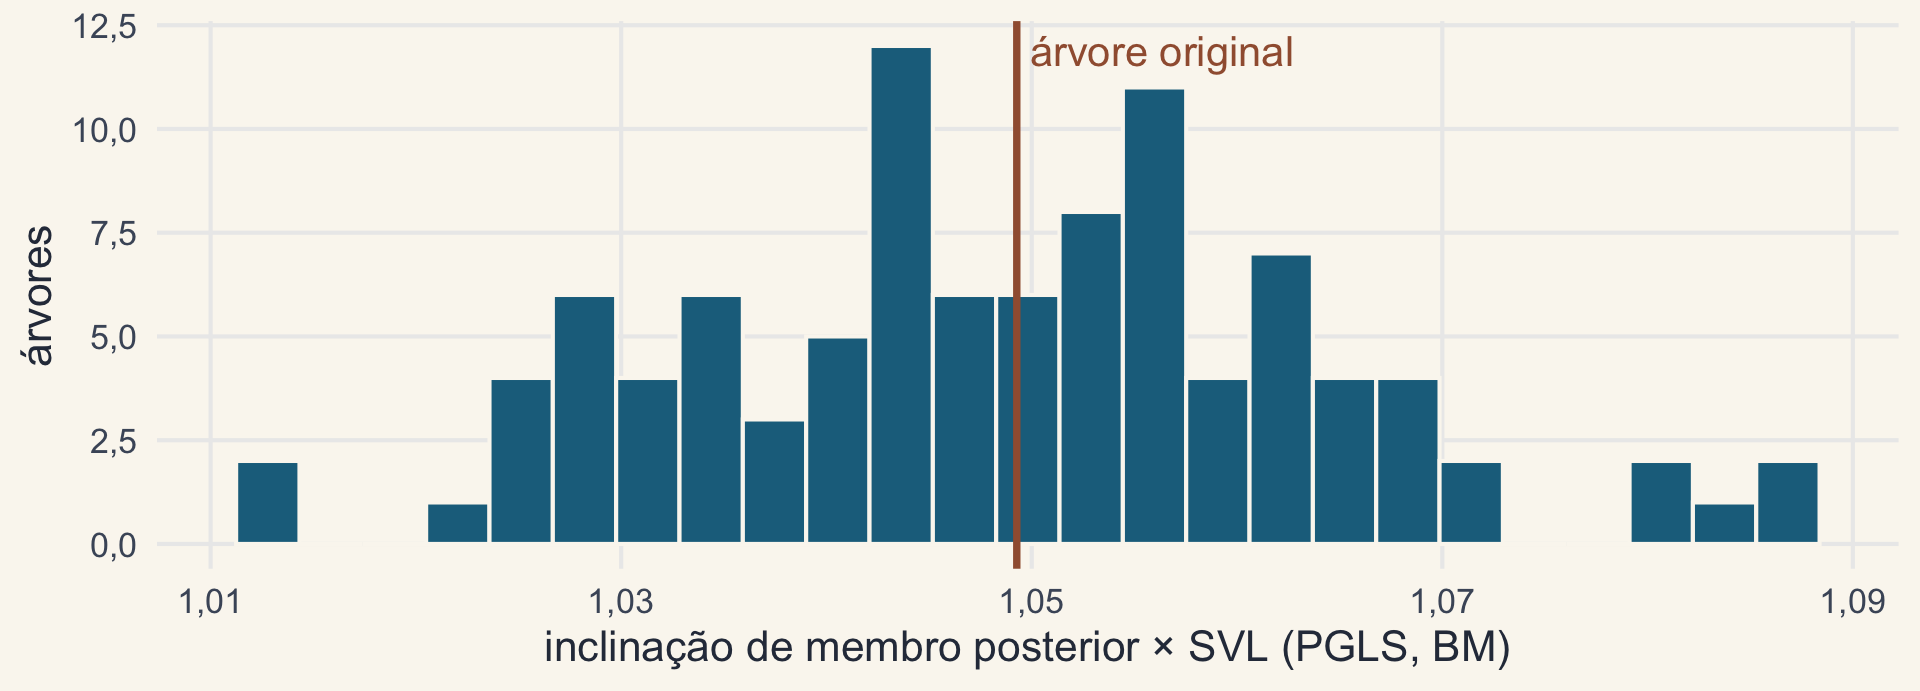
A árvore também é uma estimativa

Histograma das inclinações do PGLS de membro posterior contra SVL em 100 árvores com comprimentos de ramo perturbados, entre cerca de 1,01 e 1,09, com a linha da árvore original no meio.

Refaça a análise numa amostra de árvores (uma posterior bayesiana, por exemplo) e relate a variação. Aqui, 100 árvores com ramos perturbados: inclinação de 1,023 a 1,083.

Ilustração simulada. Rangel et al. (2015), Evolution 69: 1301–1312.

Para fechar

Onde estamos

O mapa dos métodos de novo, com a célula dos atributos contínuos associados destacada.

Leituras

Antes de usar qualquer método, leia o artigo que o propôs. Não fazer isso pode causar a rejeição do seu manuscrito.

Agora é com vocês

Pintura Bom tempo ou Idílio campestre, de Belmiro de Almeida: uma moça sorridente sentada num muro de pedra; atrás dela, um rapaz de chapéu se inclina para falar ao seu ouvido. Legenda: X e Y, um casal? Não: parentes.

X e Y, um casal? Não: parentes

Belmiro de Almeida, Bom tempo ou Idílio campestre (1893), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 5 e o desafio.