Modelos de evolução contínua

Aula 4 · Métodos Filogenéticos Comparativos · PPGBA/UFMS

Diogo B. Provete

Hoje

  1. Verossimilhança: estimando σ² e a raiz
  2. O modelo Ornstein-Uhlenbeck
  3. Early burst e tendência
  4. Comparando modelos
  5. Adequação do modelo
  6. Além dos quatro: BBM, FPK e evolução pulsada
  7. Paisagens adaptativas e radiação
  8. Várias taxas e vários regimes
  9. Cautelas com o OU

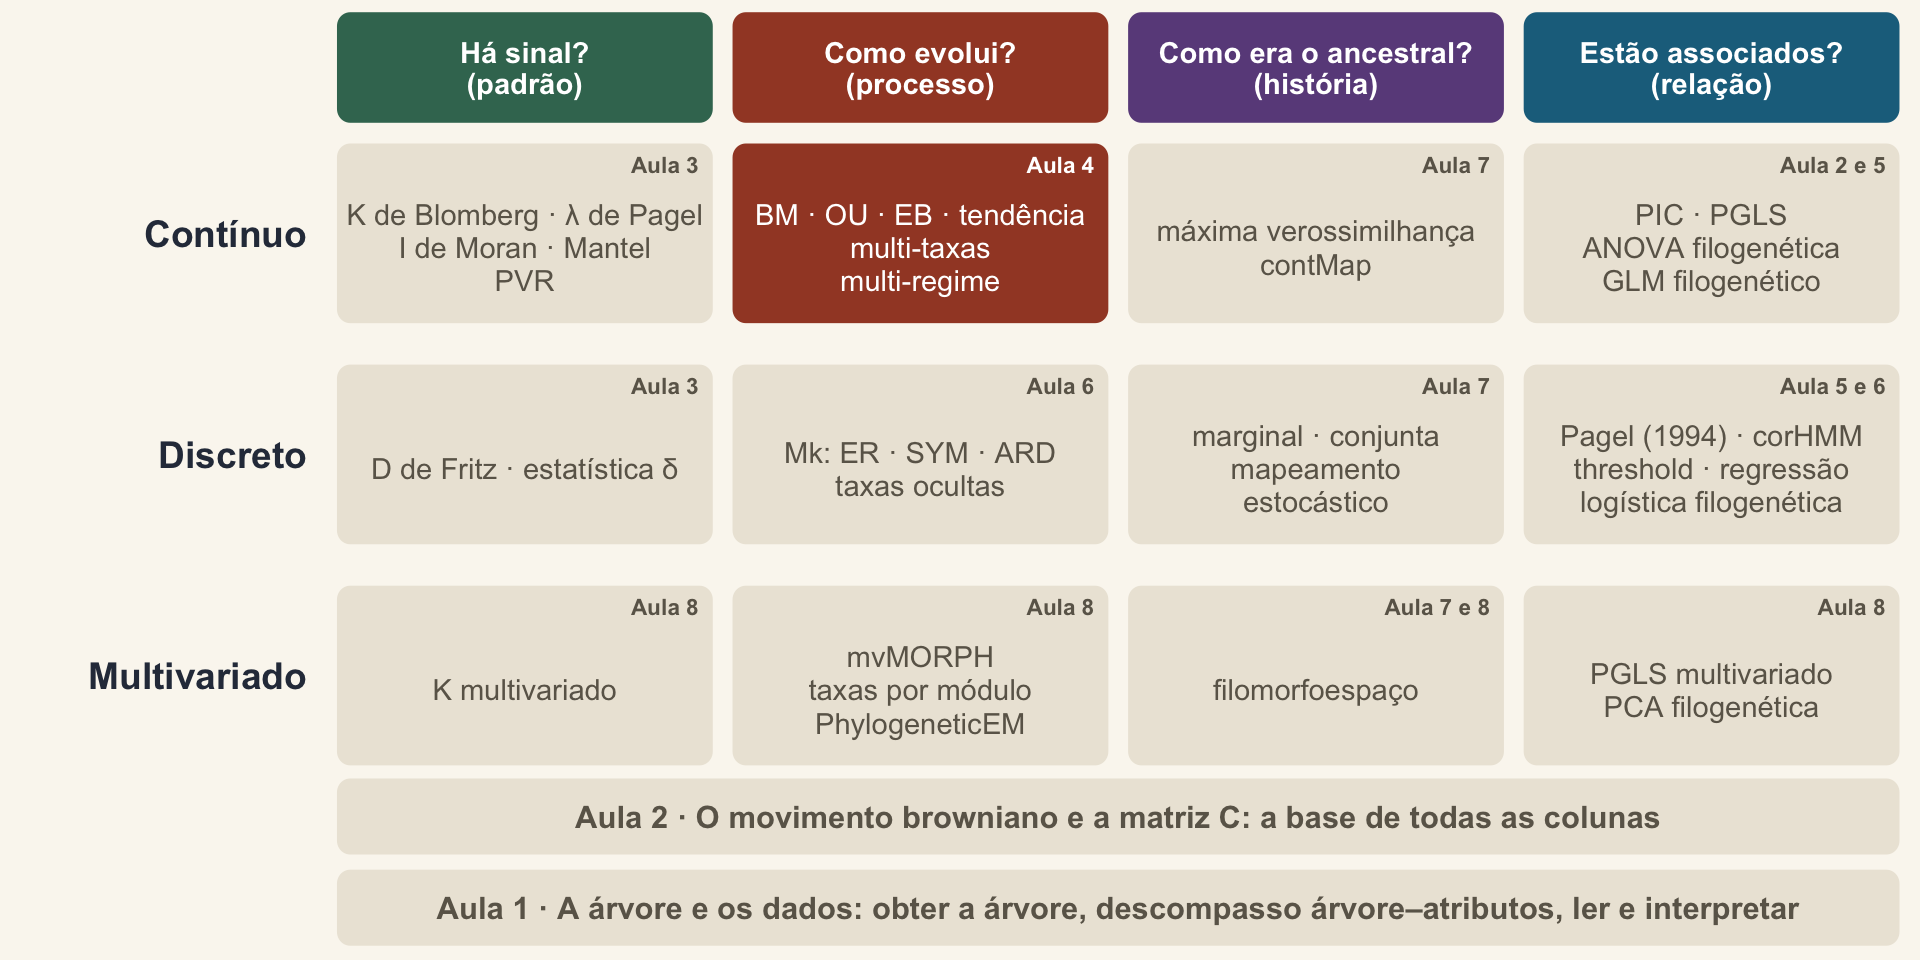
Onde estamos

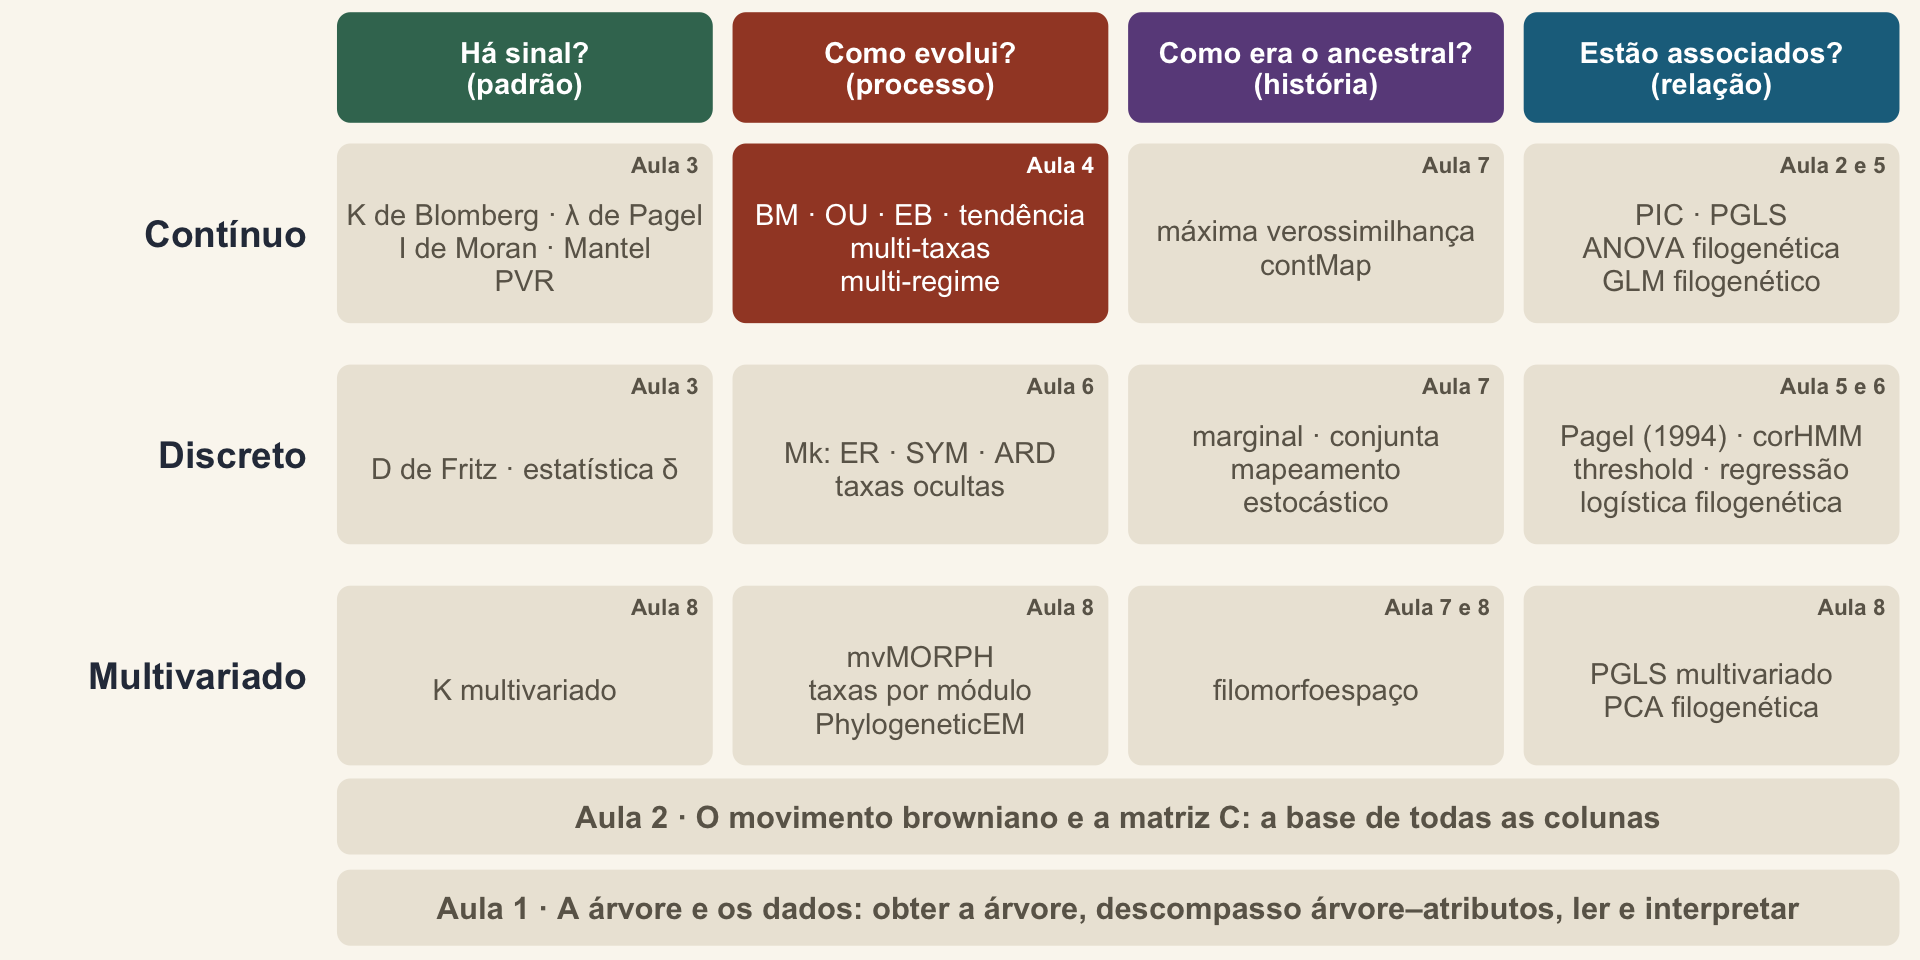
Mapa dos métodos com a célula dos modelos de evolução de atributos contínuos destacada.

1. Verossimilhança: estimando σ² e a raiz

Como evolui?

A verossimilhança do BM

Sob BM, os valores das pontas seguem uma normal multivariada com média na raiz e covariância σ²C (Aula 2):

\[\mathbf{X} \sim N\big(z_0 \mathbf{1},\ \sigma^2 \mathbf{C}\big)\]

\[\log L(z_0, \sigma^2) = -\tfrac{1}{2}\Big[n \log(2\pi) + n \log \sigma^2 + \log|\mathbf{C}| + \tfrac{(\mathbf{X} - z_0\mathbf{1})' \mathbf{C}^{-1} (\mathbf{X} - z_0\mathbf{1})}{\sigma^2}\Big]\]

Os valores de \(z_0\) e \(\sigma^2\) que maximizam log L são as estimativas de máxima verossimilhança.

Atributo A da árvore-guia

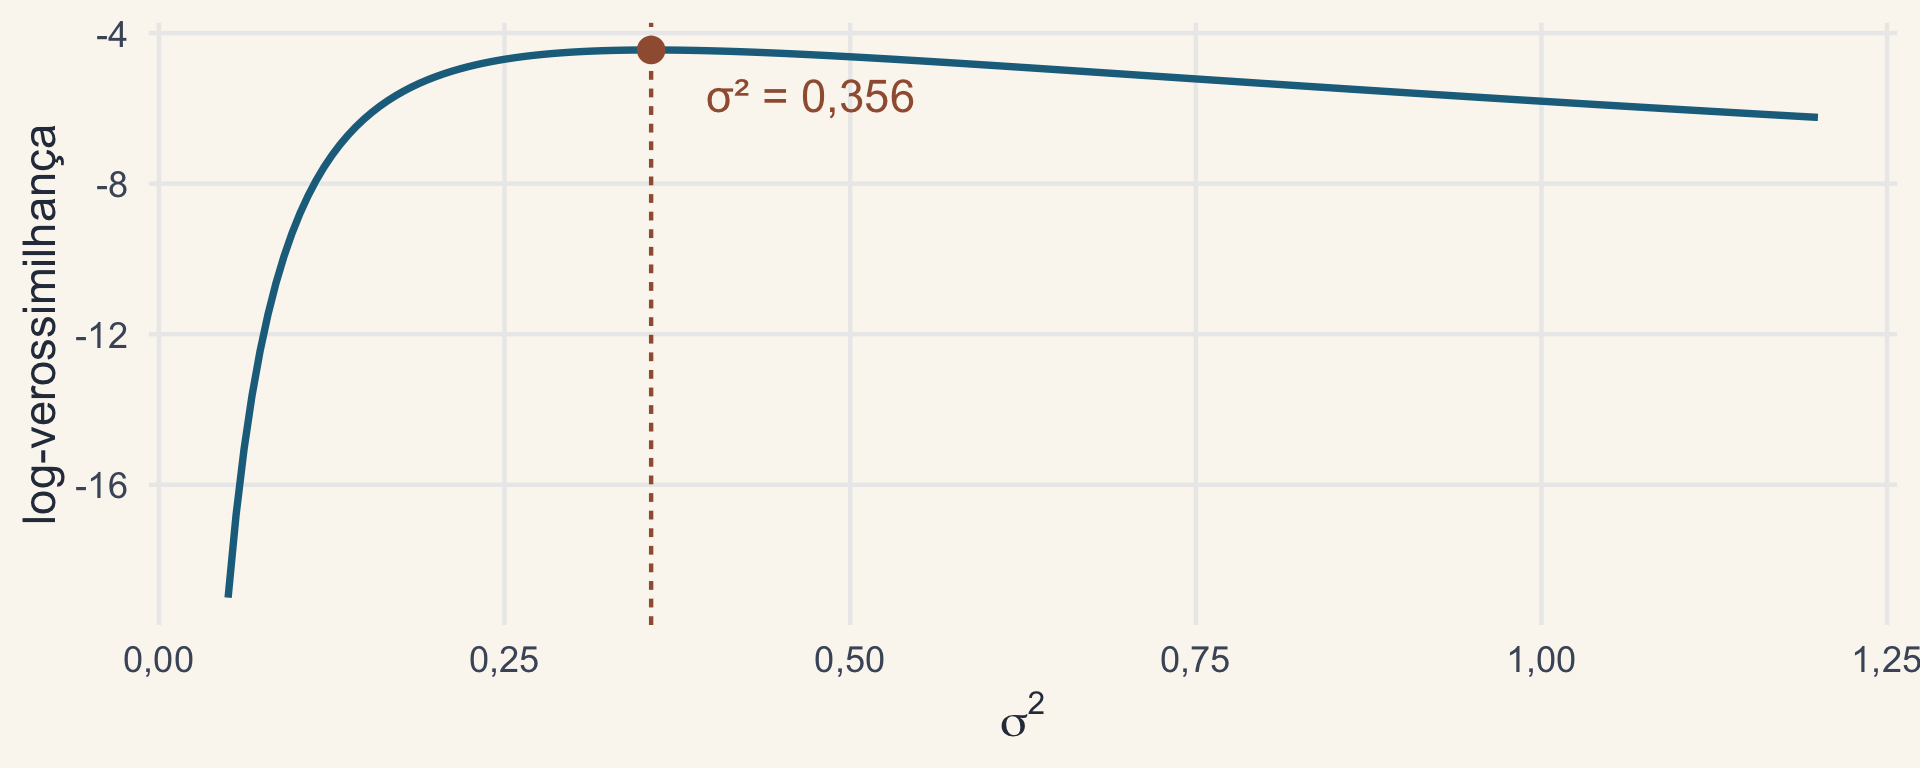
Log-verossimilhança do BM para o atributo A em função de sigma ao quadrado, com o máximo marcado em 0,356.

\(\hat\sigma^2 = 0{,}356\) e \(\hat z_0 = 1{,}83\): a raiz estimada é a mesma dos contrastes (Aula 2) e é o primeiro “estado ancestral” (Aula 7).

2. O modelo Ornstein-Uhlenbeck

Como evolui?

Ornstein-Uhlenbeck (OU)

  • Captura a ideia de evolução estabilizadora
  • O valor de um caráter contínuo tende a se mover para um valor ótimo
  • Um movimento browniano com um “puxão”
  • Parâmetros: valor inicial (\(z_0\)), taxa (\(\sigma^2\)), ótimo (\(\theta\)) e força de restrição (\(\alpha\))

Vantagens: tratável matematicamente; parâmetros com interpretação biológica; α limita o BM; θ pode representar regimes, ótimos ou zonas adaptativas.

O processo de Ornstein-Uhlenbeck

  • Modelo para a velocidade de uma partícula browniana sob atrito, proposto por dois físicos holandeses, Leonard Ornstein (1880–1941) e George Uhlenbeck (1900–1988)
  • Também chamado de movimento de “reversão à média”
  • A partícula pode ser atraída para uma média diferente da inicial
  • É como atributos que evoluem em direção a picos adaptativos, que podem limitar a diversificação

Uhlenbeck & Ornstein (1930), Phys. Rev. 36: 823–841.

A equação do OU


\[\Large dX = \color{#527238}{\alpha}\,\big[\color{#a15e3f}{\theta} - X\big]\,dt + \color{#1c6e8c}{\sigma\, dB}\]


\(\sigma\,dB\): o movimento browniano (Aula 2)

\(\alpha[\theta - X]\,dt\): a mudança em direção ao ótimo \(\theta\)

A equação do OU: o puxão

  • A força da seleção é proporcional à distância entre o valor do atributo e o ótimo: quanto maior a distância, maior o “puxão”
  • \(\alpha\) diz a força desse puxão

\[dX = \color{#527238}{0}\cdot[\theta - X]\,dt + \sigma\,dB = \sigma\,dB\]

Com \(\alpha = 0\), o OU vira um BM.

Simulando o OU: o ótimo θ

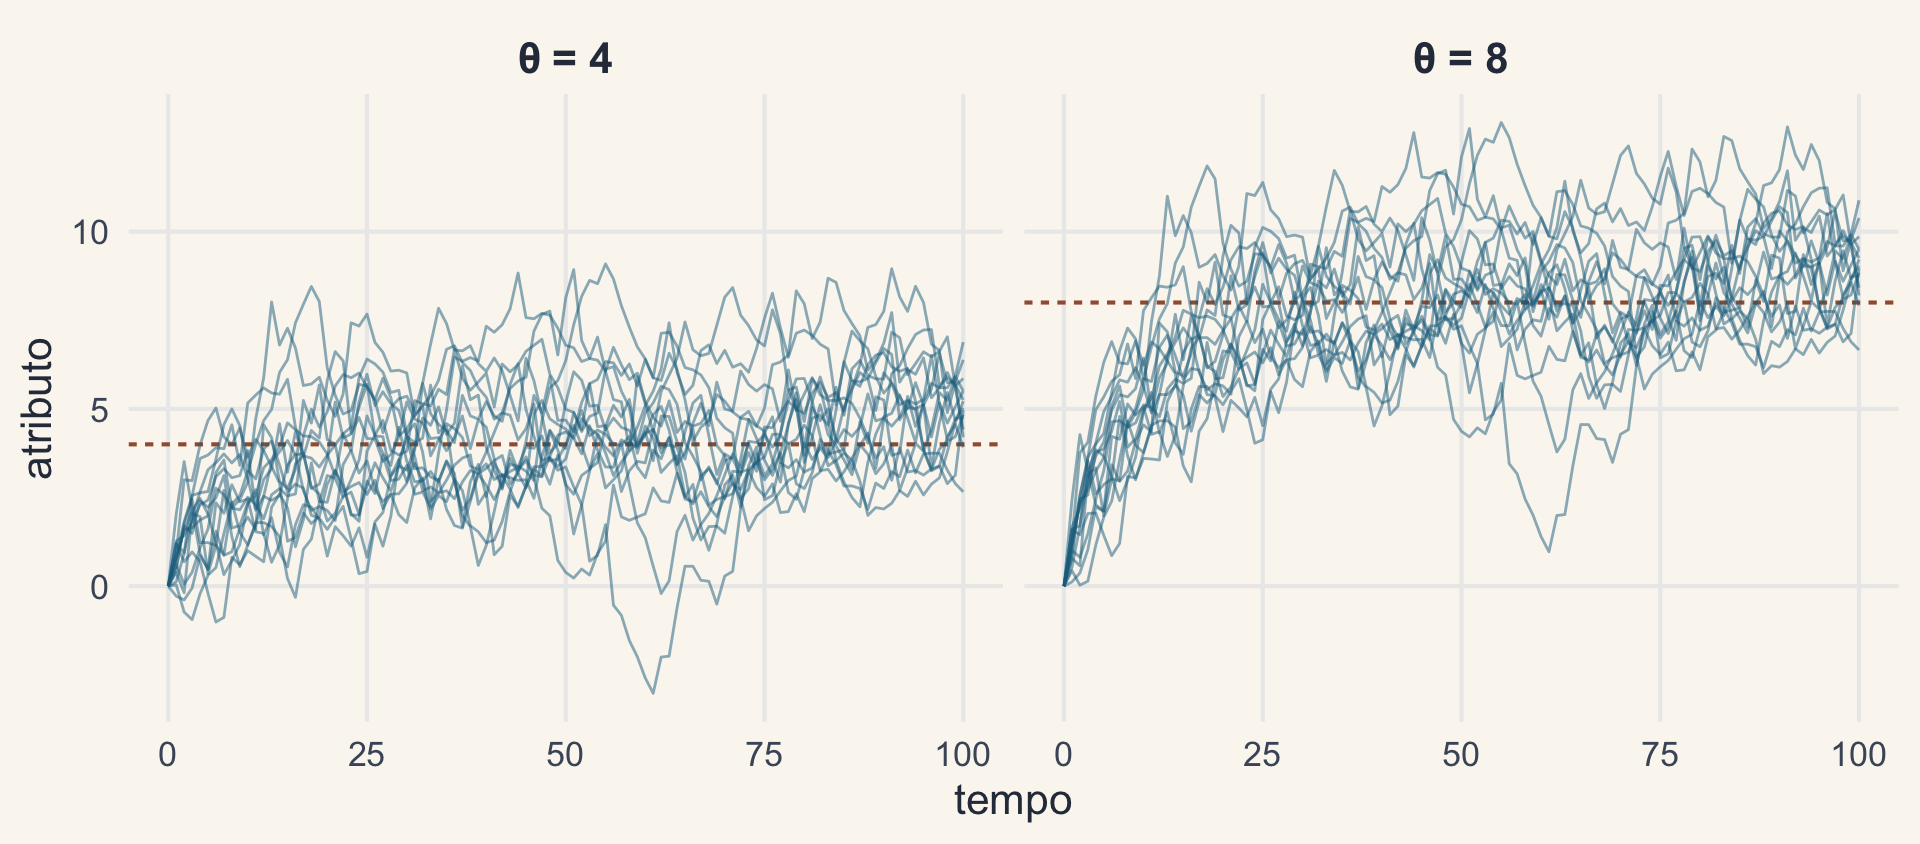
Quinze trajetórias de OU partindo de zero com theta igual a 4 e igual a 8: as trajetórias sobem e oscilam em torno do ótimo, marcado com uma linha tracejada.

Simulando o OU: a força α

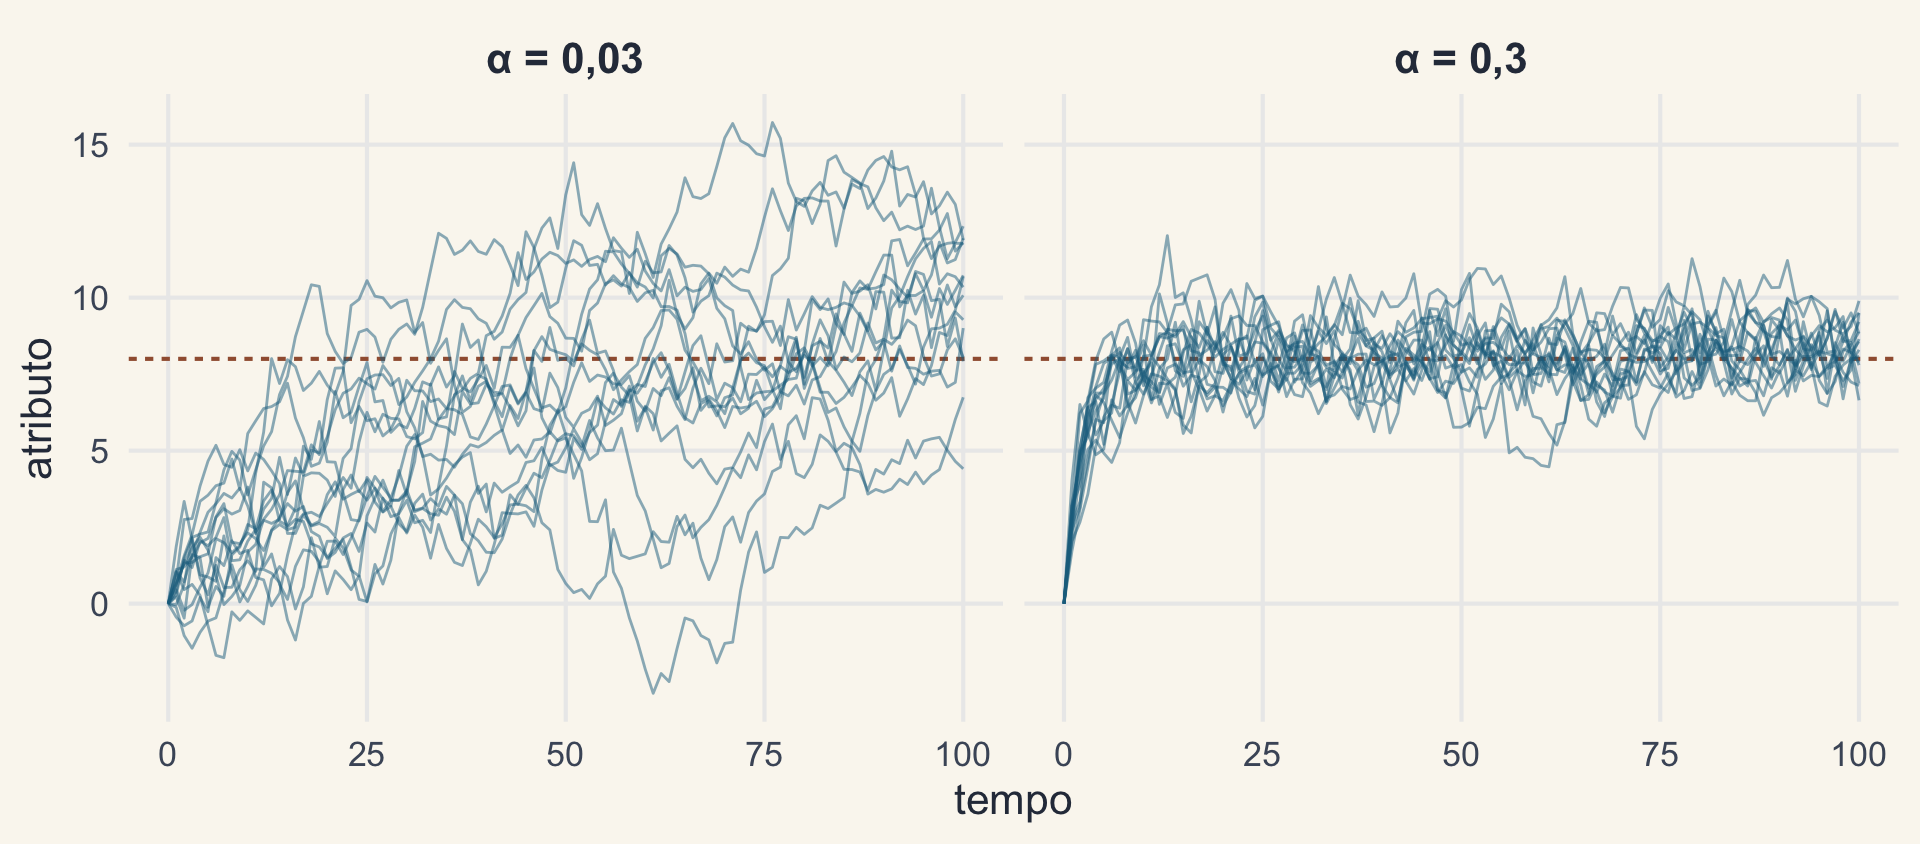
Com alfa igual a 0,03, as trajetórias chegam devagar ao ótimo e espalham muito; com alfa igual a 0,3, chegam rápido e ficam concentradas em torno dele.

α maior: o ótimo é alcançado mais rápido, e a variância é menor.

Simulando o OU: a taxa σ²
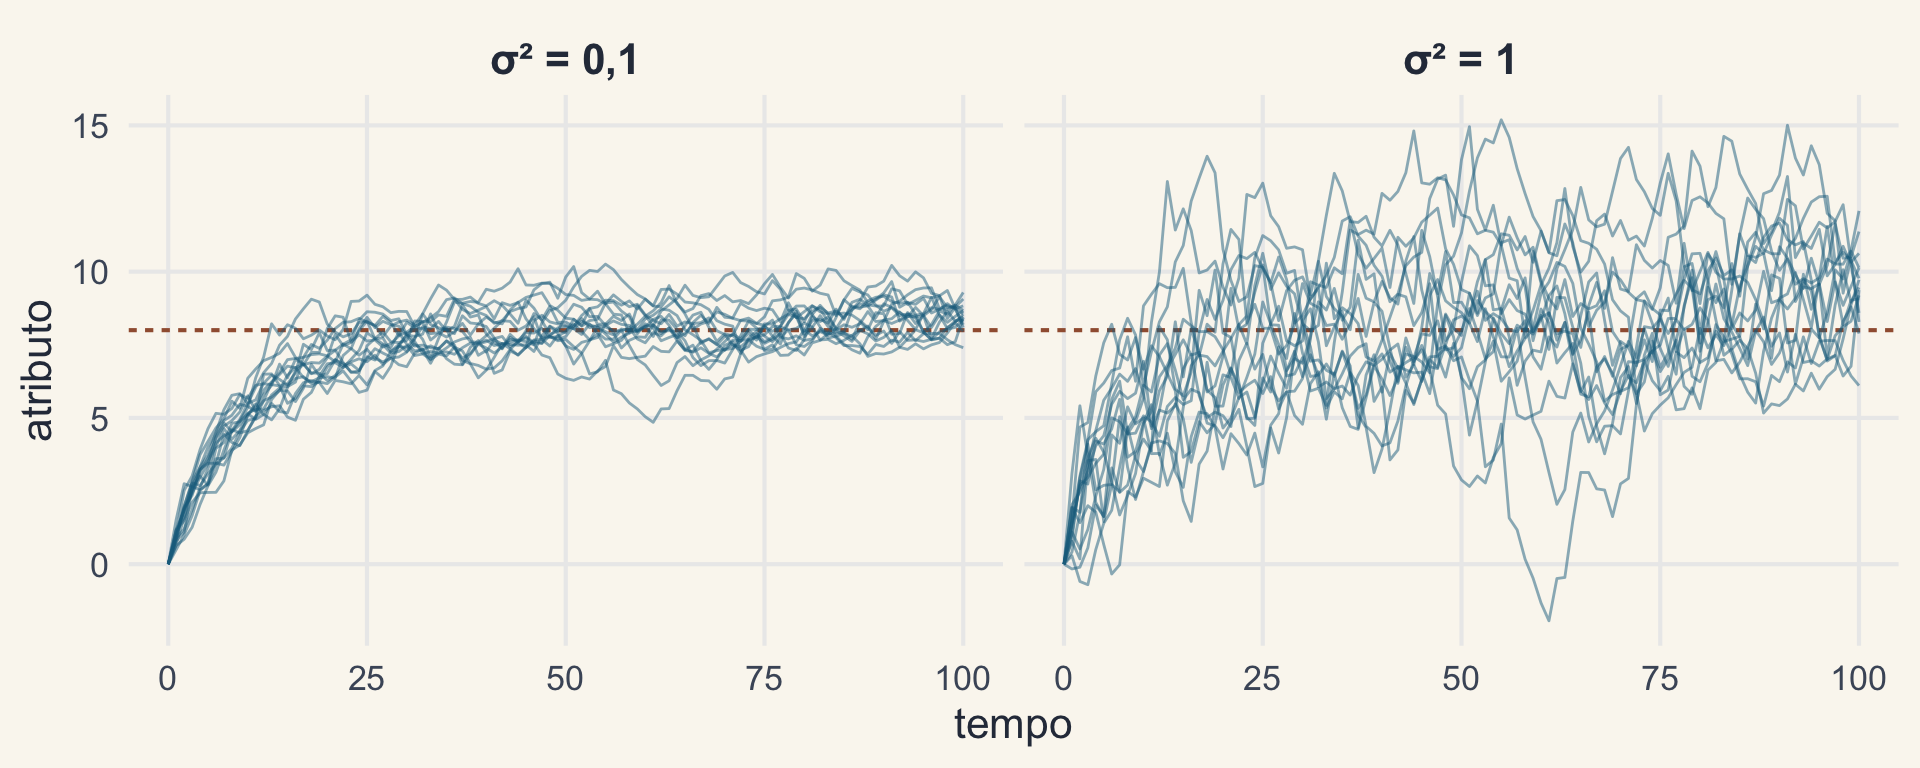
Com sigma ao quadrado igual a 0,1, as trajetórias ficam próximas do ótimo; com 1, oscilam muito mais em torno dele.

σ² maior: mais variância em torno do ótimo.

Simulações inspiradas em Butler & King (2004) e em Harmon (2019).

BM é diversificante; OU é de equilíbrio
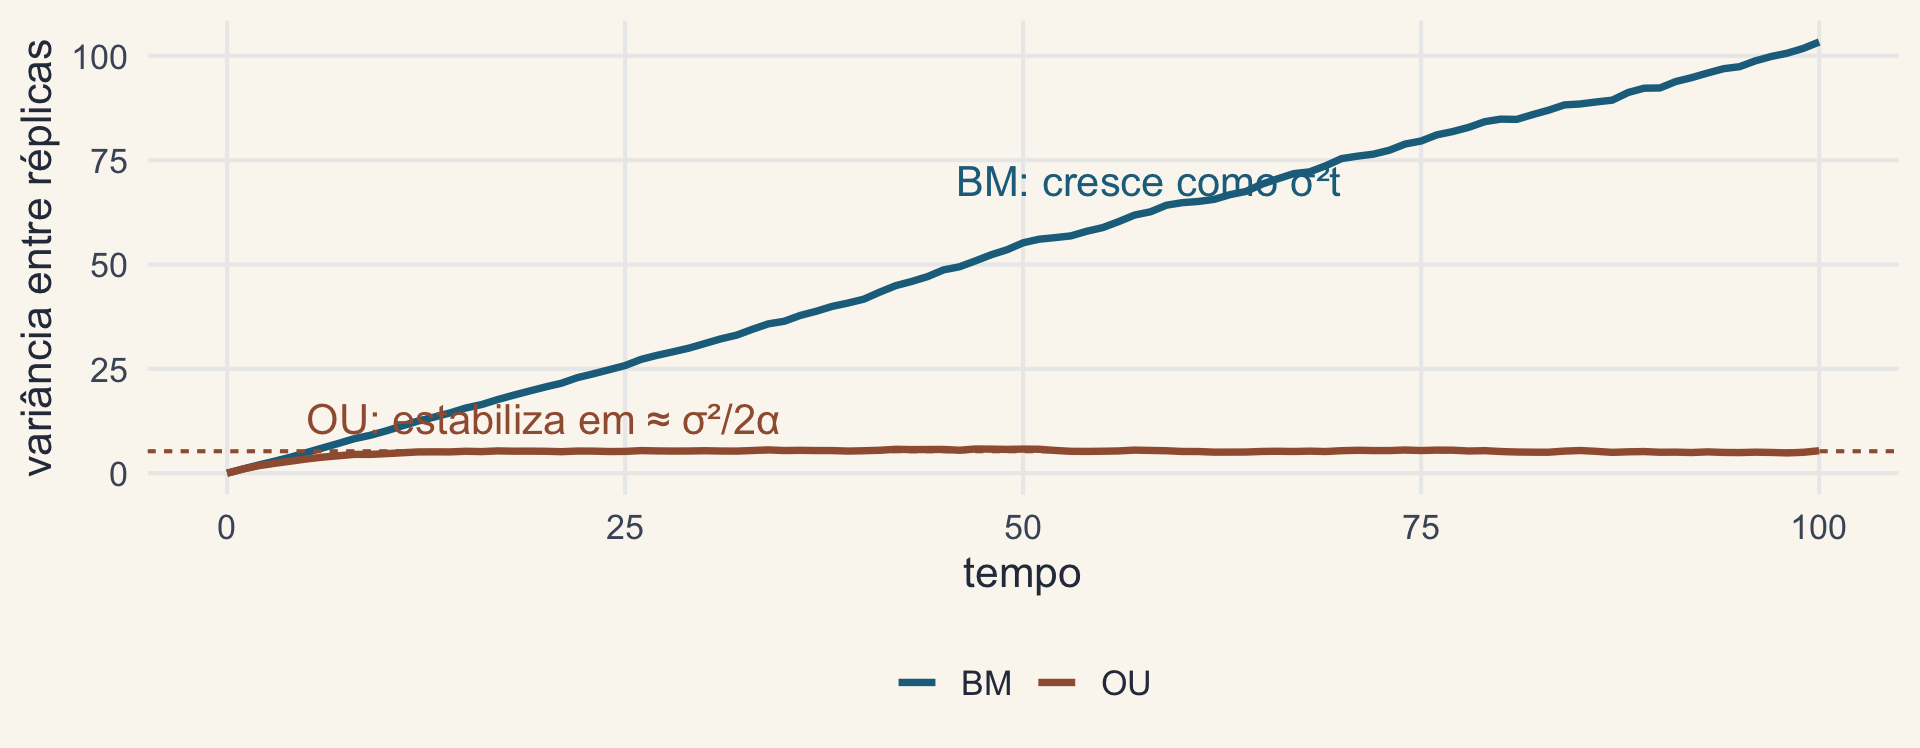
Variância entre 1500 réplicas ao longo do tempo: sob BM cresce em linha reta; sob OU estabiliza logo, perto de sigma ao quadrado sobre 2 alfa.

Sob BM, a variância cresce como \(\sigma^2 t\); sob OU, estabiliza em \(\sigma^2/2\alpha\). Tempo para percorrer metade do caminho até o ótimo: a meia-vida filogenética, \(\ln 2/\alpha\).

O OU na biologia evolutiva

Ano Trabalho Contribuição
1976 Lande seleção natural e deriva na evolução fenotípica
1979 Lande genética quantitativa da evolução multivariada (alometria cérebro–corpo)
1988 Felsenstein o OU como “elástico” que puxa a população para o pico seletivo
1997 Hansen seleção estabilizadora e análise comparativa da adaptação
2004 Butler & King OU com vários regimes (ouch)

3. Early burst e tendência

Como evolui?

Early burst (EB)

  • A taxa de evolução desacelera com o tempo: é maior perto da raiz
  • Corresponde à ideia de radiação adaptativa: linhagens que entram em novas zonas adaptativas diversificam rápido, e a taxa cai à medida que os nichos são preenchidos
  • Parâmetros: valor inicial (\(z_0\)), taxa inicial (\(\sigma_0^2\)) e taxa de mudança (\(r\))

\[V(t) = \sigma_0^2\, \frac{e^{rt} - 1}{r}\]

O EB vem do modelo ACDC (accelerating–decelerating) de Blomberg, Garland & Ives (2003), Evolution 57: 717–745: é o caso em que a taxa desacelera. Nome early burst: Harmon et al. (2010). Zonas adaptativas: Simpson (1944), Tempo and mode in evolution.

Early burst e late burst

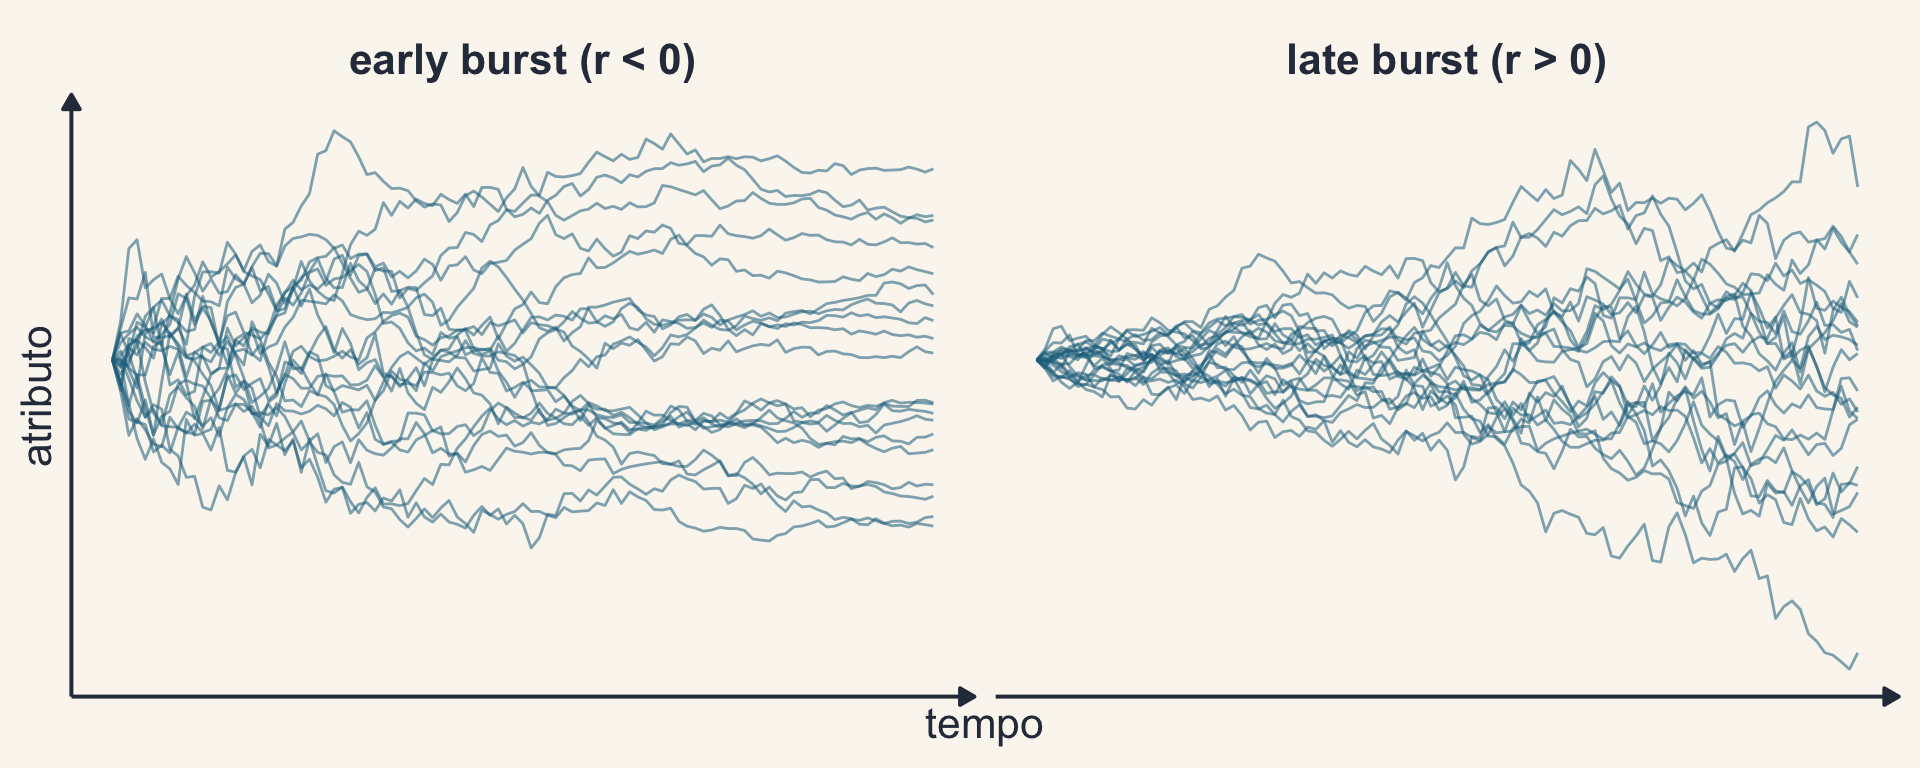
Vinte trajetórias sob early burst, que se espalham rápido no início e depois quase param, e sob late burst, que começam juntas e se espalham no fim.

Com \(r < 0\), desacelera (EB); com \(r > 0\), acelera.

O modelo ACDC de Blomberg, Garland & Ives (2003): desacelerado (DC) = EB; acelerado (AC) = late burst.

Onde está a variação?
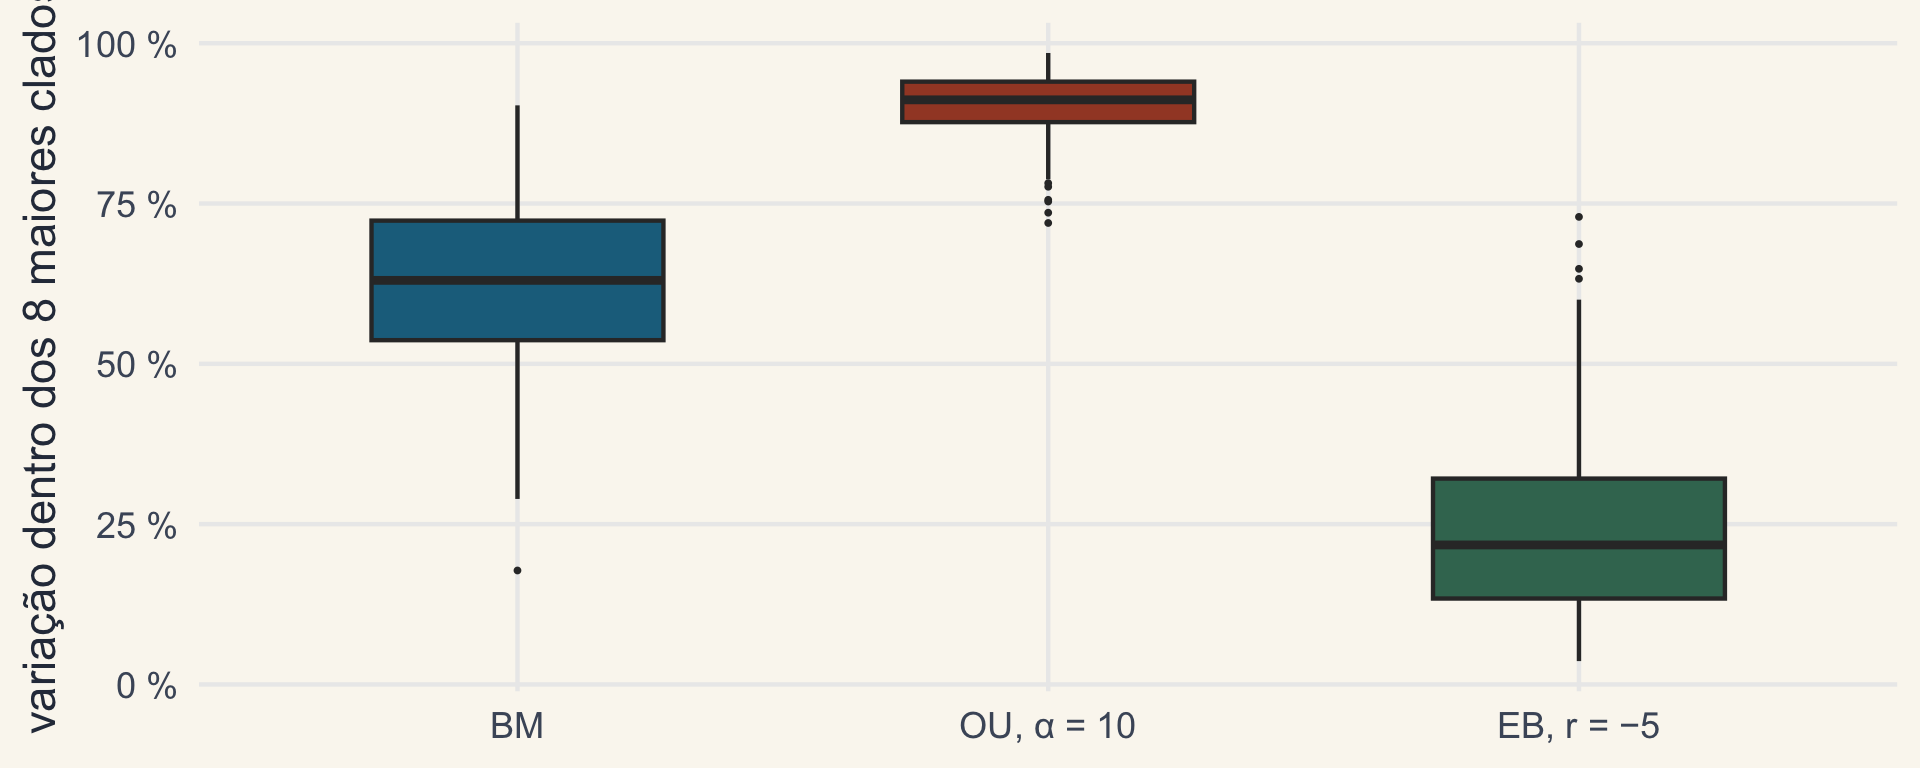
Proporção da variação do atributo que fica dentro dos 8 maiores clados dos Anolis, em 200 simulações: cerca de 60 por cento sob BM, perto de 90 por cento sob OU forte e cerca de 20 por cento sob early burst.

Sob EB, a variação se concentra entre os clados antigos; sob OU forte, dentro deles.

Ideia da figura de Harmon et al. (2010).

Movimento browniano com tendência

  • Incorpora a ideia de mudança direcional do fenótipo ao longo do tempo
  • Regra de Cope (ou de Depéret): o tamanho do corpo aumenta ao longo do tempo dentro das linhagens

\[dX = \mu\, dt + \sigma\, dB\]

Bokma, Godinot, Maridet et al. (2016), Syst. Biol. 65: 98–108; Lamsdell & Braddy (2010), Biol. Lett. 6: 265–269.

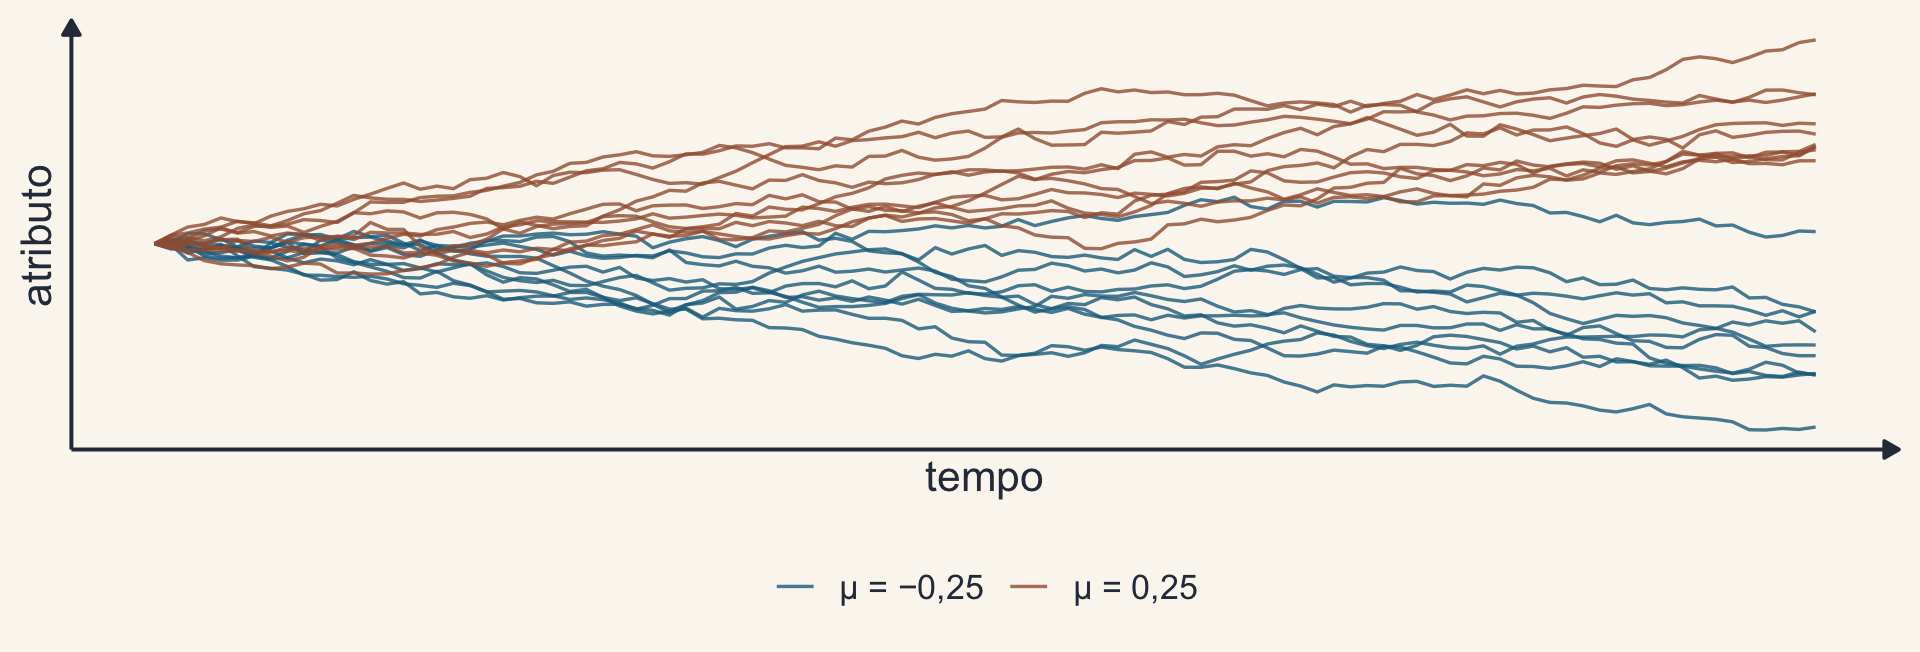
BM com tendência

Dez trajetórias com tendência positiva, que sobem, e dez com tendência negativa, que descem.

O mesmo σ² nos dois grupos; muda só o sinal de μ.

A equação, termo a termo

\[\Large dX = \color{#a15e3f}{\mu\, dt} + \color{#1c6e8c}{\sigma\, dB}\]

  • μ dt: o passo determinístico; a cada intervalo dt, o atributo anda μ dt na mesma direção (μ > 0 sobe, μ < 0 desce)
  • σ dB: o passo aleatório do BM, com variância σ² dt

Somando os passos de 0 a t:

\[E[X(t)] = z_0 + \mu t \qquad \text{Var}[X(t)] = \sigma^2 t\]

A tendência desloca a média; a variância cresce como no BM.

Com μ = 0, volta o BM: \(dX = \sigma\, dB\).

Por que é preciso fósseis

Numa árvore ultramétrica, todas as pontas estão à mesma distância T da raiz:

\[E[X_i] = z_0 + \mu T \quad \text{para toda espécie } i\]

Os dados só informam a soma \(z_0 + \mu T\): um ancestral pequeno com tendência positiva e um grande sem tendência preveem as mesmas pontas. μ e z0 não são identificáveis.

Com fósseis, as pontas ficam a distâncias \(t_i\) diferentes da raiz e \(E[X_i] = z_0 + \mu t_i\) muda de uma ponta para outra: μ passa a ser estimável.

Nos Caniformia, incluir os fósseis muda as estimativas do tamanho ancestral: Finarelli & Flynn (2006), Syst. Biol. 55: 301–313.

4. Comparando modelos

Como evolui?

Seleção de modelos e AIC

“All models are wrong, but some are useful” (George E. P. Box)

  • Compara o suporte de cada modelo
  • AIC e BIC levam em conta o ajuste (verossimilhança) e o número de parâmetros: mais parâmetros sempre ajustam melhor
  • BM, OU, EB e tendência têm números diferentes de parâmetros
  • Escolha o modelo que é a aproximação mais eficiente da “verdade”; com poucas espécies, use o AICc e os pesos de Akaike

Burnham & Anderson, Model selection and multimodel inference, Springer.

O tamanho do corpo dos Anolis

geiger::fitContinuous(arvore, svl, model = "BM")   # e "OU", "EB"
Modelo k log L AICc ΔAICc wi
BM 2 5,26 -6,36 0,57 0,37
OU 3 5,26 -4,20 2,72 0,13
EB 3 6,62 -6,93 0,00 0,50

Nenhum modelo se destaca: o EB tem o maior peso, mas o BM fica perto.

Duas lições da literatura

O EB é raro: pouco suporte para o EB no tamanho e na forma do corpo, mesmo em exemplos clássicos de radiação adaptativa; e o BM às vezes ajusta mal.

O erro de medida (e a variação intraespecífica) deve entrar sempre no modelo: ignorá-lo favorece modelos mais complexos, como o OU.

Silvestro et al. (2015), Methods Ecol. Evol. 6: 340–346. Em fitContinuous: argumento SE.

5. Adequação do modelo

Como evolui?

Ajuste relativo × adequação

  • A abordagem de teoria da informação (AIC) aponta o melhor modelo entre os disponíveis; o peso de Akaike ajuda a ver o quanto melhor
  • Mas o melhor pode explicar pouco dos dados (R² baixo, por exemplo)
  • O que fazer? Testar a adequação do modelo: os dados se parecem com o que o modelo gera?

Arbutus: Pennell, FitzJohn, Cornwell & Harmon (2015), Am. Nat. 186: E33–E50. Monte Carlo filogenético: Boettiger, Coop & Ralph (2012), Evolution 66: 2240–2251.

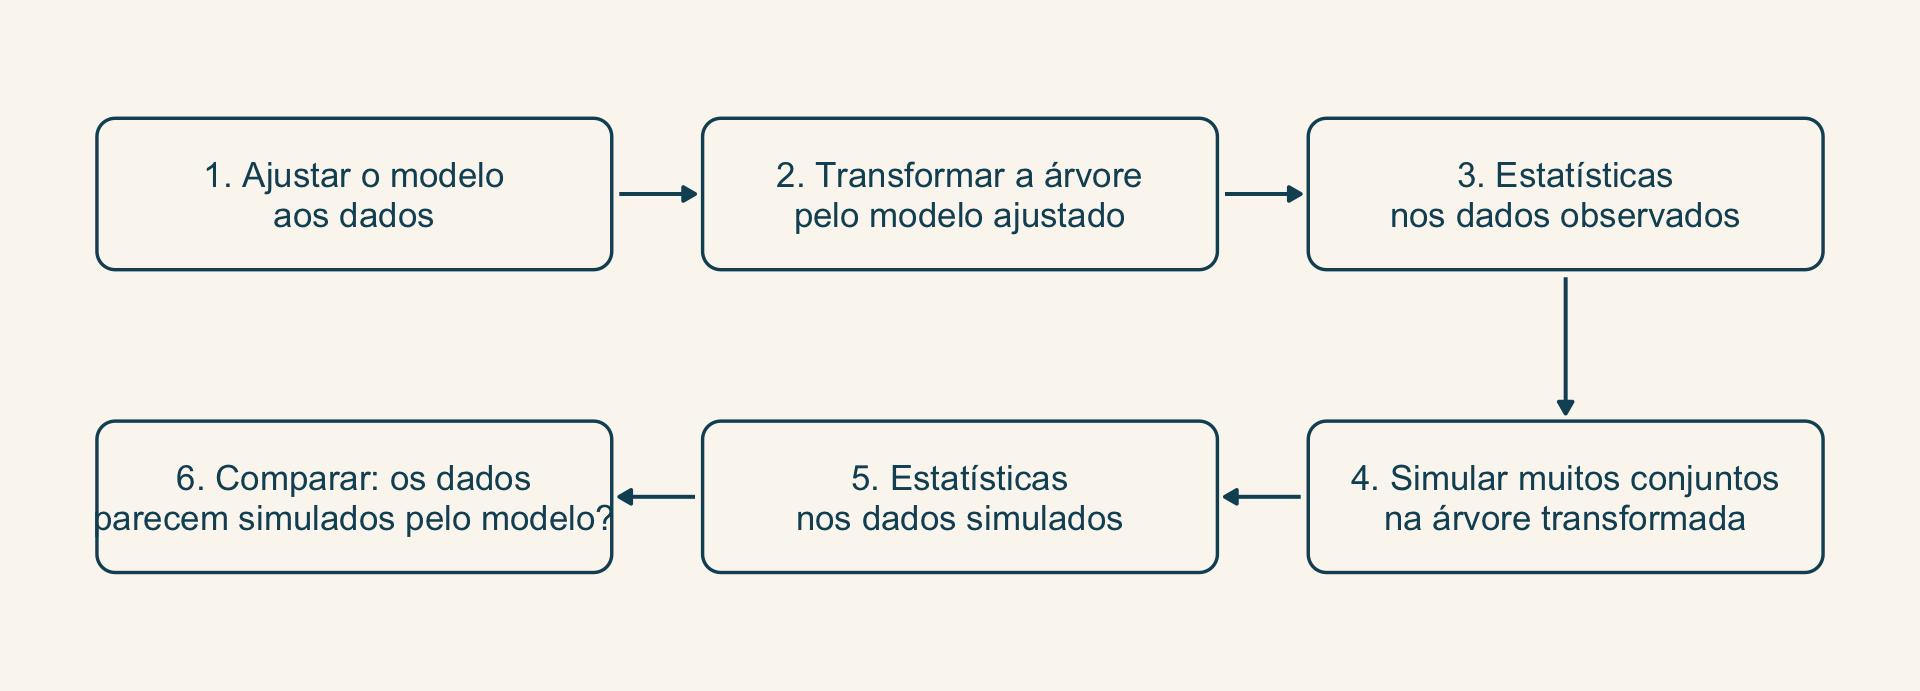
O ciclo do Arbutus

Seis caixas em ciclo: ajustar o modelo aos dados; transformar a árvore pelo modelo ajustado; calcular estatísticas nos dados observados; simular muitos conjuntos na árvore transformada; calcular as estatísticas nos simulados; comparar.

A ideia: modificar a árvore para descrever a história do atributo; quanto mais os dados observados se parecem com os simulados, melhor o modelo. Também serve para o PGLS.

6. Além dos quatro: BBM, FPK e evolução pulsada

Como evolui?

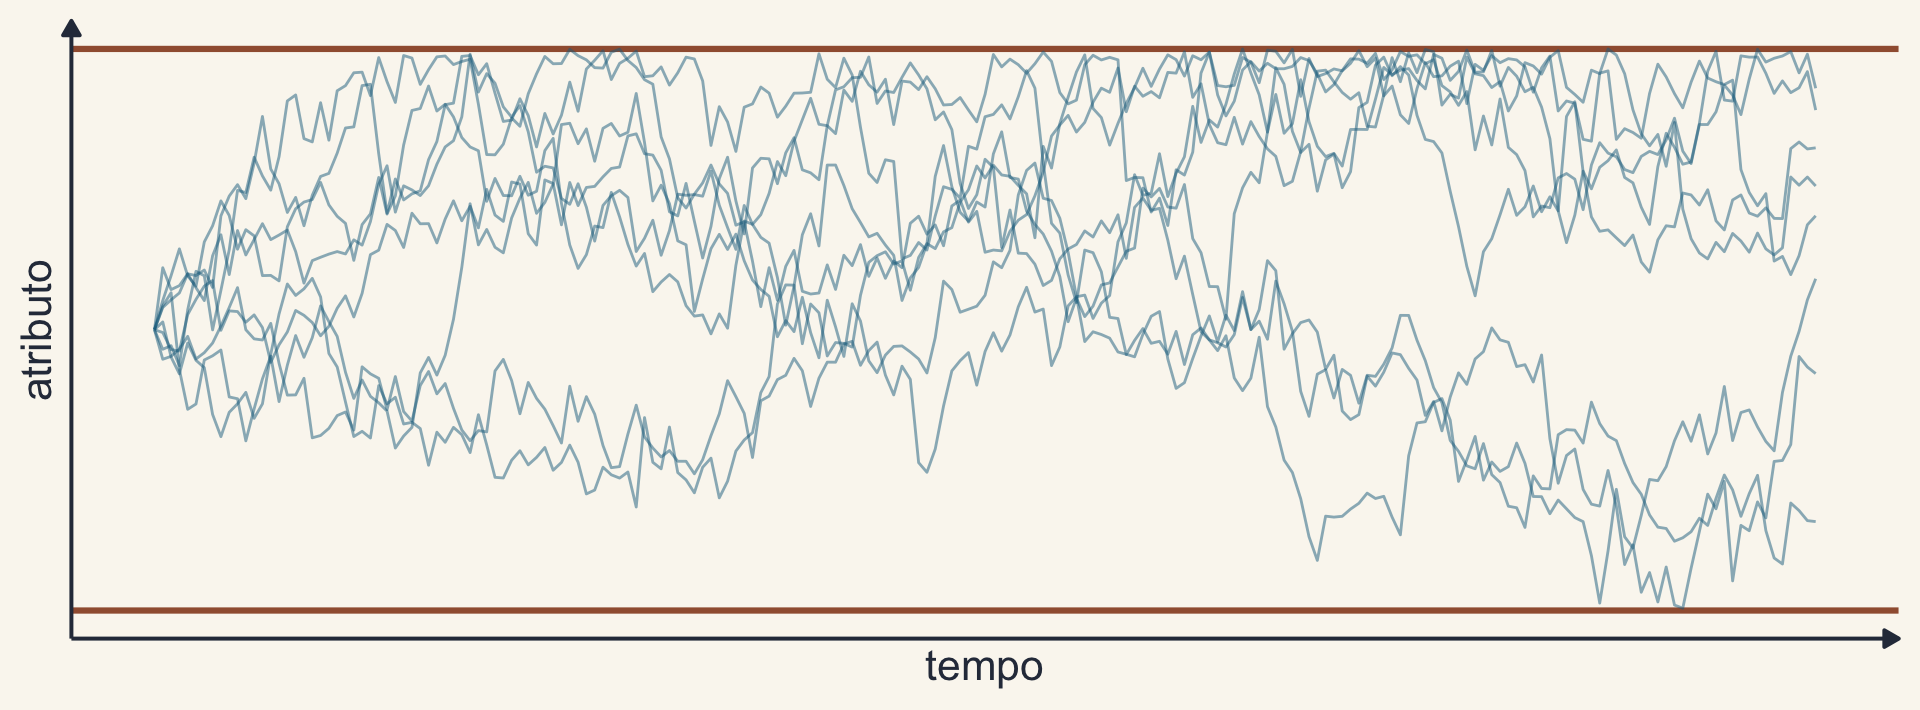
BM com limites (BBM)

Oito trajetórias de movimento browniano refletidas entre dois limites, marcados com linhas vermelhas.

O atributo evolui como BM, mas entre limites (fisiológicos, por exemplo). Ajuda a separar um OU de um BM limitado.

Boucher & Démery (2016), Syst. Biol. 65: 651–661.

Paisagens macroevolutivas: o modelo FPK
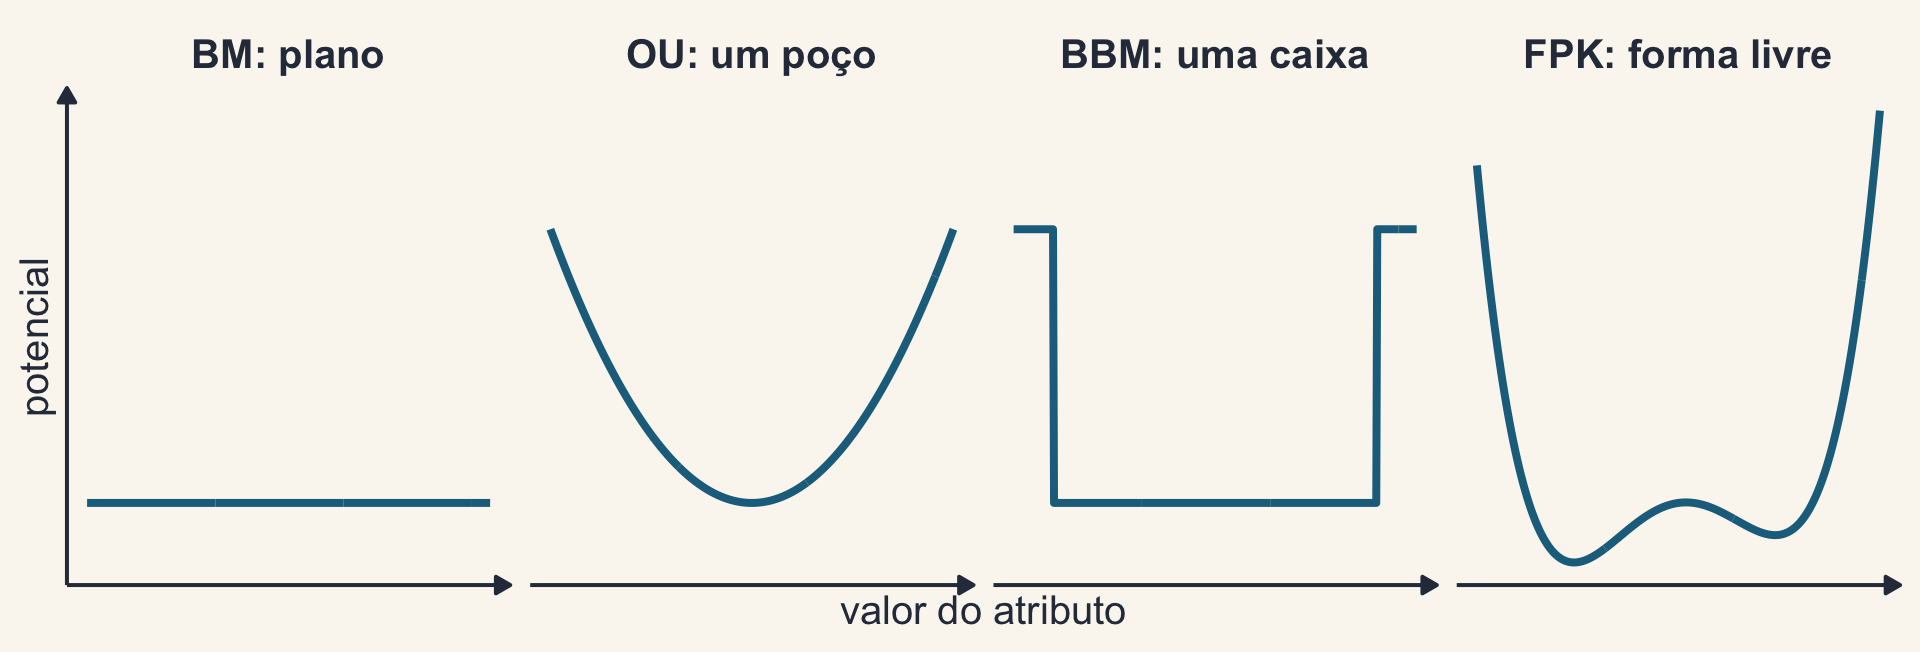
Quatro curvas de potencial: plana para o BM, um poço para o OU, uma caixa para o BBM e uma curva com dois vales para o FPK.

O atributo “desce” para os vales do potencial. BM, OU e BBM são casos particulares; o FPK estima a forma da paisagem a partir dos dados.

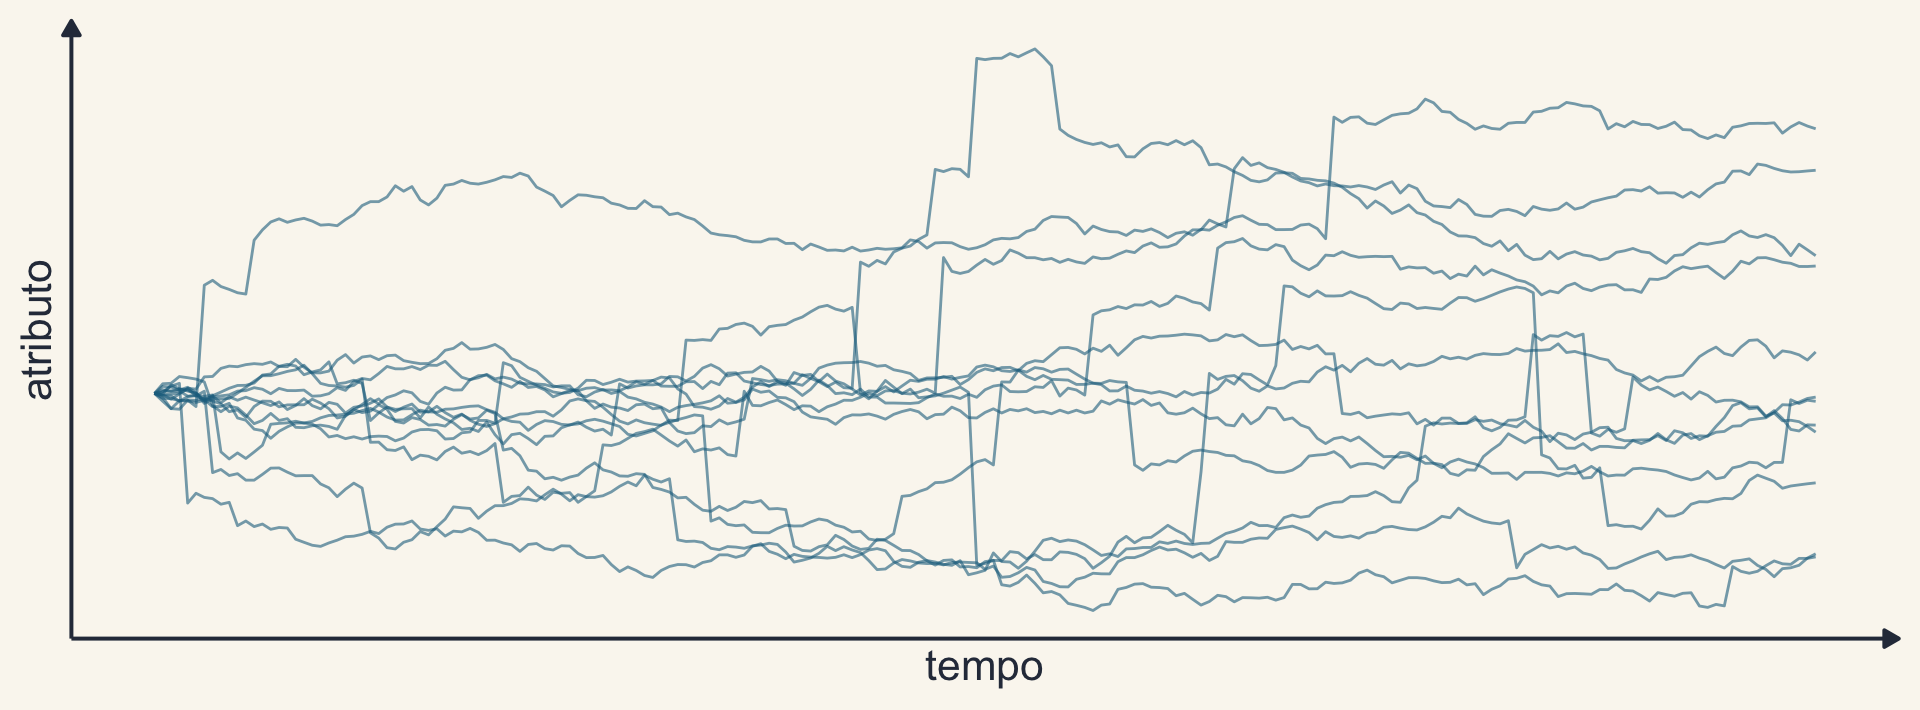
Evolução pulsada

Doze trajetórias de um movimento browniano com saltos raros e grandes.

Saltos raros e grandes sobre um BM (processos de Lévy): a evolução pulsada explica melhor o tamanho do corpo dos vertebrados do que mudanças graduais.

Landis & Schraiber (2017), PNAS 114: 13224–13229.

7. Paisagens adaptativas e radiação

Como evolui?

Radiação adaptativa

Critérios de Simpson (a “paisagem de Simpson”) para detectar radiações:

  • dispersão para novas áreas geográficas
  • surgimento de um atributo-chave
  • extinção em massa de competidores
  • ocupação de novos “nichos” ou zonas adaptativas

Se os atributos evoluem com taxas diferentes em linhagens diferentes, comparamos modelos com \(\sigma^2\) e \(\theta\) diferentes.

Simpson (1944), Tempo and mode in evolution.

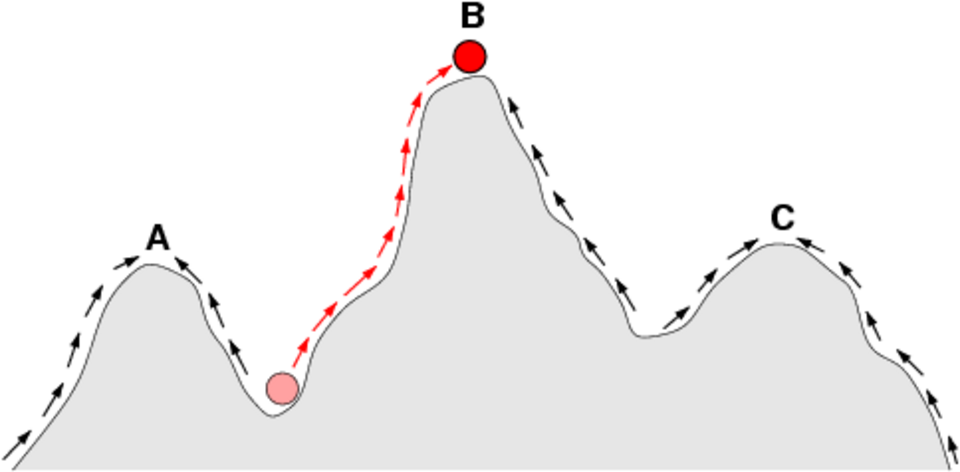
A metáfora da paisagem adaptativa

Perfil de uma paisagem de aptidão com três picos, A, B e C, sendo B o mais alto. Setas sobem as encostas em direção a cada pico; uma população num vale sobe, por setas vermelhas, até o pico B.

Picos de aptidão (Wright 1932) e zonas adaptativas (Simpson 1944); as paisagens também mudam no tempo. Em Cyprinodon das Bahamas, a paisagem medida no campo tem vários picos, que ajudam a explicar a radiação.

Martin & Wainwright (2013), Science 339: 208–211. Figura: C. O. Wilke, domínio público, via Wikimedia Commons.

As paisagens também mudam no tempo
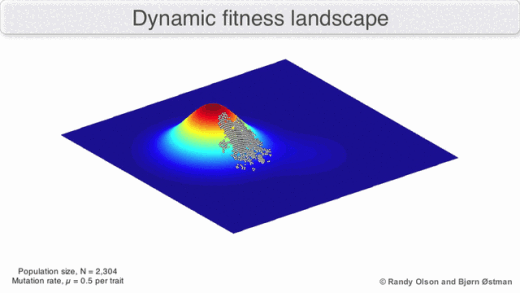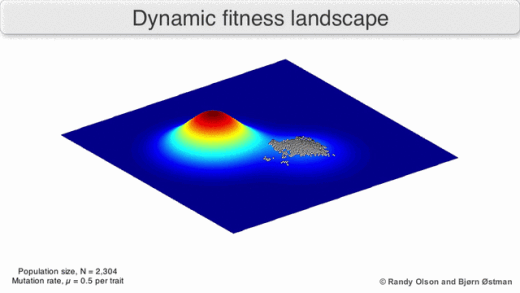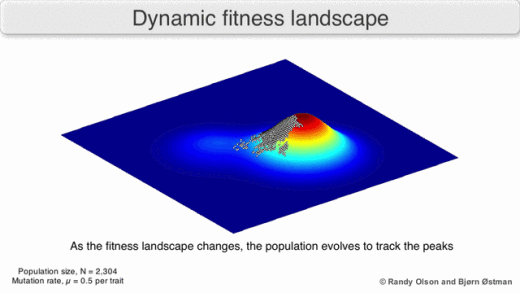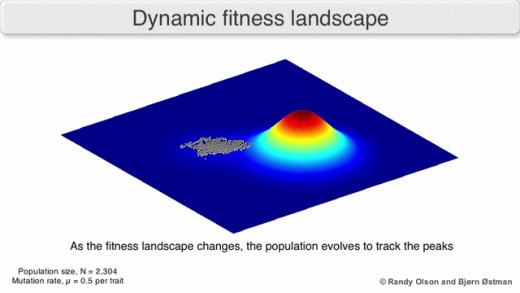
Animação de uma paisagem de aptidão em três dimensões: um pico vermelho se desloca e muda de altura ao longo do tempo, e uma nuvem de indivíduos da população se move pela superfície acompanhando o pico.

O ótimo se desloca, e a população o acompanha: a ideia por trás de θ que muda entre regimes ao longo da árvore.

Randy Olson & Bjørn Østman (2014), CC BY-SA 3.0, via Wikimedia Commons (quadros alternados, 520 px).

8. Várias taxas e vários regimes

Como evolui?

BM com várias taxas

  • Taxas (\(\sigma^2\)) diferentes em clados identificados a priori (o programa Brownie)
  • Centrarchidae, abertura da boca: σ² = 0,164 nos não piscívoros e 0,055 nos piscívoros; razão de verossimilhança p = 0,065
phytools::brownie.lite(arvore_com_regimes, abertura)

Sem definir os clados: uma abordagem bayesiana (rjMCMC) procura onde a taxa muda (geiger::rjmcmc.bm; Eastman et al. 2011).

Os ecomorfos dos Anolis

OU com vários regimes (θ, σ² e α por regime): ouch (Butler & King 2004), OUwie (Beaulieu et al. 2012). Aqui, o SVL com os ecomorfos mapeados (árvore com altura 1), no mvMORPH:

Modelo O que muda entre ecomorfos log L AICc ΔAICc wi
BM1 nada 5,3 -6,4 57,5 0,000
BMM a taxa σ² 26,2 -37,0 26,8 0,000
OU1 nada (um ótimo) 2,9 0,6 64,4 0,000
OUM o ótimo θ 40,9 -63,8 0,0 1,000

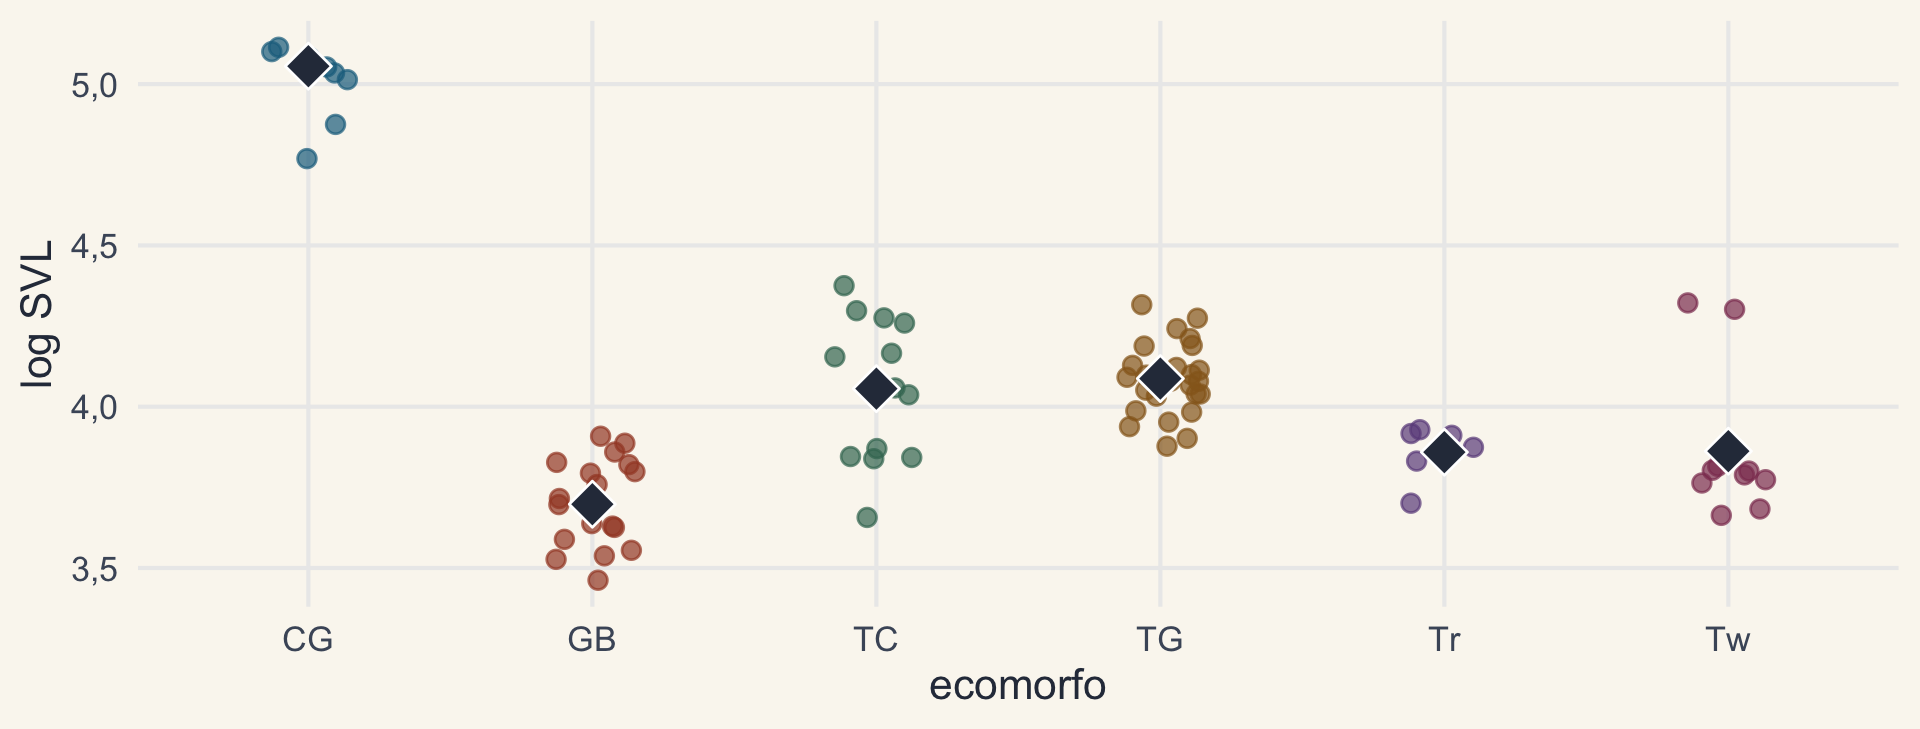
Um ótimo por ecomorfo

SVL das espécies de Anolis por ecomorfo, com o ótimo estimado de cada um como um losango: crown-giant perto de 5,1; grass-bush perto de 3,7; os demais entre 3,9 e 4,1.

Losangos: os ótimos θ do OUM. Espécies de ilhas diferentes convergem para o mesmo ótimo do seu ecomorfo.

Convergência nos Anolis: Mahler, Ingram, Revell & Losos (2013), Science 341: 292–295.

Convergência nos Anolis do Caribe

  • Padrões repetidos de convergência dos ecomorfos nas ilhas
  • Espécies distantes ocupam os mesmos hábitats e desenvolvem a mesma morfologia: restrições do hábitat, preenchimento do espaço de nicho
  • A evolução pode ser predita?

Mahler, Ingram, Revell & Losos (2013), Science 341: 292–295.

Mudanças de regime detectadas automaticamente

Sem atribuir os regimes a priori:

  • bayou: bayesiano (MCMC), com prior para o número de mudanças; detecta convergência; um atributo por vez
  • l1ou: rápido, por verossimilhança penalizada (LASSO)
  • PhylogeneticEM: vários atributos correlacionados

9. Cautelas com o OU

Como evolui?

Dificuldades de inferência

  • É difícil estimar os parâmetros do OU, sobretudo as mudanças de regime
  • Importa a razão entre o número de espécies e o de parâmetros
  • O estimador de máxima verossimilhança tem problemas
  • A posição das mudanças de regime depende pouco do tamanho da árvore
  • AIC e BIC tendem a favorecer modelos mais complexos
  • Muitas vezes há pouca informação nos dados para estimar os parâmetros com precisão (Cressler et al. 2015)

Ho & Ané (2014), Methods Ecol. Evol. 5: 1133–1146.

Recomendações de Ho & Ané (2014)

  1. Use um BIC corrigido pela filogenia
  2. Implementações bayesianas sofrem menos que a seleção de modelos passo a passo; teste a influência do prior
  3. Compare a meia-vida (\(\ln 2/\alpha\)) com a altura da árvore: se a meia-vida for muito grande, α pode estar mal estimado
  4. A ausência de uma mudança pode ser falta de poder, mesmo em árvores grandes

No OUM dos Anolis, a meia-vida é 0,07 da altura da árvore: o puxão é forte, e α deve ser lido com cuidado.

Uma nota de cautela

  • O erro tipo I é alto com amostras pequenas
  • Evite testes de razão de verossimilhança; prefira a seleção de modelos (bayesiana)
  • O erro de medida infla o erro tipo I
  • α é difícil de estimar: veja se o valor faz sentido para os seus dados e use a meia-vida

Cooper, Thomas, Venditti, Meade & Freckleton (2016), Biol. J. Linn. Soc. 118: 64–77. Desempenho depende da discriminabilidade, da razão sinal/ruído e do número de espécies: Cressler, Butler & King (2015).

A resposta: as cautelas são exageradas

Três contra-argumentos a Cooper et al. (2016):

  1. O teste padrão de adaptação compara ótimos diferentes (ex.: um por ambiente, OUM × OU1); Cooper et al. avaliaram só OU × BM com um ótimo
  2. Olhe as estimativas dos parâmetros (α, meia-vida, θ), não só a significância: elas costumam levar à inferência correta
  3. O viés do erro de medida se corrige com métodos padrão (incluir o erro no modelo)

Conclusão dos autores: não há problema estatístico específico do OU.

Grabowski, Pienaar, Voje et al. (2023), Syst. Biol. 72: 955–963.

O “lado escuro” dos métodos comparativos

  • Com pouco erro de medida (ou ignorando a variação intraespecífica), o OU tende a ajustar melhor mesmo com um parâmetro a mais, porque acomoda mais variância perto das pontas, e não necessariamente por uma causa biológica
  • Leia com cuidado antes de usar os métodos no R
  • Seja sempre crítico com os resultados
  • Relate as análises com ferramentas de reprodutibilidade (Quarto)

Cooper, Thomas & FitzJohn (2016), Methods Ecol. Evol. 7: 693–699.

Para fechar

Onde estamos

O mapa dos métodos de novo, com a célula dos modelos de atributos contínuos destacada.

Leituras

Antes de usar qualquer método, leia o artigo que o propôs. Não fazer isso pode causar a rejeição do seu manuscrito.

Agora é com vocês

Pintura Efeitos do sol, de Belmiro de Almeida: uma moça de lenço na cabeça lê um papel num jardim iluminado, com o rosto meio encoberto. Legenda: o AIC escolheu o OU; e o alfa? difícil de estimar.

O AIC escolheu o OU E o α? Difícil de estimar

Belmiro de Almeida, Efeitos do sol (1892), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 4 e o desafio.