Sinal filogenético
Aula 3 · Métodos Filogenéticos Comparativos · PPGBA/UFMS
Definição
A tendência de espécies aparentadas serem mais parecidas entre si do que com espécies tomadas ao acaso na filogenia.
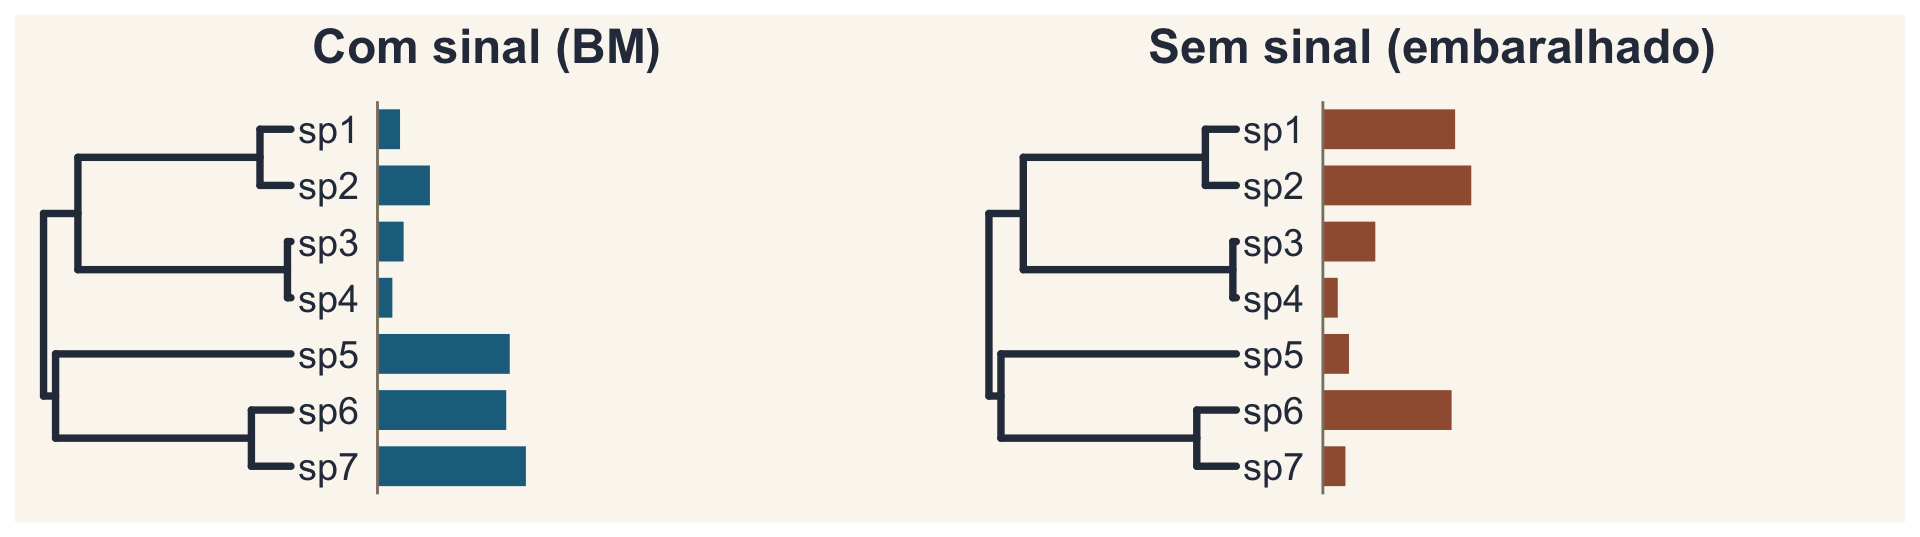
Mesmos valores, mesma árvore: o sinal está na associação entre os valores e o parentesco.
Blomberg & Garland (2002), J. Evol. Biol. 15: 899–910.
“Sinal” filogenético: dois sentidos
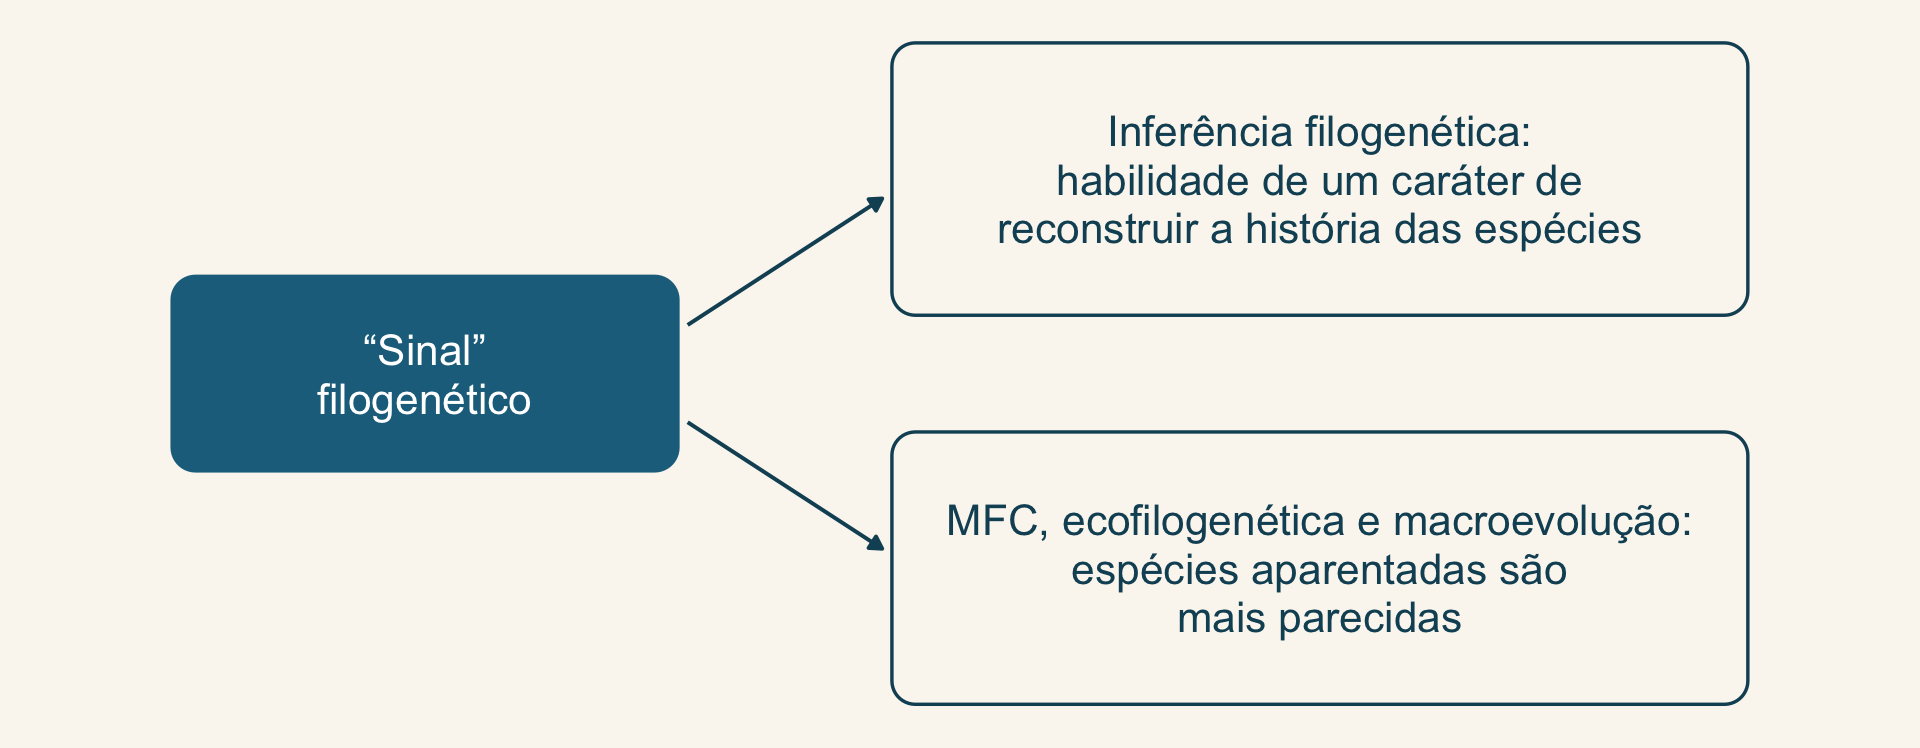
Nesta disciplina, o segundo sentido.
Vários modelos evolutivos geram “sinal”
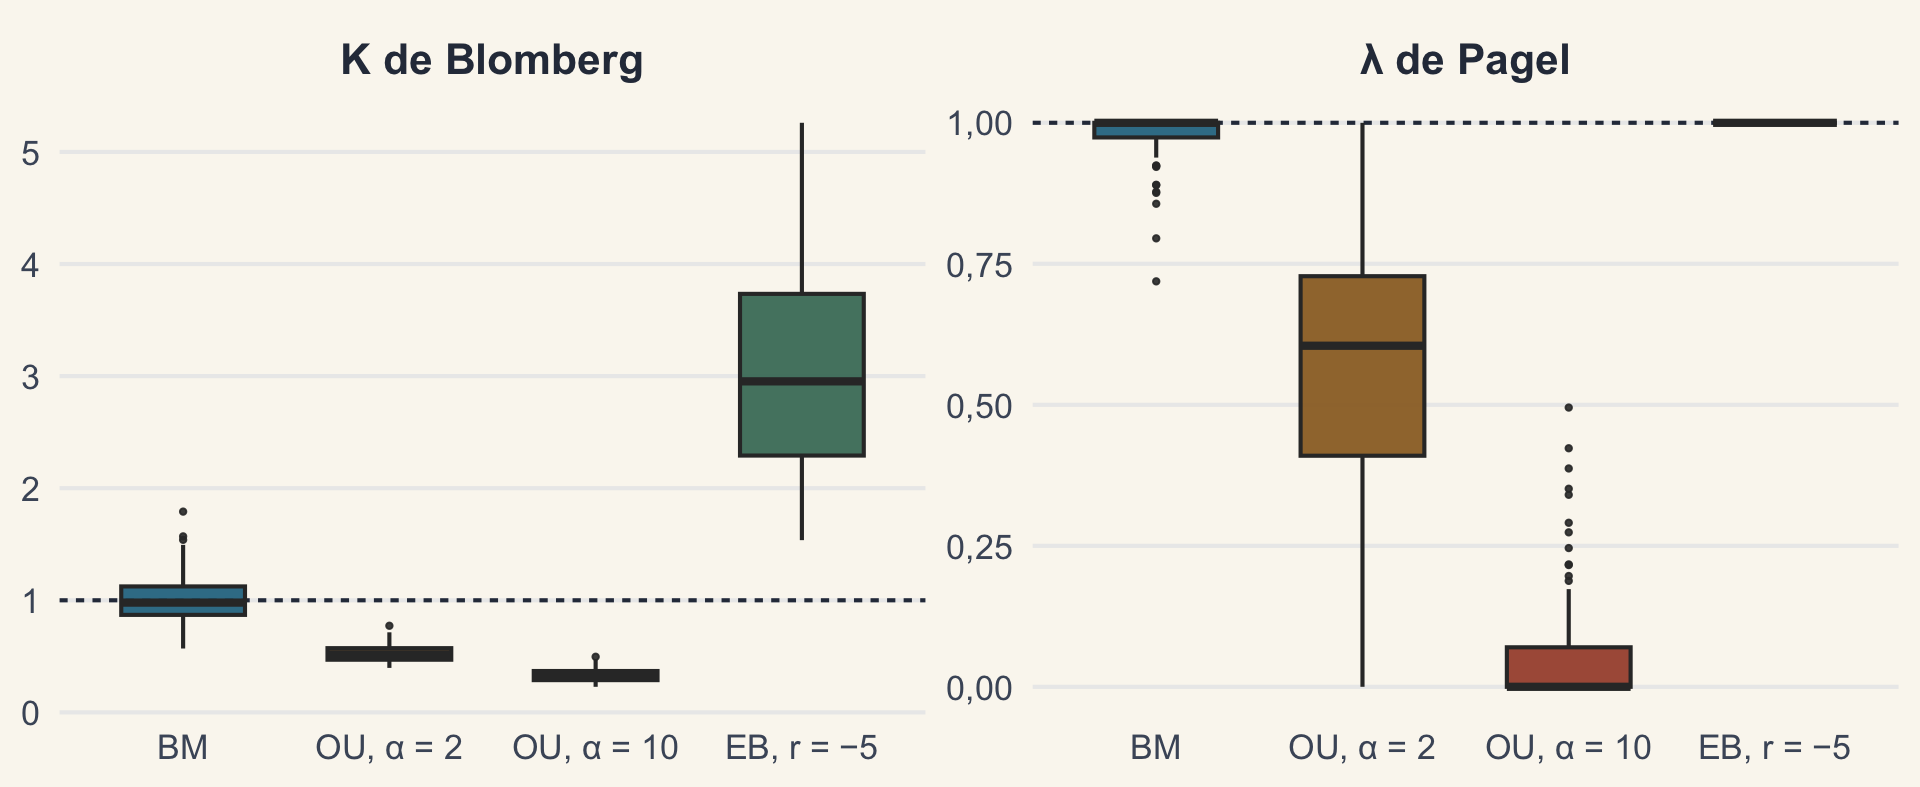
100 simulações por modelo na árvore dos Anolis (altura 1). Inspirado em Revell, Harmon & Collar (2008).
“Sinal” não é sinônimo de restrição
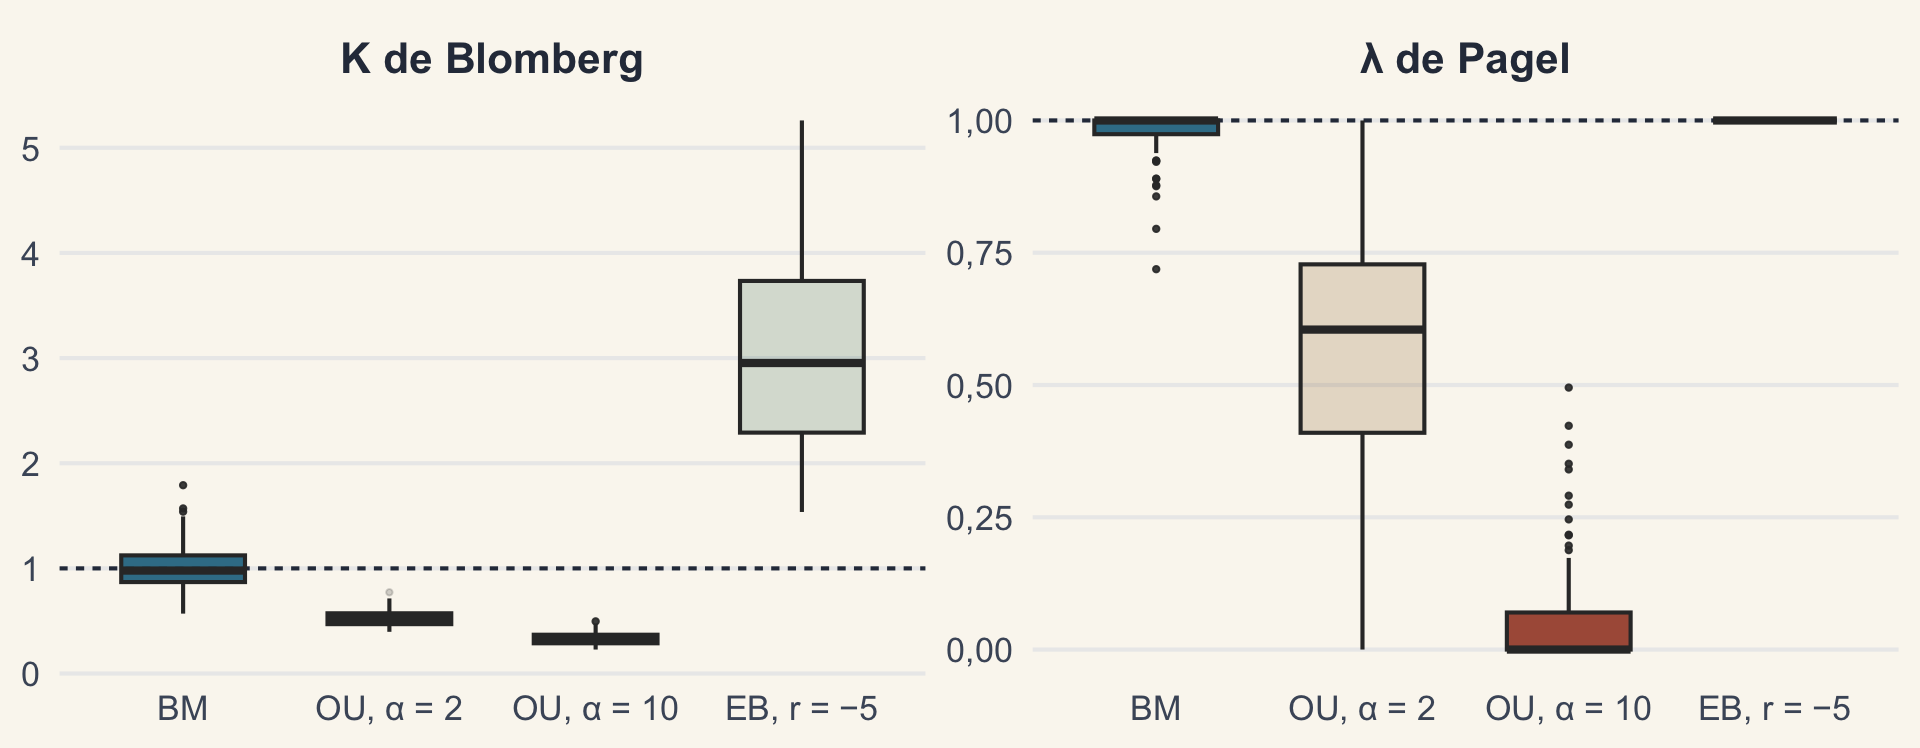
Um modelo sem restrição (BM) gera sinal alto (K mediano 0,98); um com restrição forte (OU, α = 10) gera sinal baixo (K mediano 0,33).
As medidas concordam?
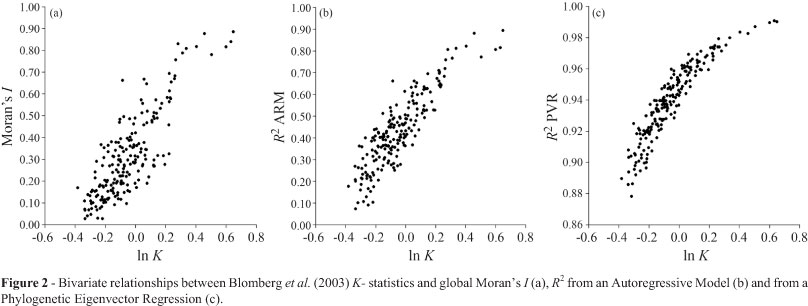
As medidas são correlacionadas sob BM, mas não são intercambiáveis.
Fig. 2 de Diniz-Filho, Santos, Rangel & Bini (2012), Genet. Mol. Biol. 35: 673–679, CC BY-NC 4.0. Comparação mais ampla: Münkemüller et al. (2012).
Como ler o K
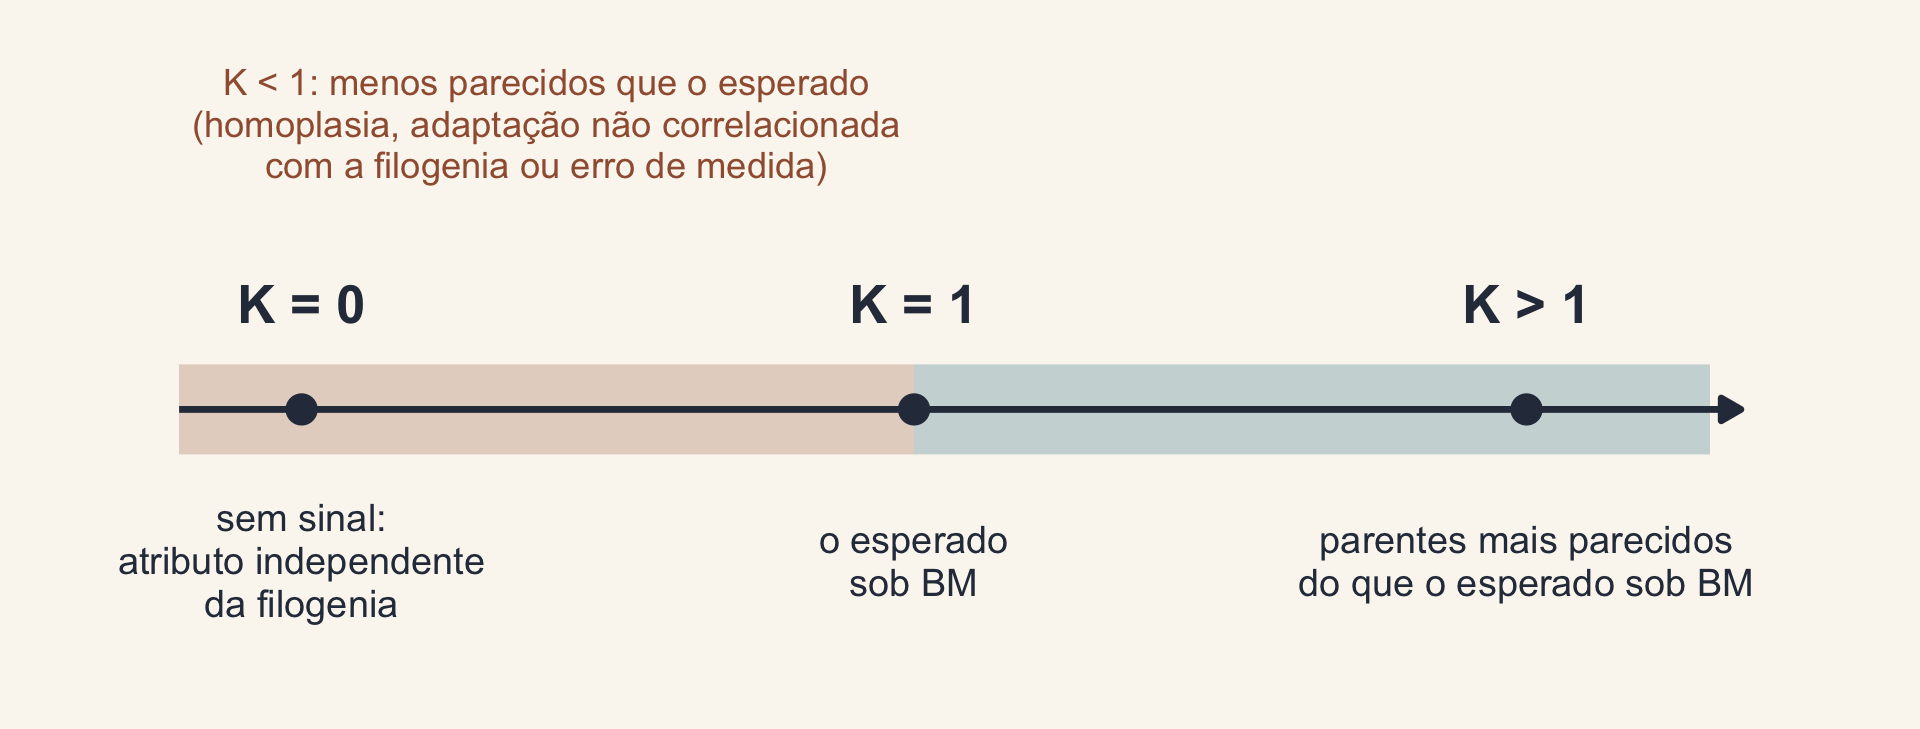
Paráfrase de Blomberg et al. (2003).
O K do tamanho do corpo dos Anolis
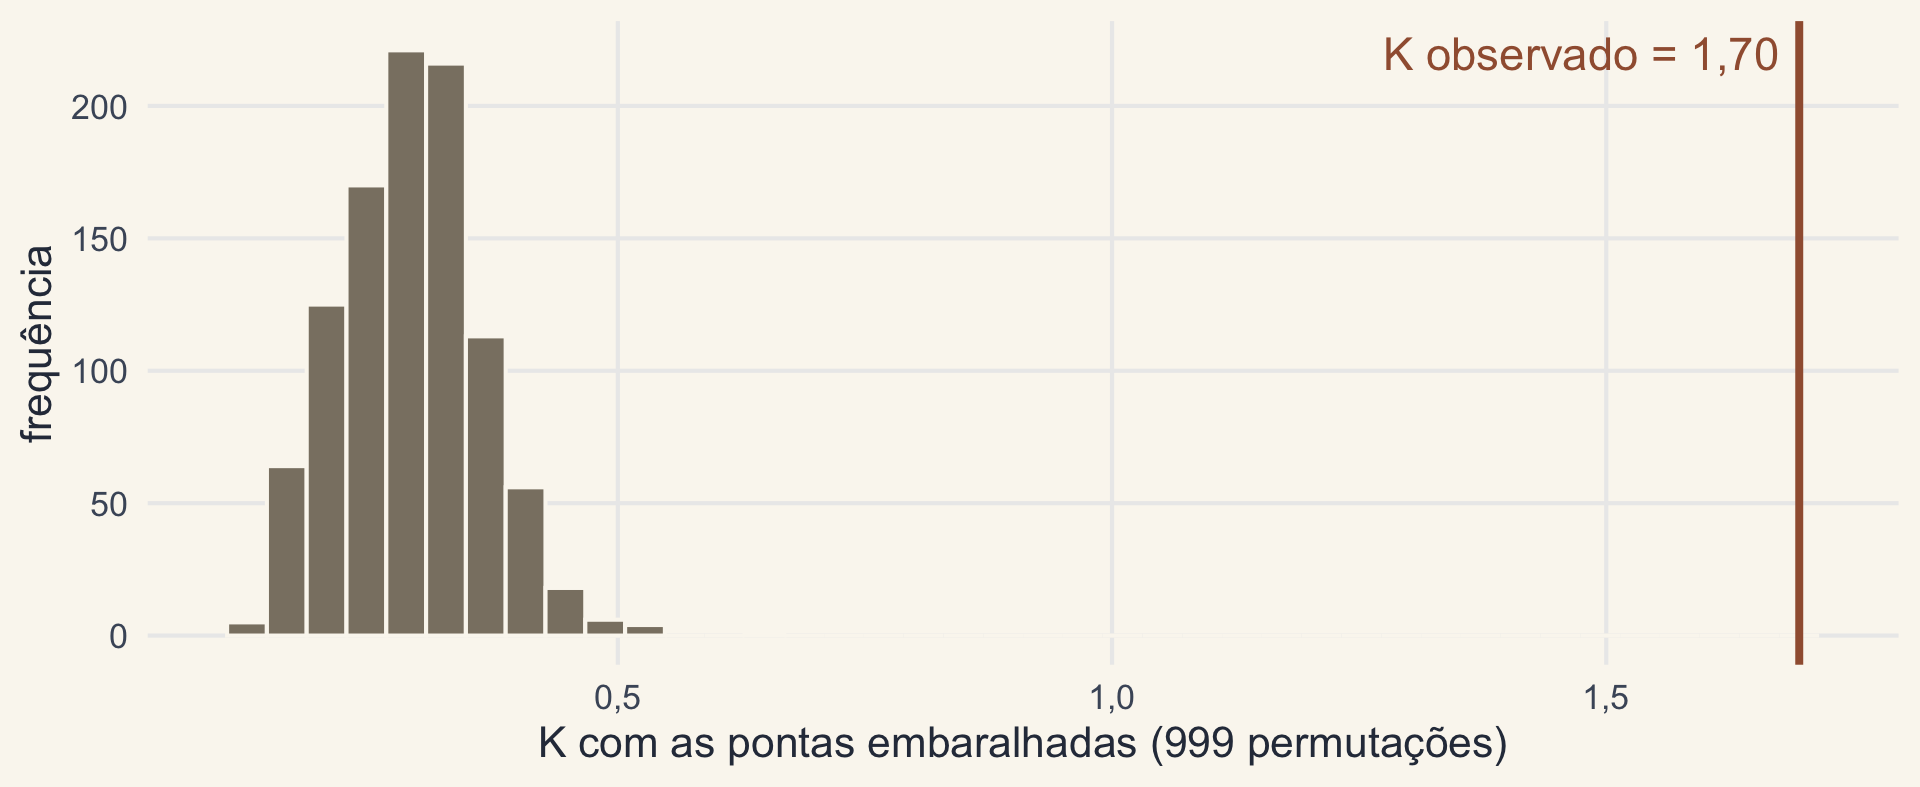
SVL de 82 espécies: K = 1,70, maior que todos os 999 valores com as pontas embaralhadas.
Quantas espécies são necessárias?
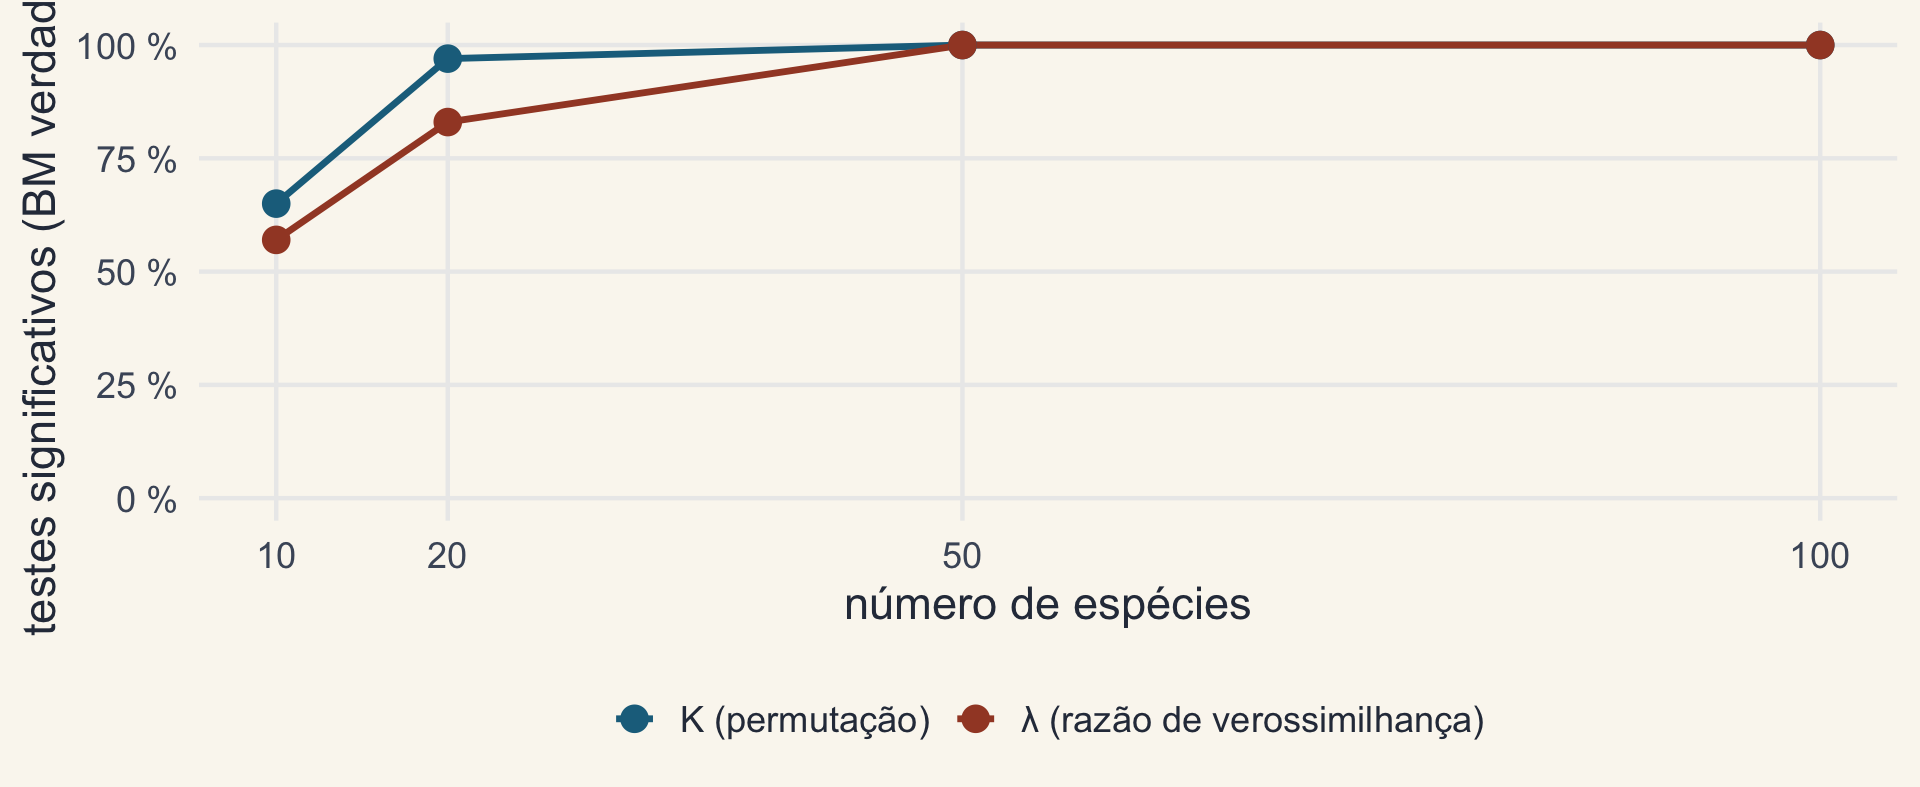
Com 10 espécies, o teste do K detecta o sinal de um BM verdadeiro em 65 % das vezes; o do λ, em 57 %.
λ de Pagel
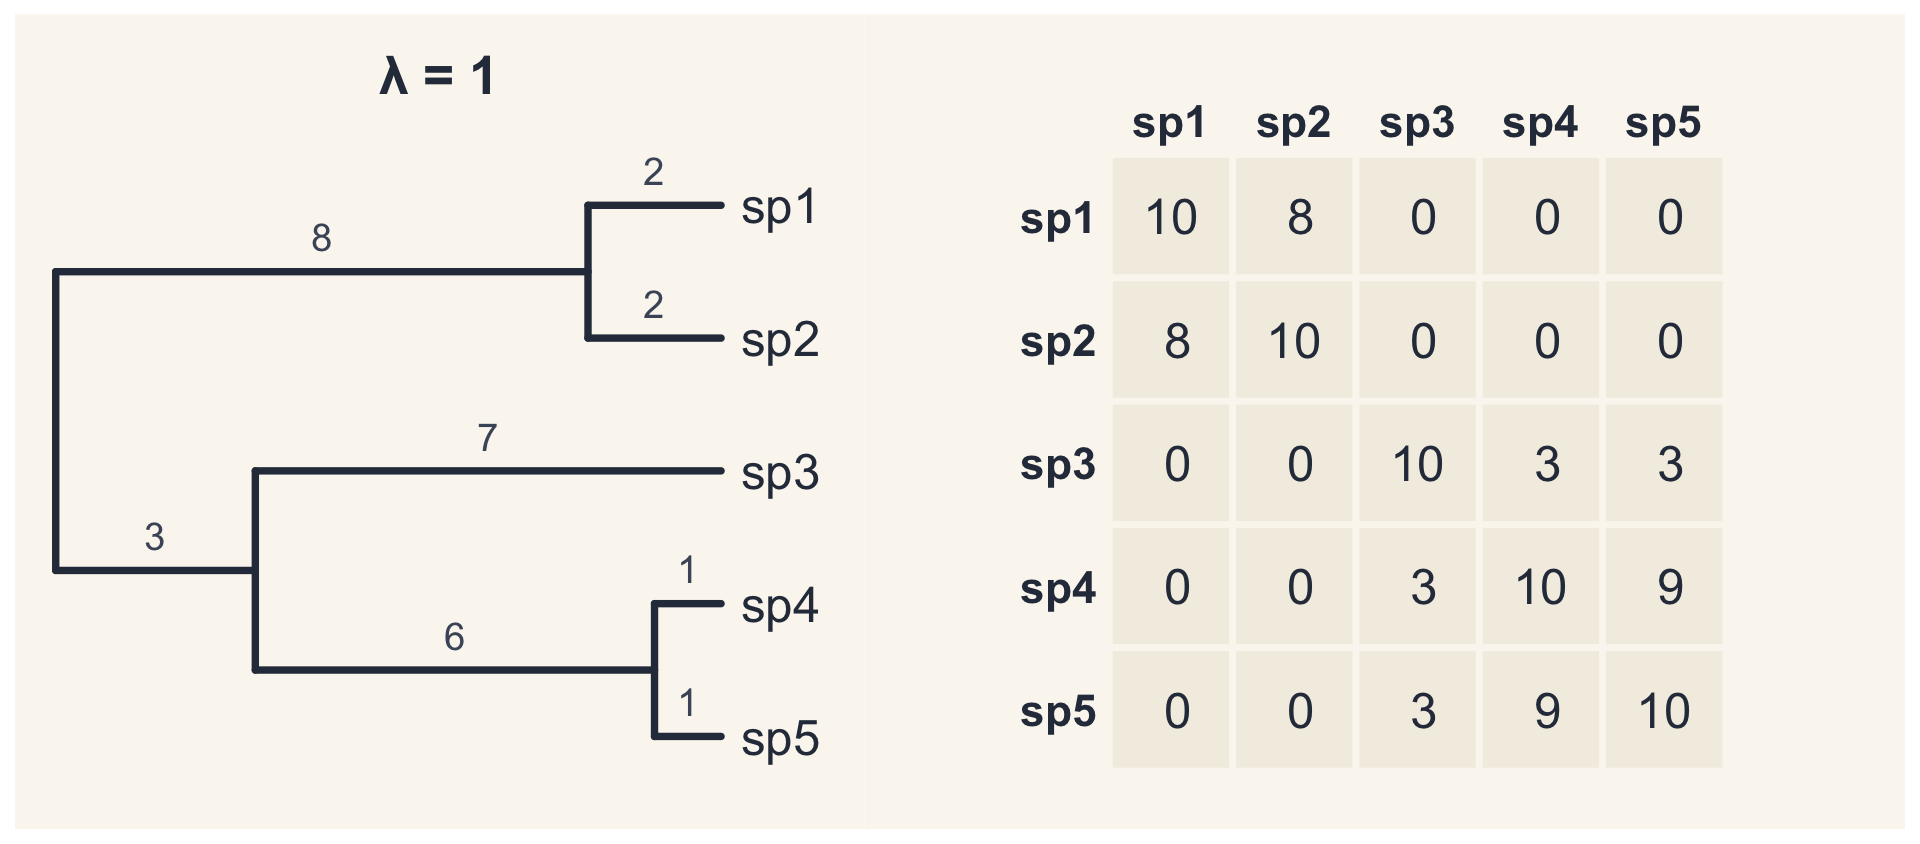
Pagel (1999), Nature 401: 877–884.
O λ multiplica as covariâncias
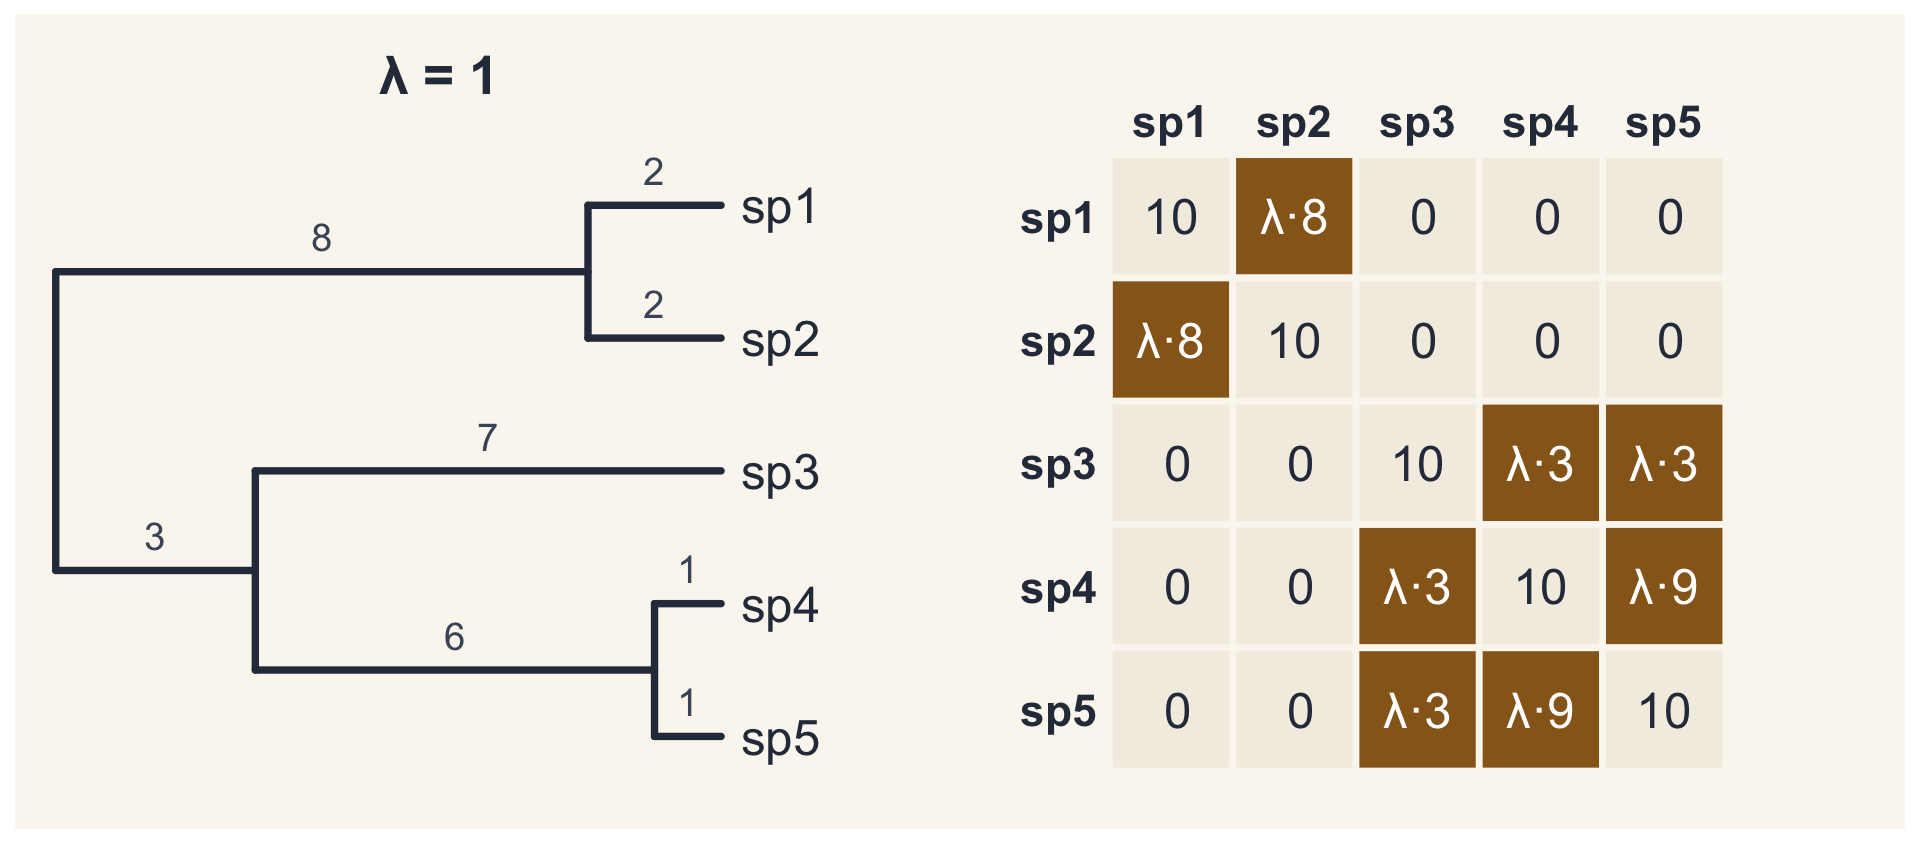
A diagonal não muda; o que muda é quanto as espécies compartilham.
λ = 0,5
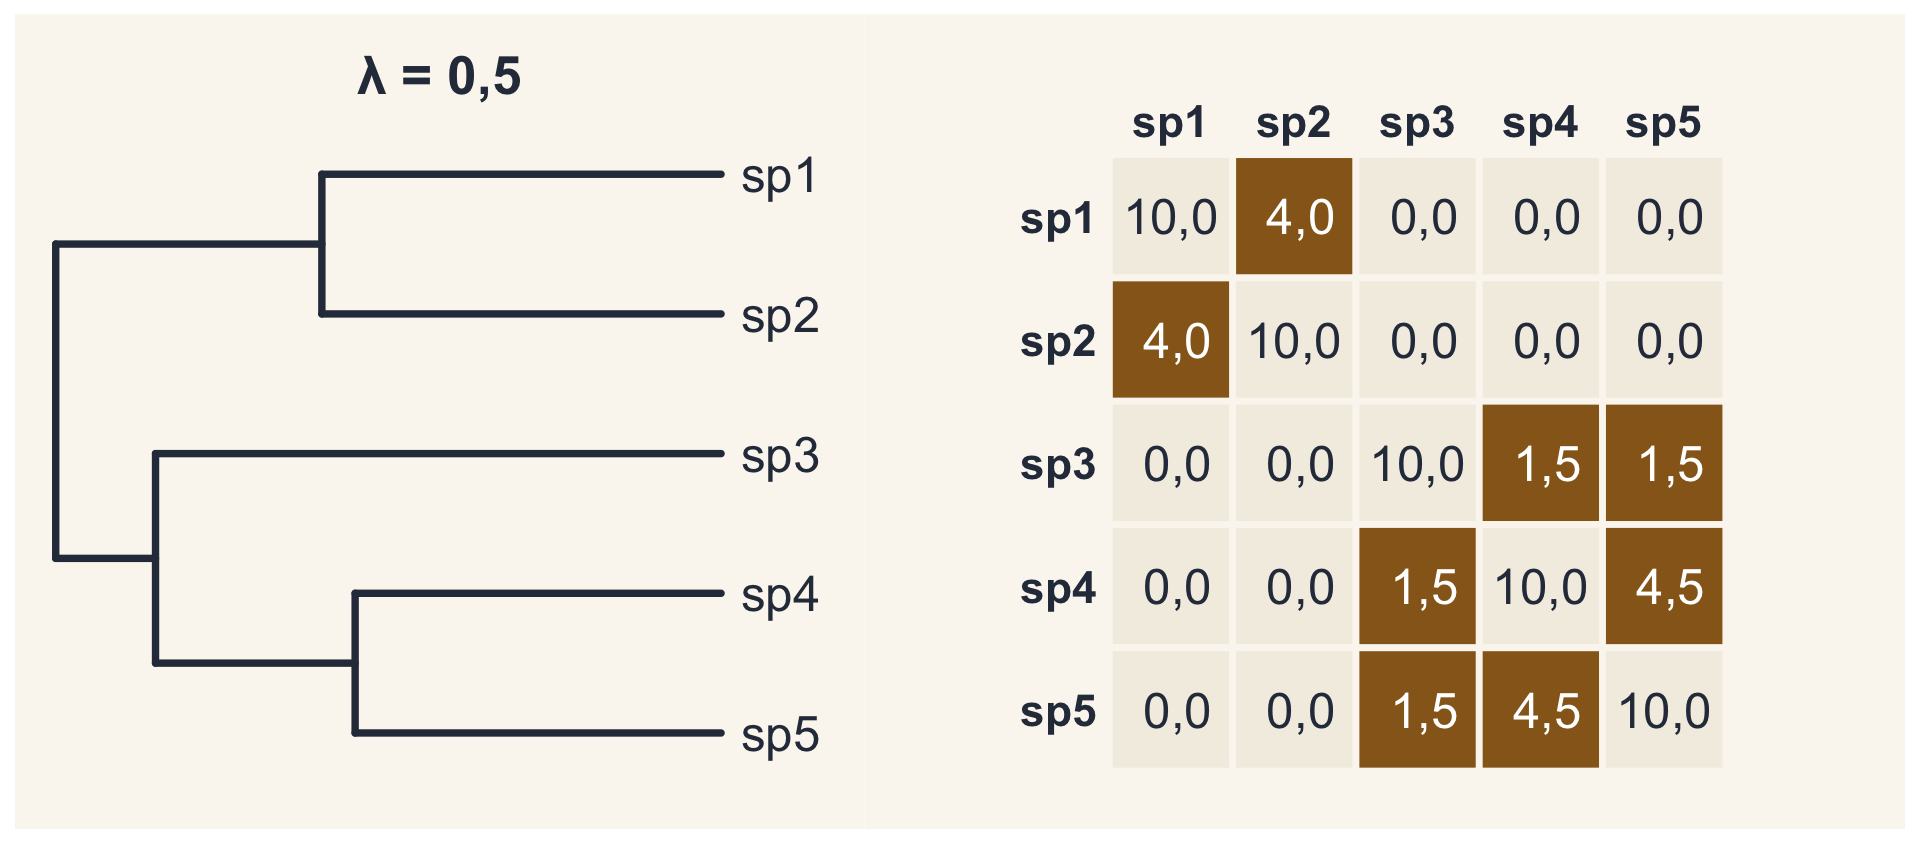
\(0{,}5 \times 8 = 4\); \(\;0{,}5 \times 3 = 1{,}5\); \(\;0{,}5 \times 9 = 4{,}5\)
λ = 0,05
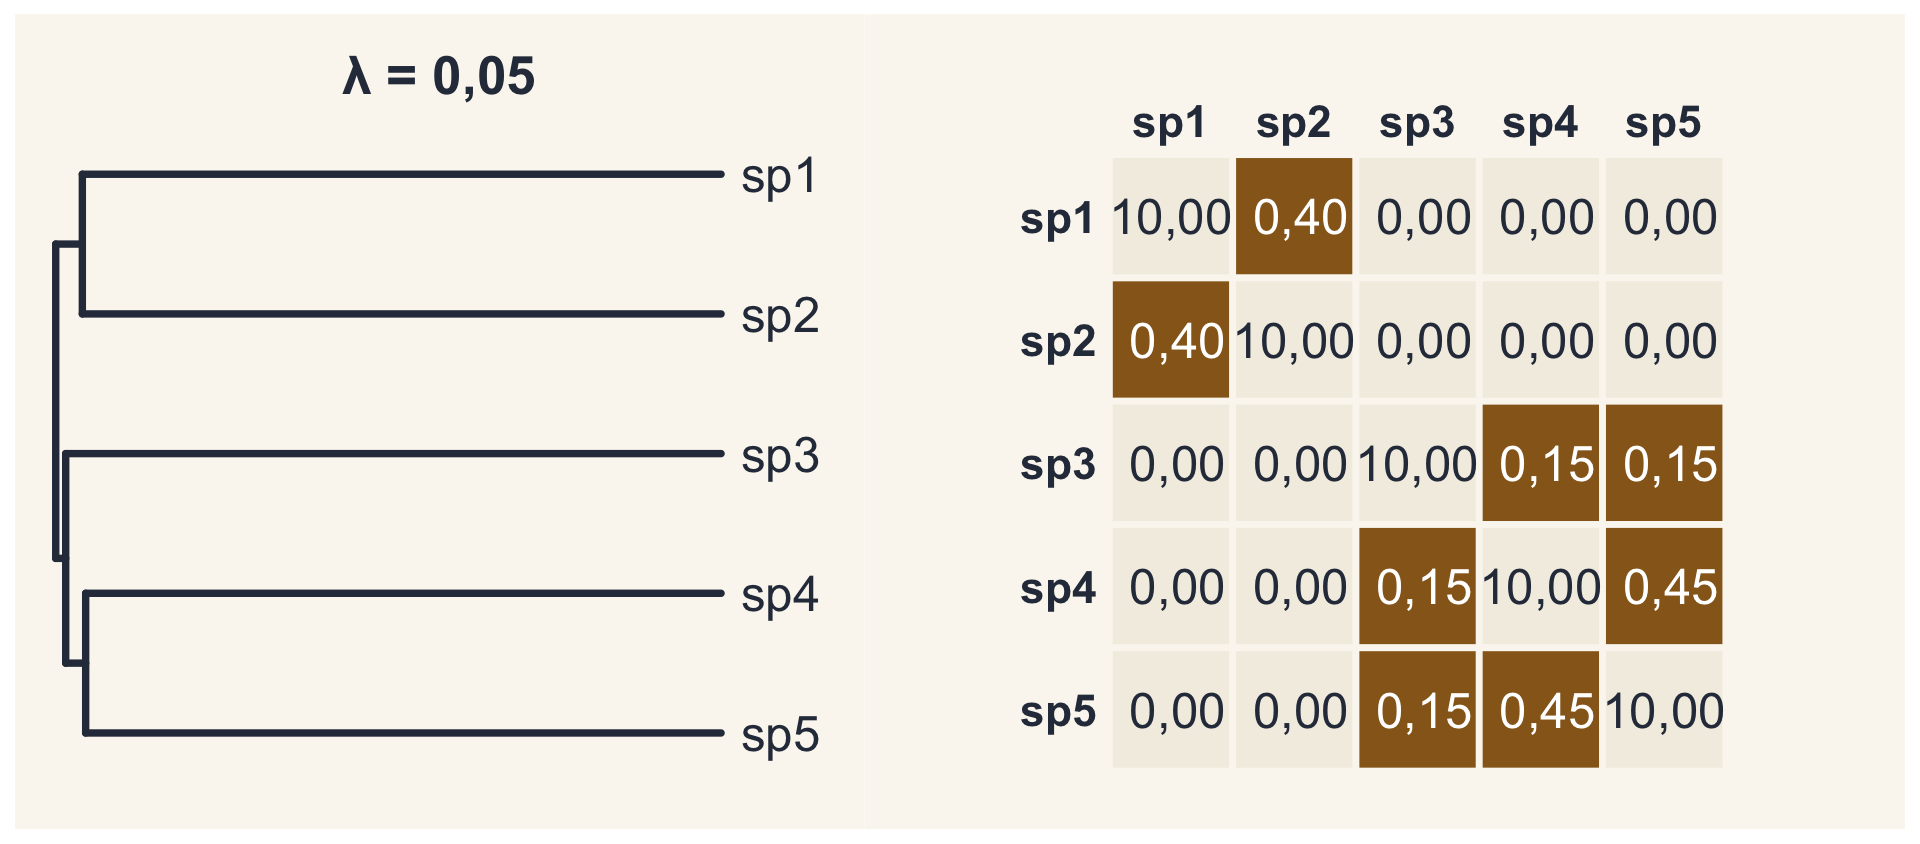
λ = 1: a árvore como ela é (BM). λ = 0: uma estrela (espécies independentes).
λ multiplica a matriz, não os ramos
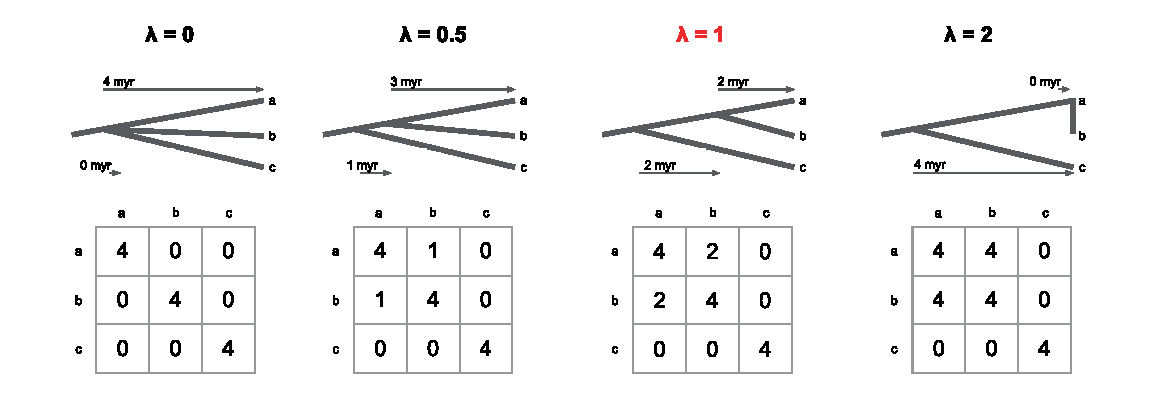
O λ escala os elementos fora da diagonal de C. Pode passar de 1, mas só até a covariância igualar a variância (aqui, λ = 2): além disso, C deixa de ser uma matriz de covariância válida. É por isso que o λ de 1,013 da Aula 5 é possível.
Fig. 1 de Pearse, Davies & Wolkovich (2025), Glob. Ecol. Biogeogr. 34: e70012, CC BY 4.0.
O λ é estimado por máxima verossimilhança
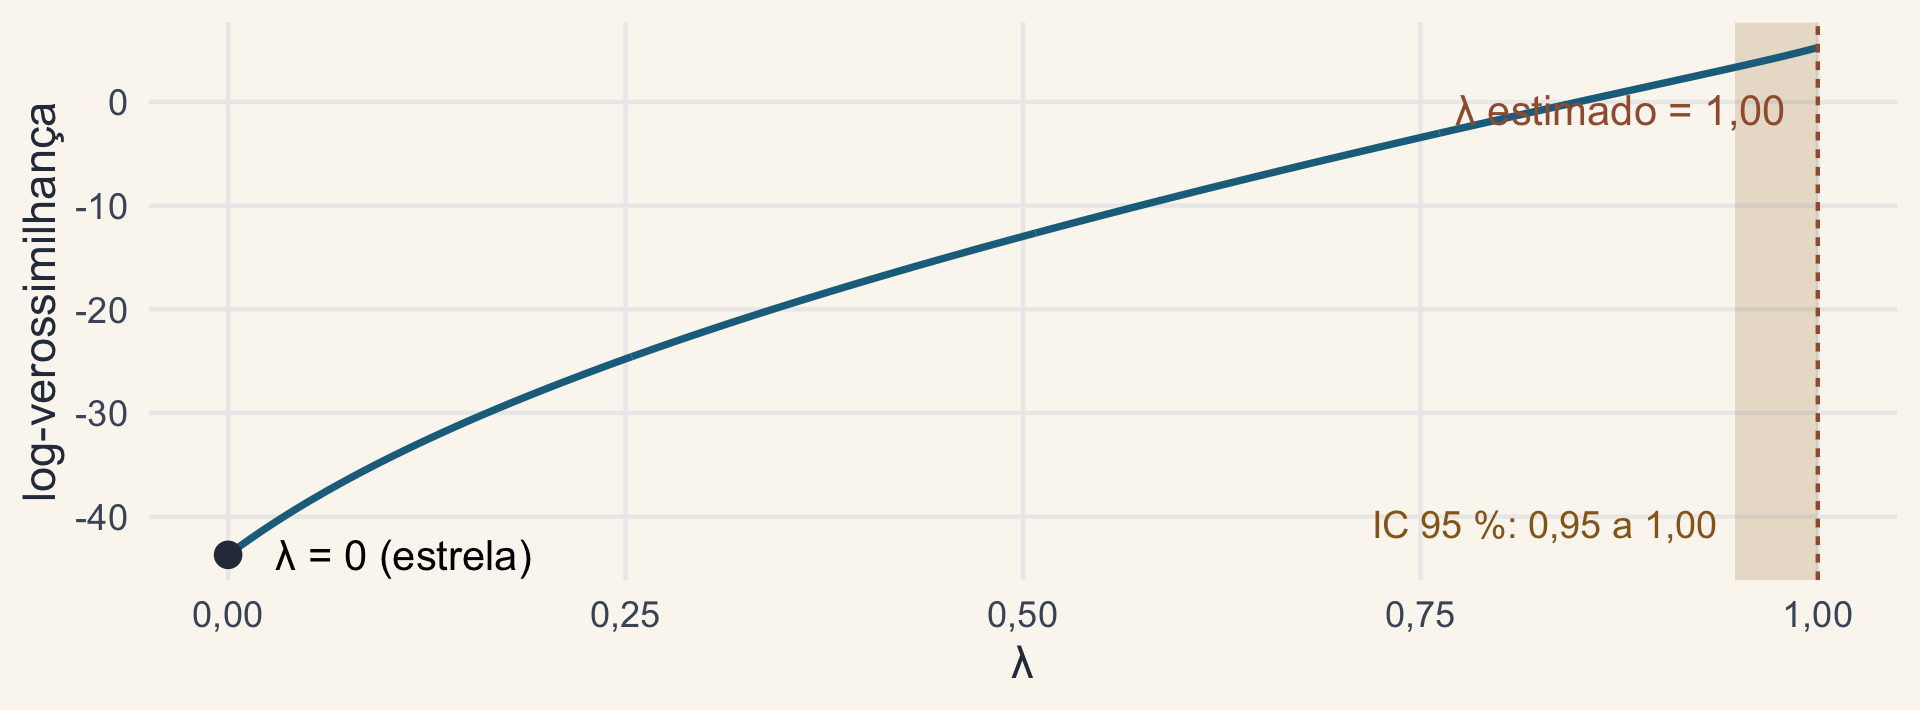
SVL dos Anolis: λ = 1,00; o teste da razão de verossimilhança contra λ = 0 dá p = 4,4e-23. Relate o intervalo, não só a estimativa: o perfil quase sempre é largo.
O intervalo de confiança pelo perfil segue a recomendação de Pearse et al. (2025).
A amostragem de espécies enviesa o λ
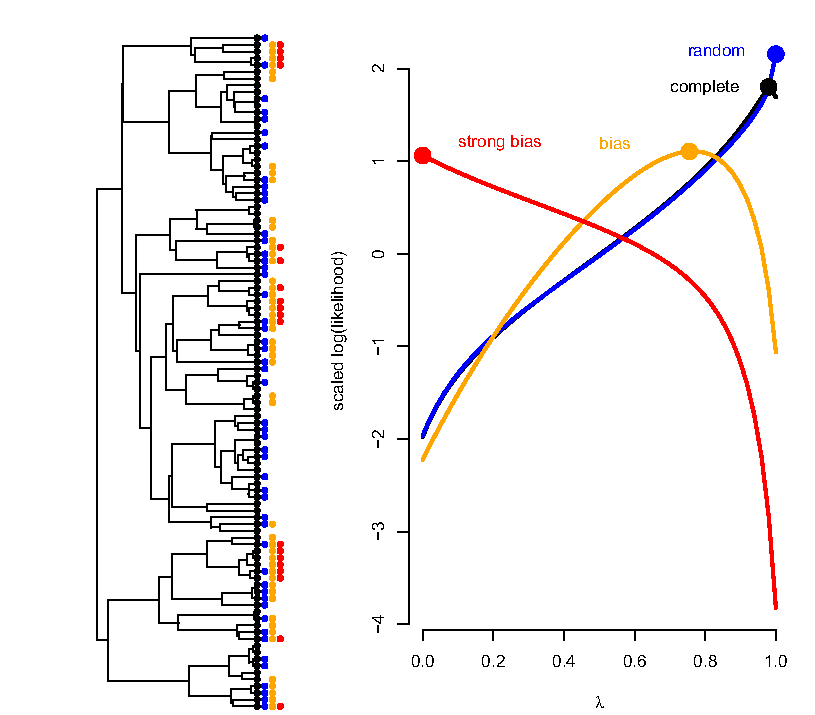
Quando as espécies amostradas dependem do próprio atributo (um filtro ambiental, por exemplo), o λ sai enviesado: não compare λ entre assembleias diferentes.
Fig. 3 de Pearse et al. (2025), CC BY 4.0.
A matriz de pesos W na árvore-guia
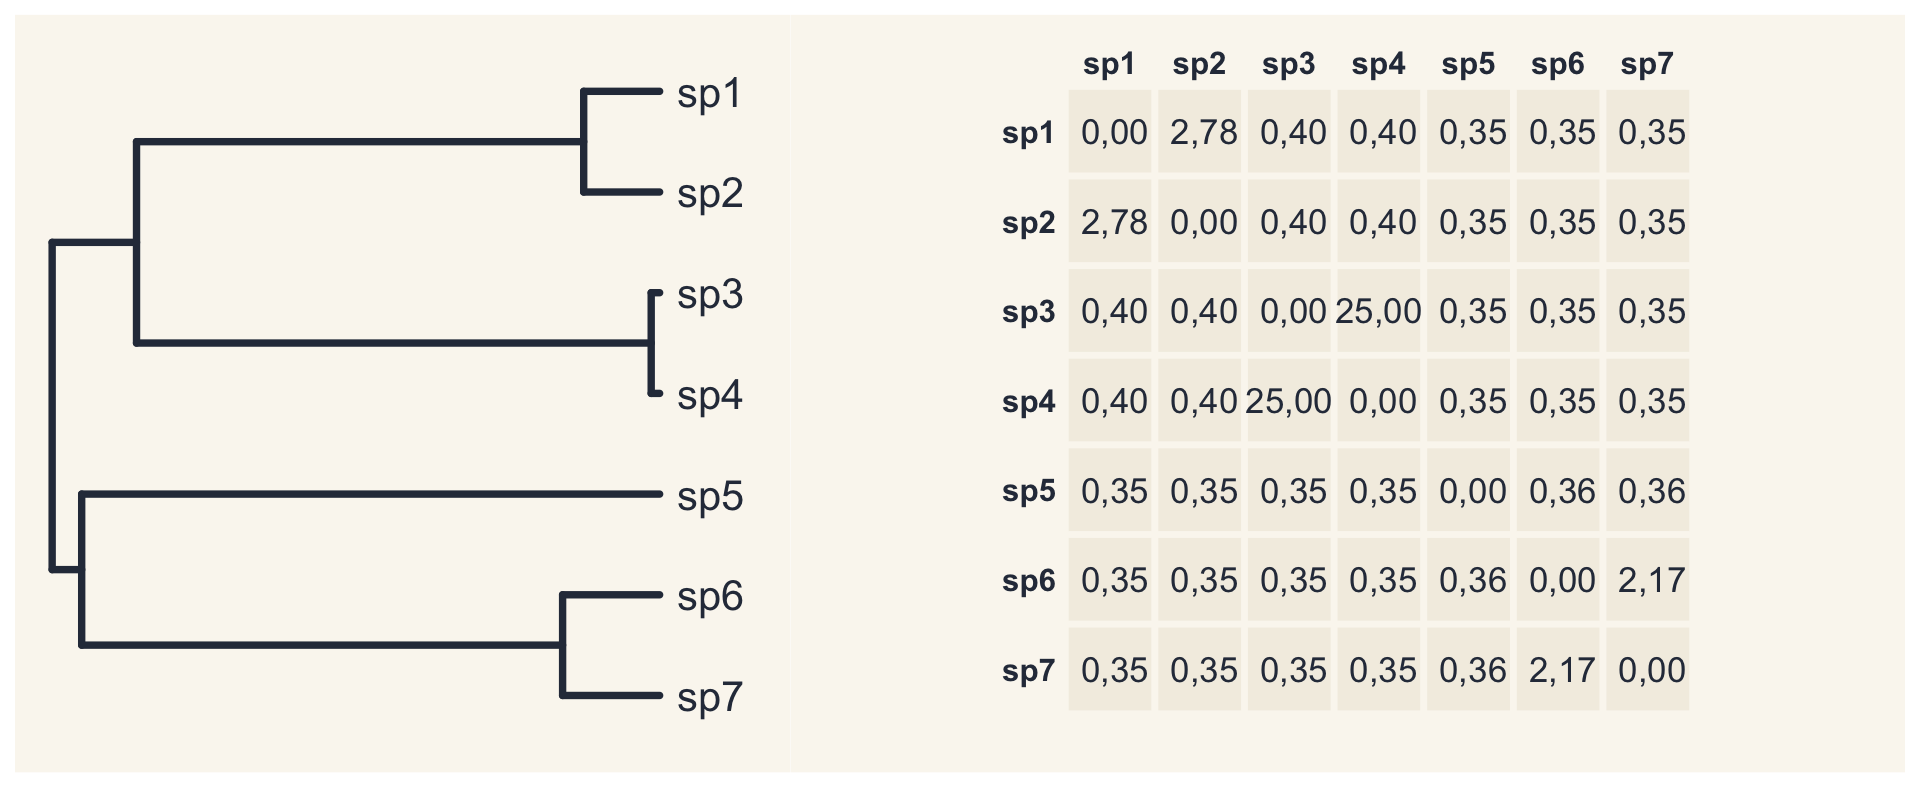
I de Moran do atributo A: 0,304 com a fórmula acima; 0,380 com ape::Moran.I, que padroniza as linhas de W.
Correlogramas sob processos diferentes
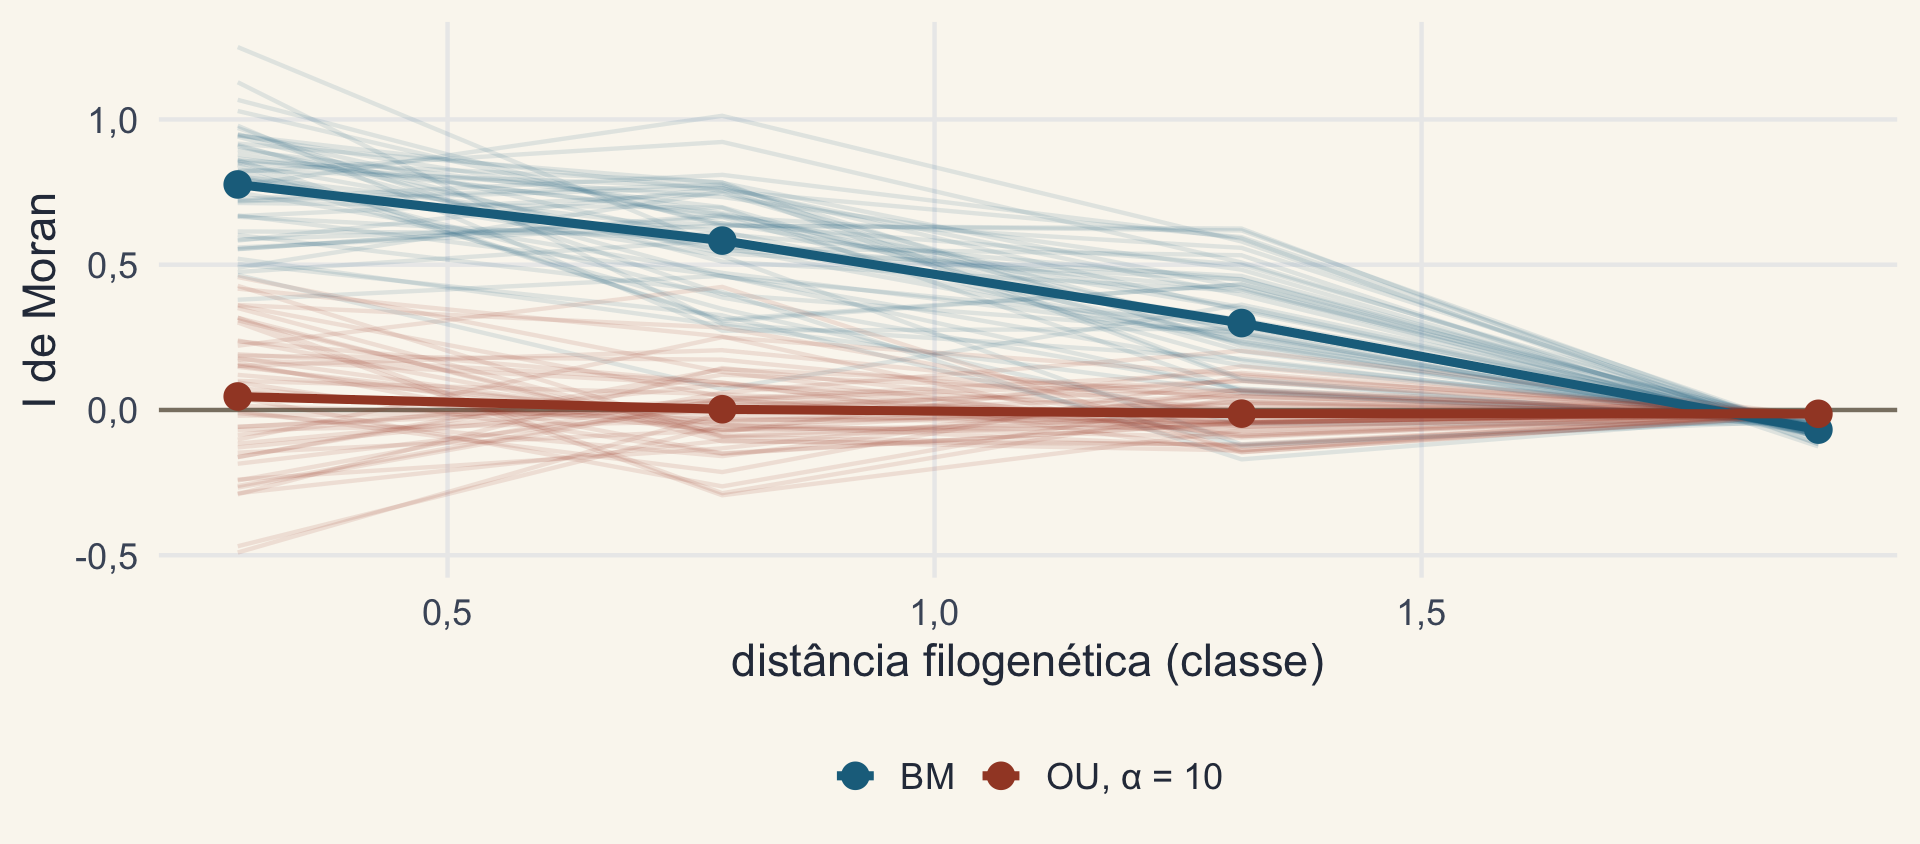
Inspirado em Diniz-Filho (2001), Evolution 55: 1104–1109.
Correlograma dos Anolis: as classes de distância
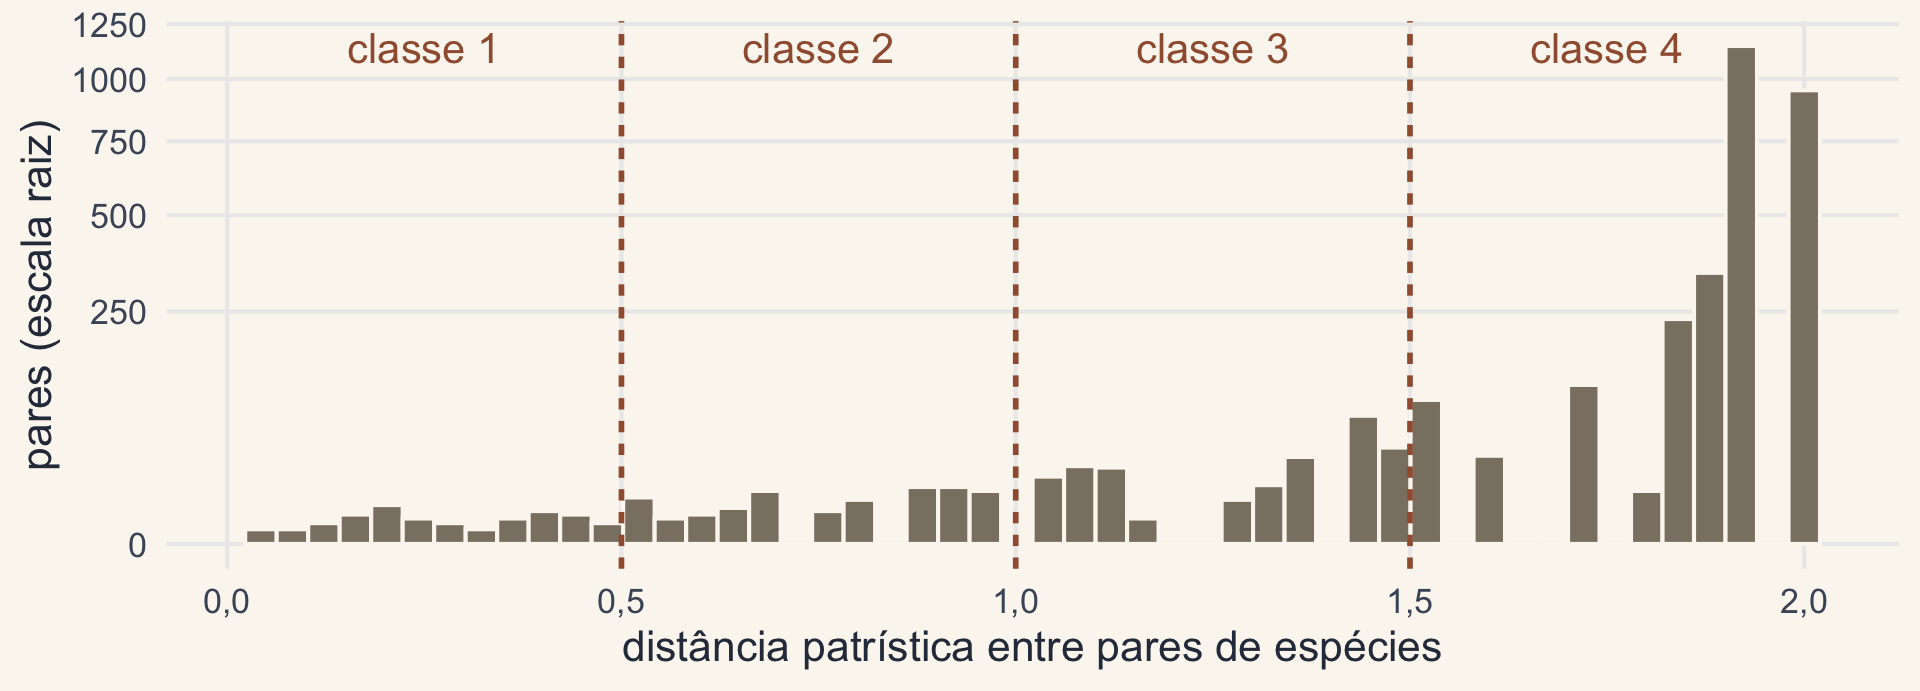
A maioria dos pares só se encontra na raiz (distância perto de 2). As classes de distância permitem avaliar estruturas mais complexas na matriz W do que um único I global.
Correlograma dos Anolis: o I por classe
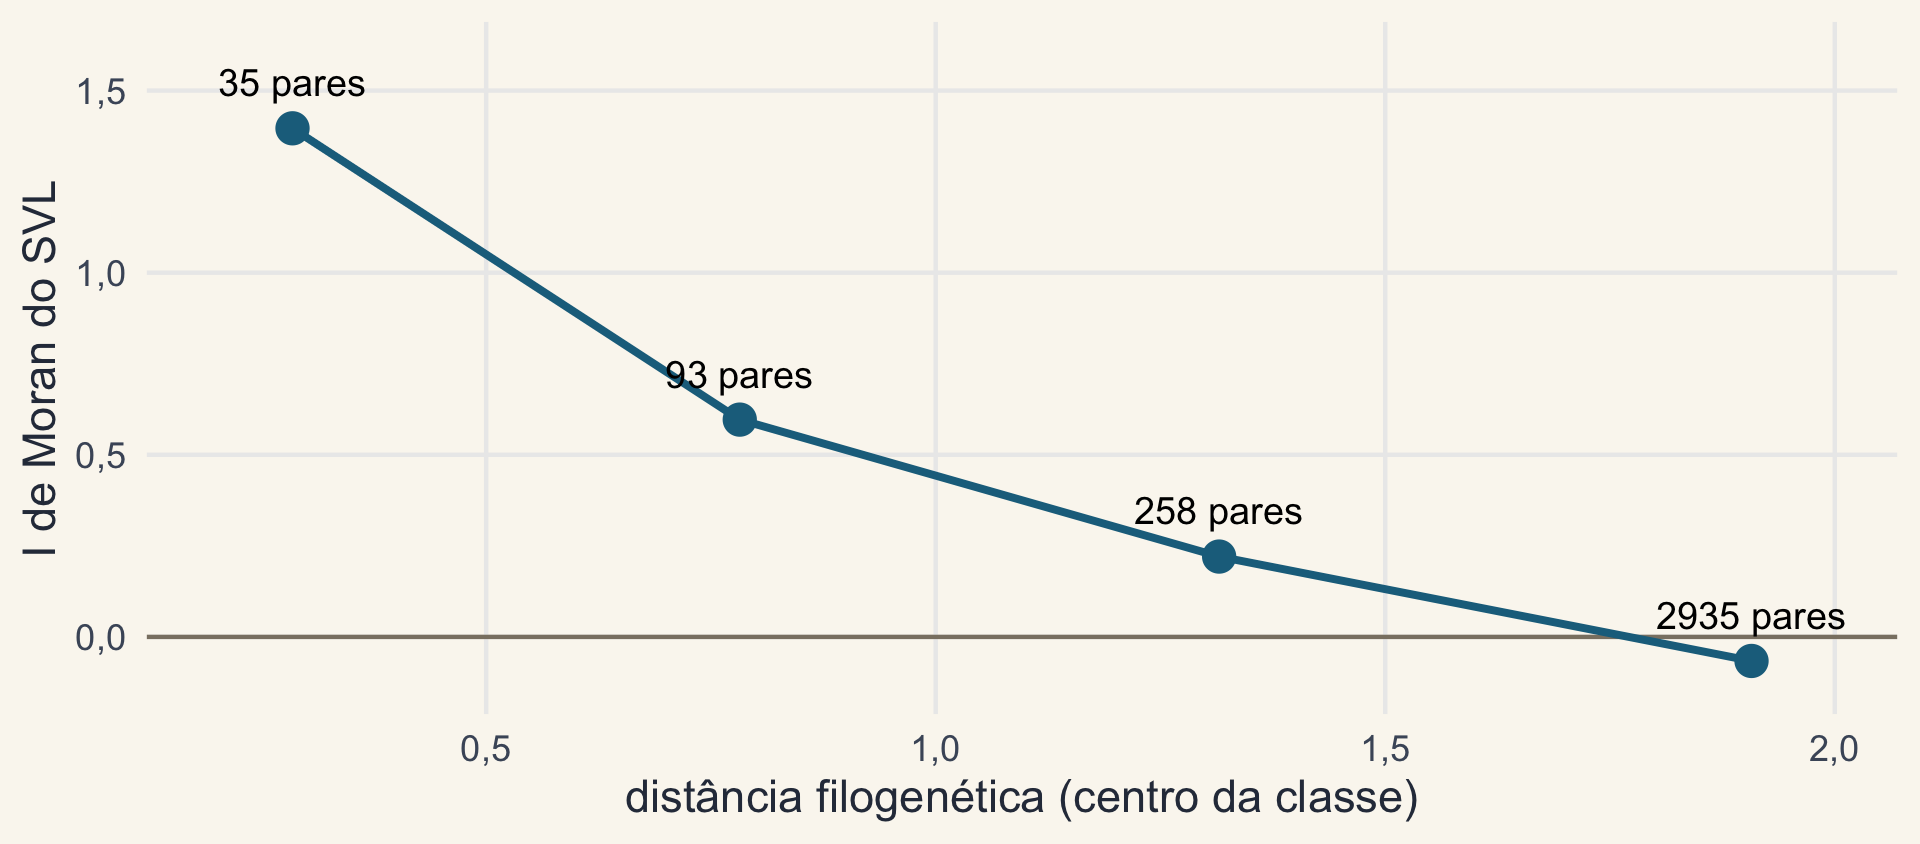
Com poucos pares na classe, o I pode passar de 1.
C de Abouheif: o exemplo do artigo
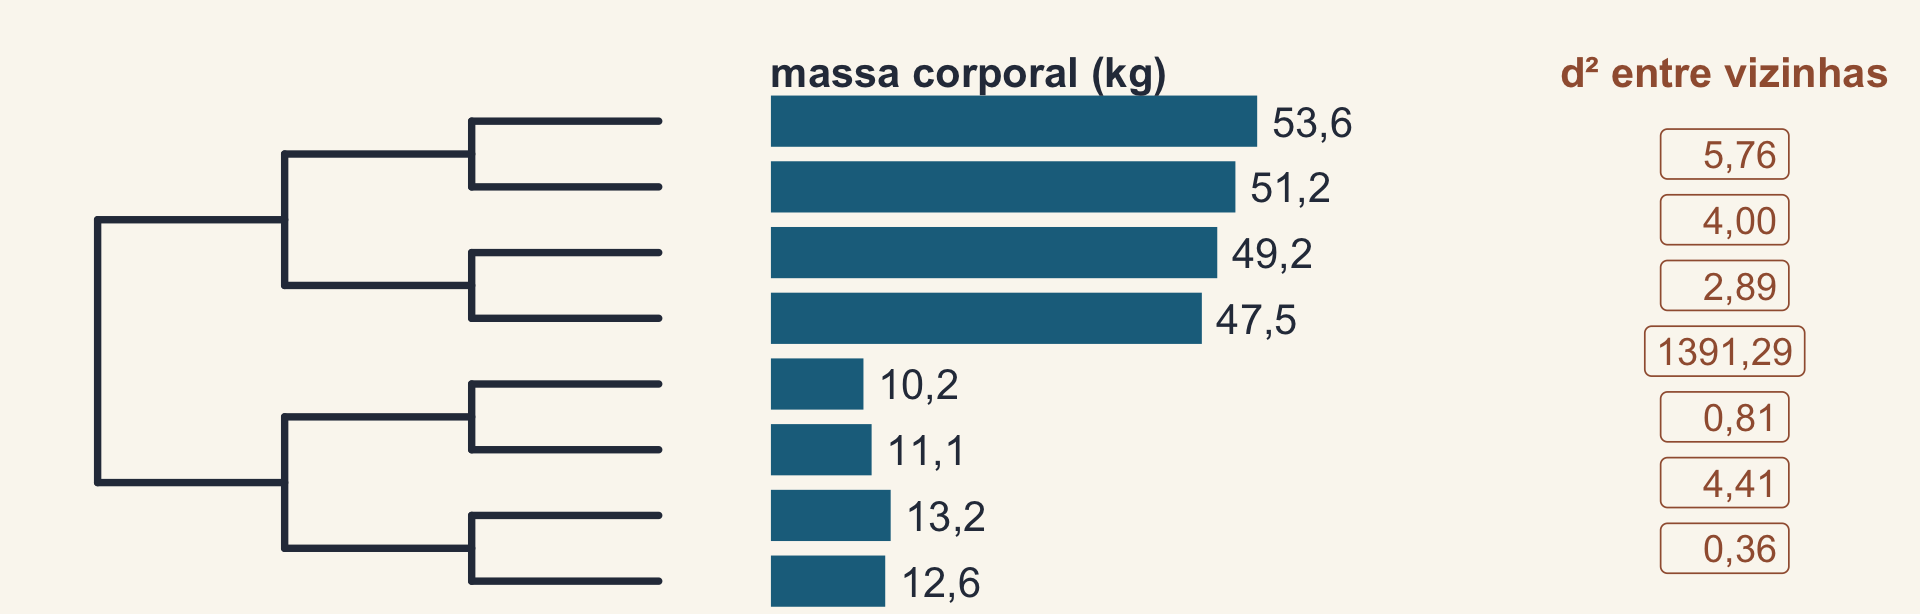
Percorra as pontas na ordem da árvore e some os quadrados das diferenças entre vizinhas (Σd²). Se espécies próximas são parecidas, Σd² é pequeno diante da variação total, e o C é alto.
Exemplo de Abouheif (1999), Evol. Ecol. Res. 1: 895–909, recalculado. O C usa só a topologia (a ordem das pontas), não os comprimentos de ramo.
O teste de Mantel
Nathan Mantel (1919–2002), domínio público, via Wikipedia.
- Autocorrelação multidimensional: correlação entre duas matrizes de distância (a filogenética e uma de dissimilaridade fenotípica: euclidiana, Jaccard, distância de Nei, FST de Rogers etc.)
- Significância por permutação
- Pode usar vários atributos ao mesmo tempo (uma distância multivariada)
- Mas, em análises comparativas, tem baixo poder e pode enganar: com um atributo, prefira as medidas baseadas em modelo
Mantel (1967), Cancer Res. 27. Cautela: Harmon & Glor (2010), Evolution.
Mantel na árvore-guia
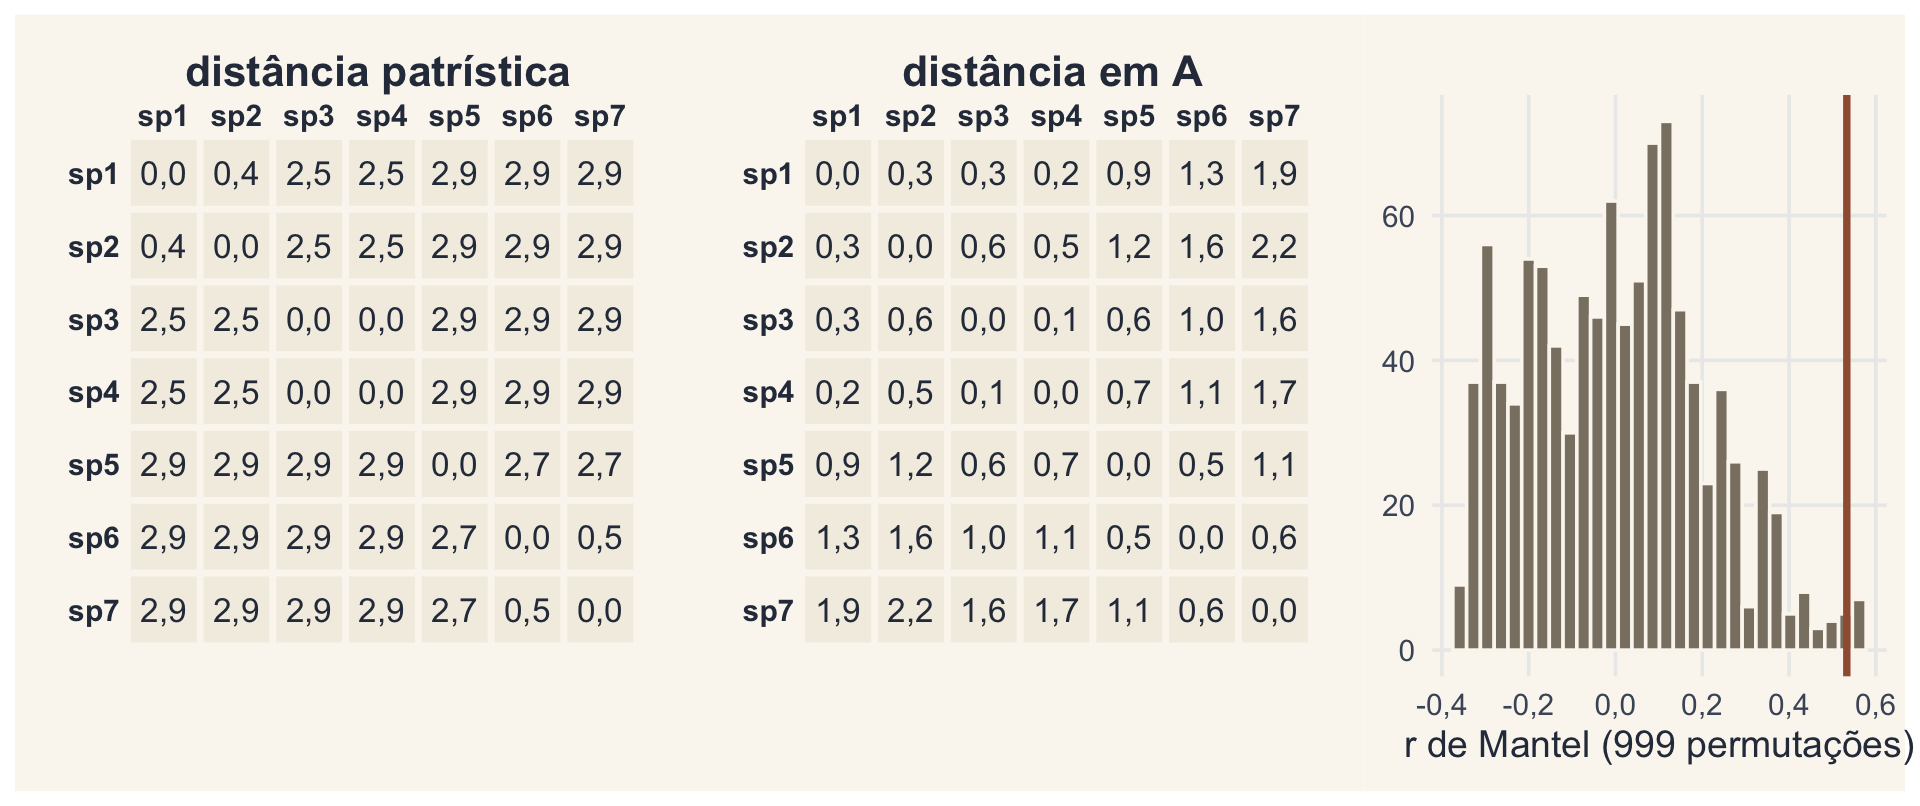
r = 0,53; p = 0,013 (999 permutações).
Ideia de um slide de J. A. F. Diniz-Filho.
Distograma
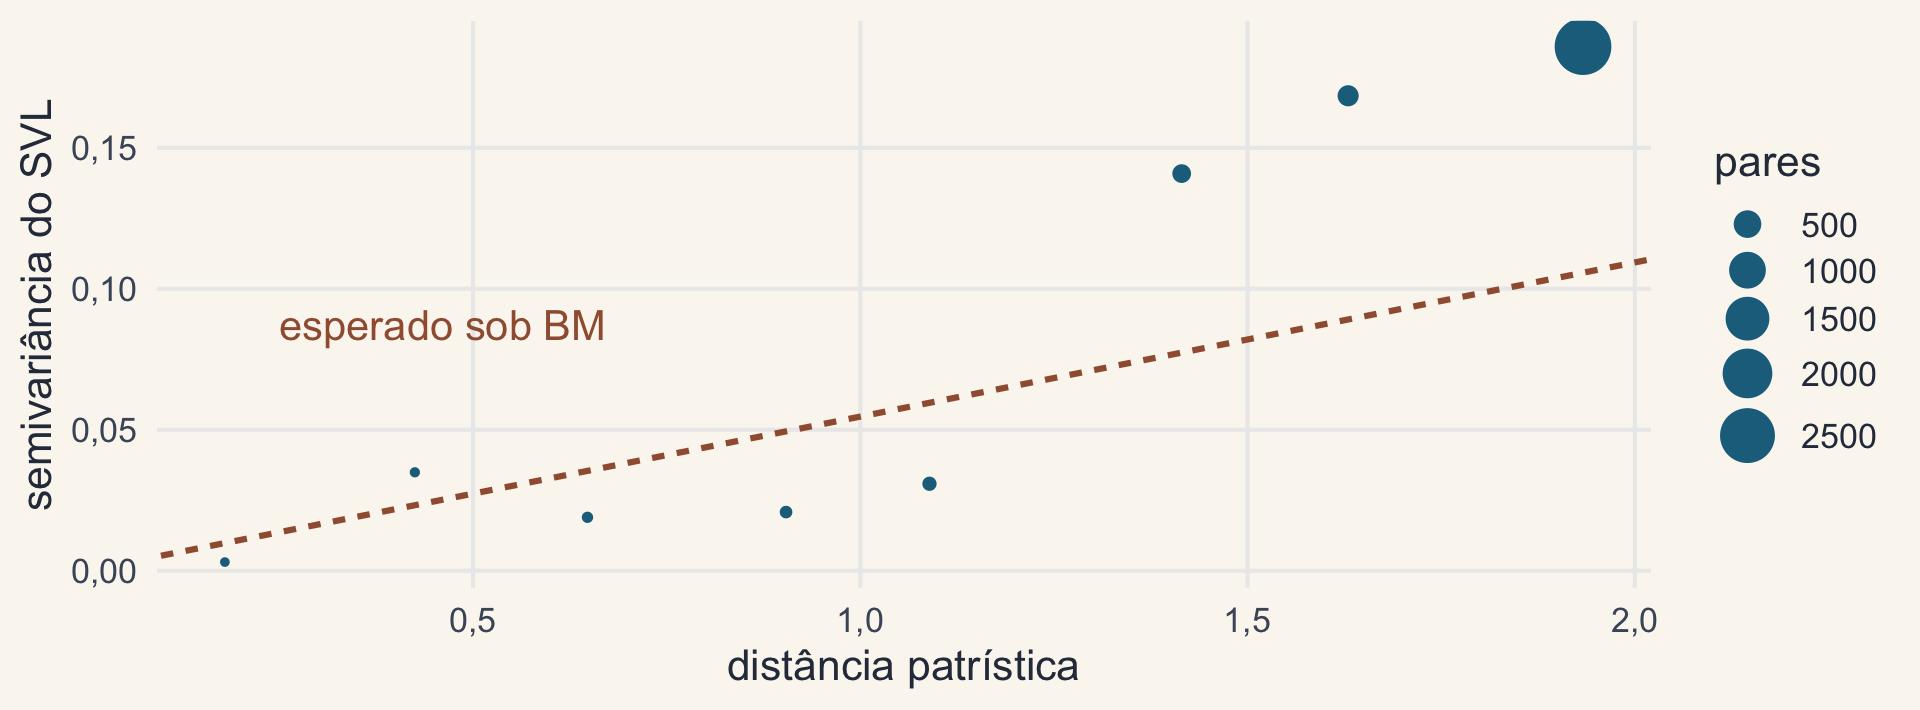
Com erro de medida (variação intraespecífica), o Mantel tem mais poder que o K, e o distograma mostra desvios do BM.
Hardy & Pavoine (2012), Evolution 66: 2614–2621.
Métodos de partição
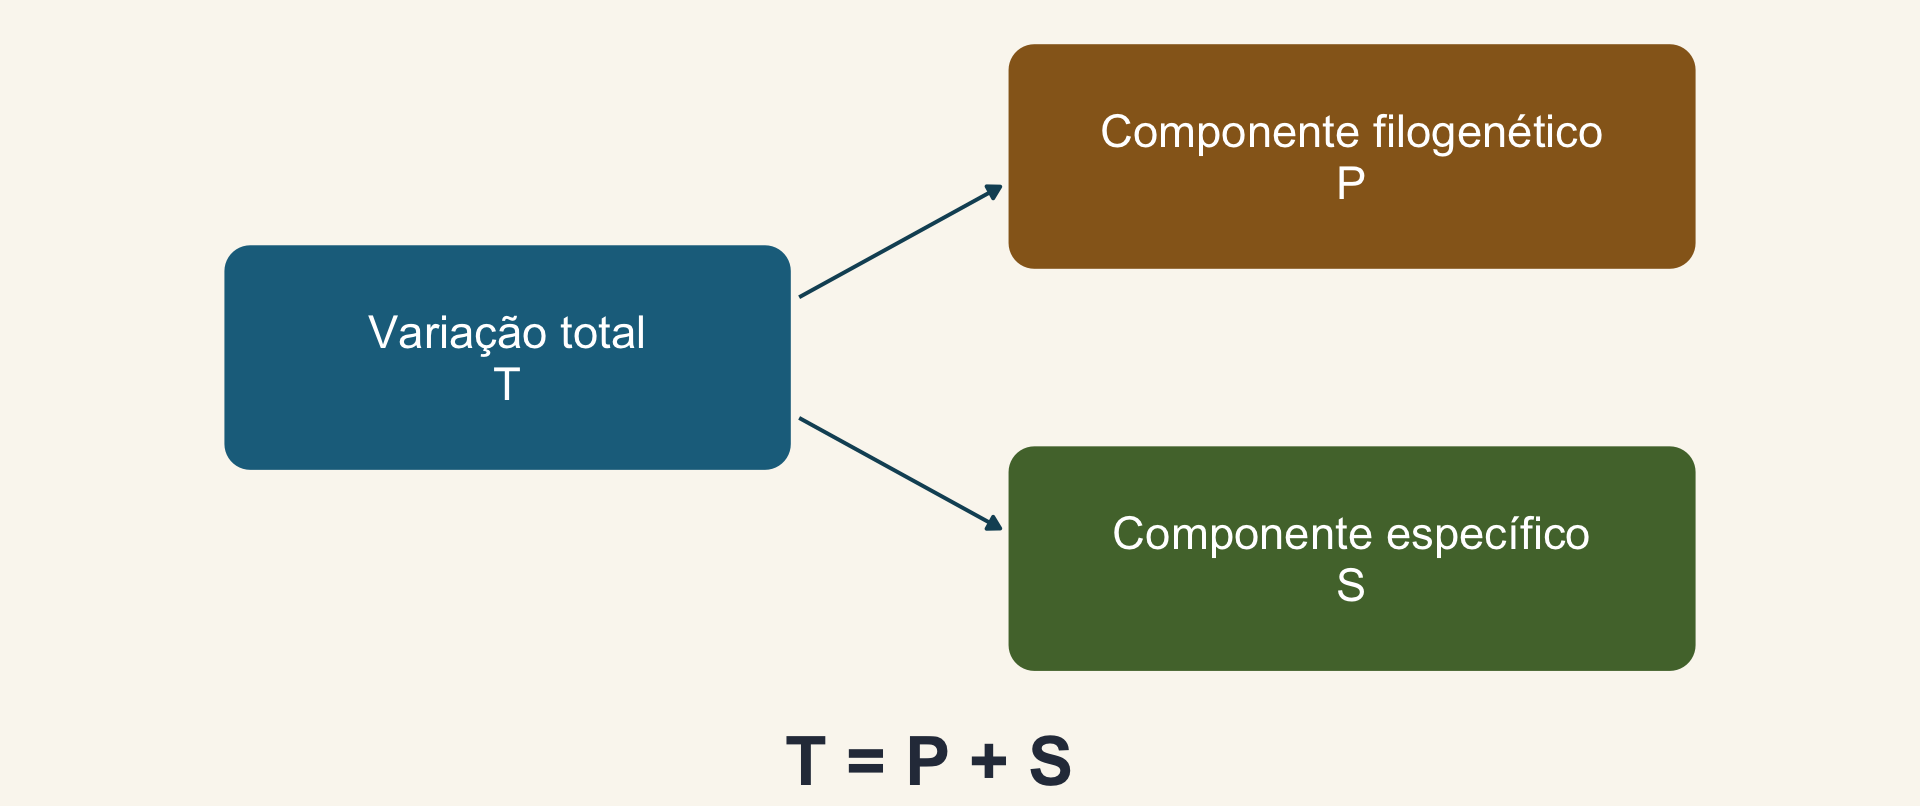
Ideia de um slide de J. A. F. Diniz-Filho. PVR: Diniz-Filho, de Sant’Ana & Bini (1998), Evolution 52: 1247–1262.
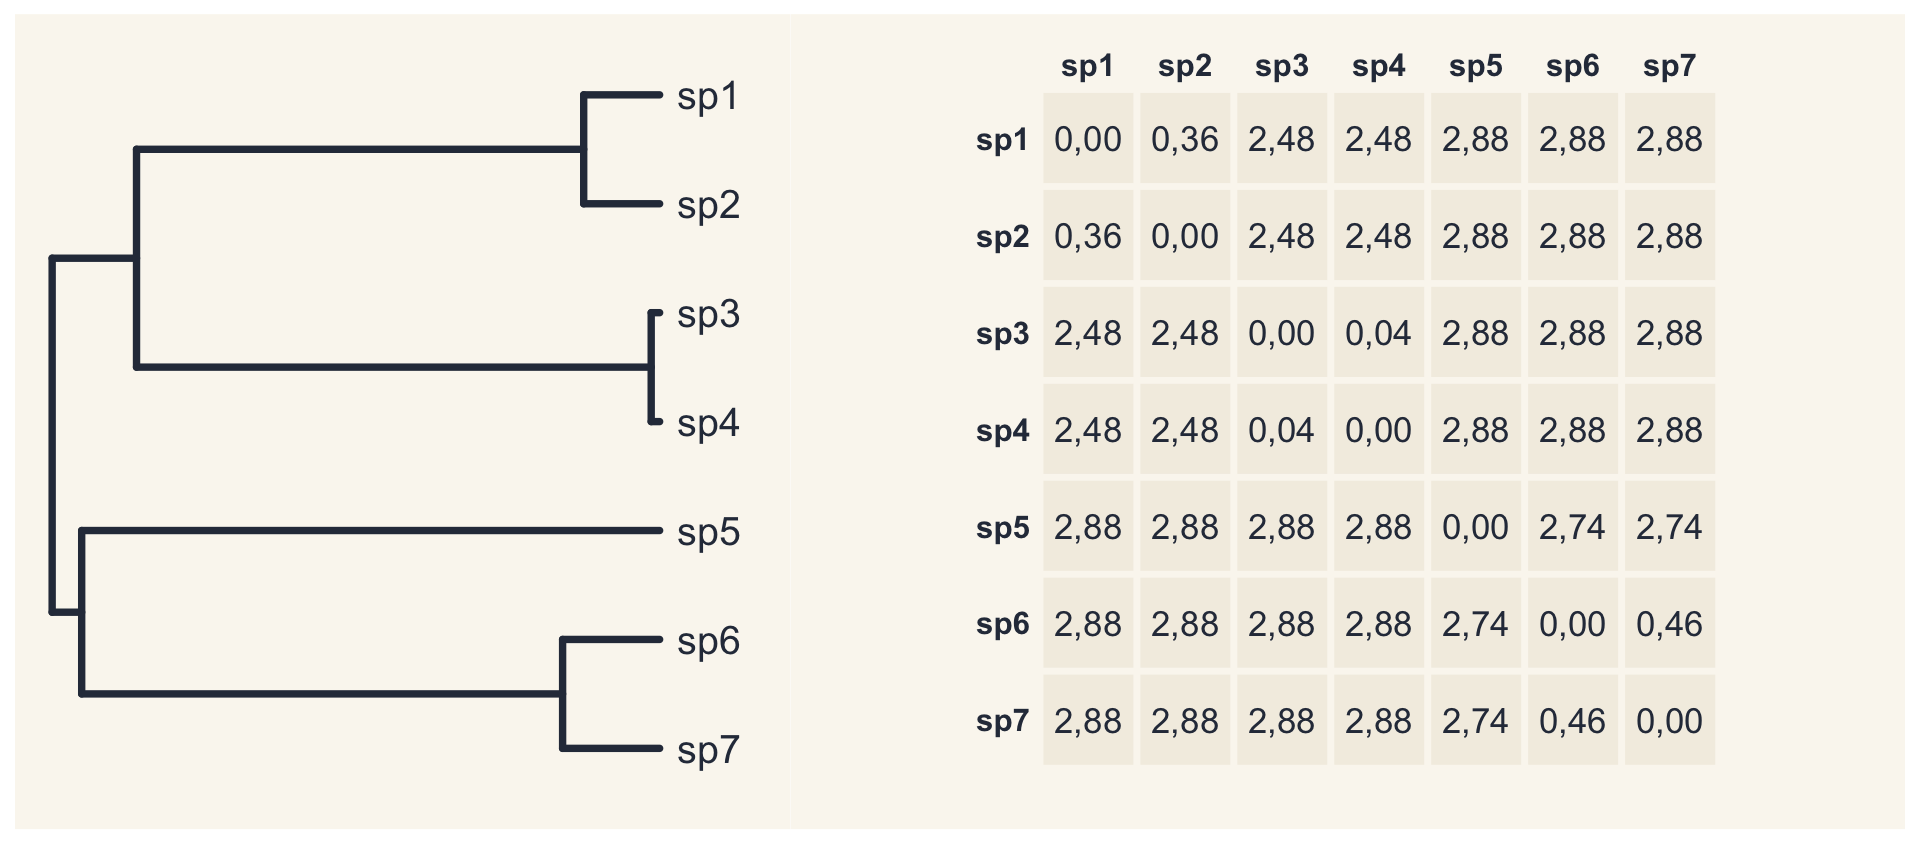
PVR, passo 1: distâncias filogenéticas
PVR, passo 2: dupla centralização
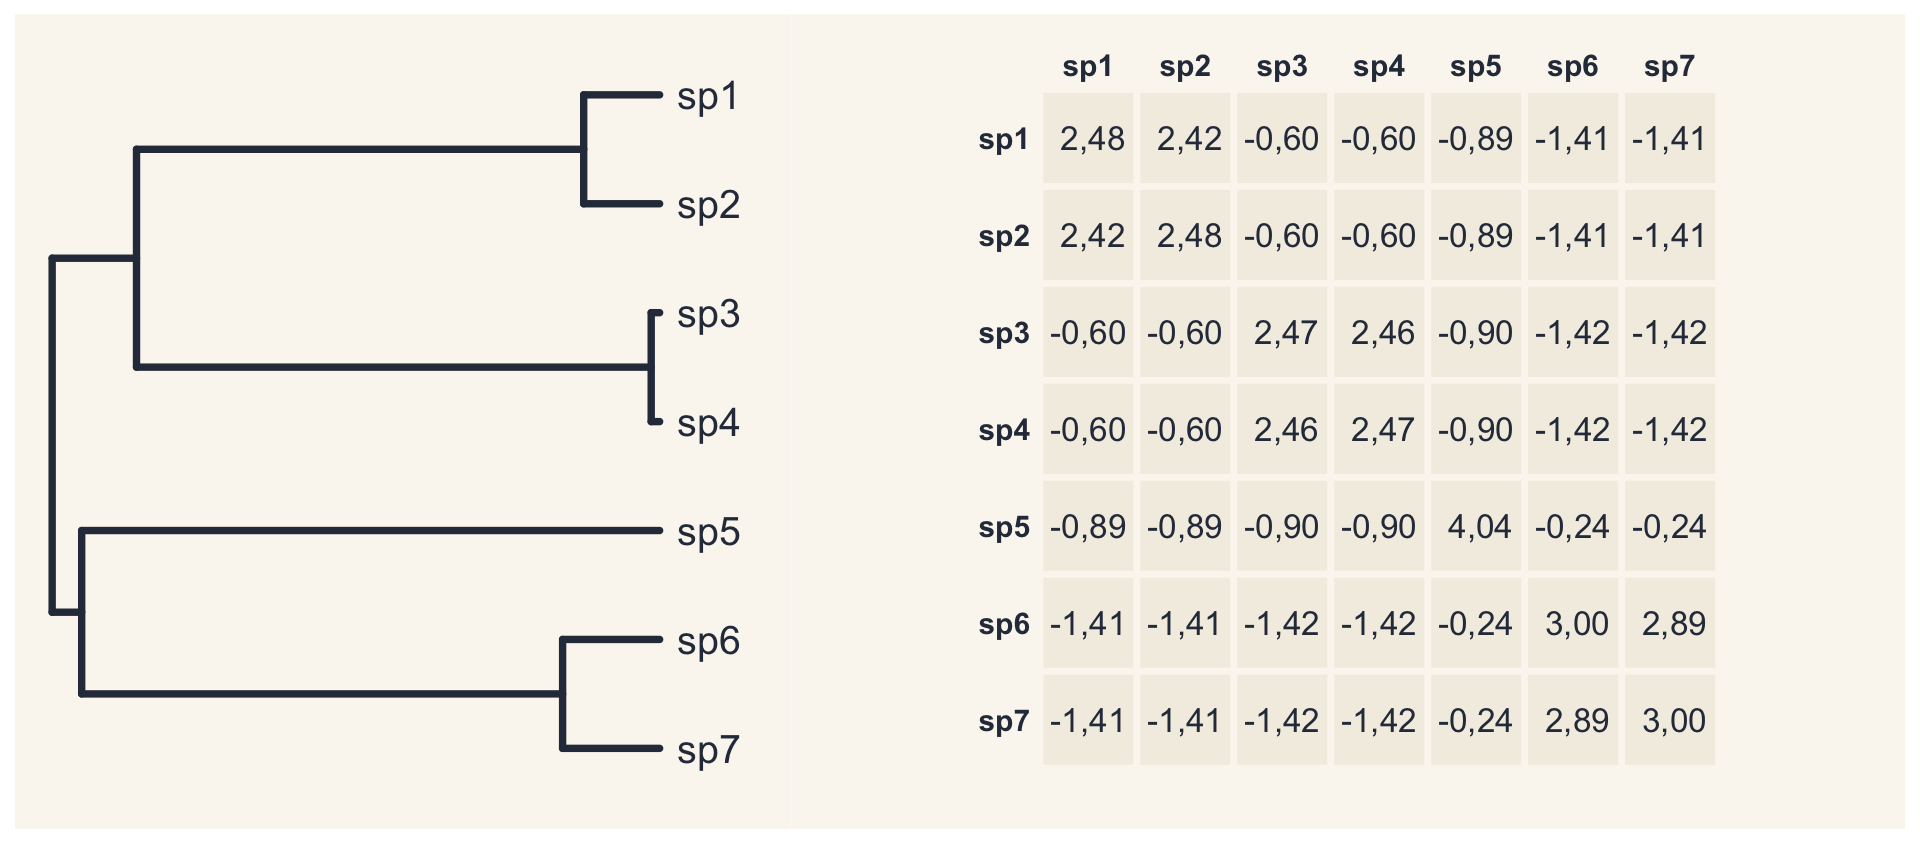
\(\mathbf{G} = -\tfrac{1}{2}\,\mathbf{J}\,\mathbf{D}^{2}\,\mathbf{J}\), com \(\mathbf{J} = \mathbf{I} - \tfrac{1}{n}\mathbf{1}\mathbf{1}'\) (como numa PCoA).
PVR, passo 3: os autovetores
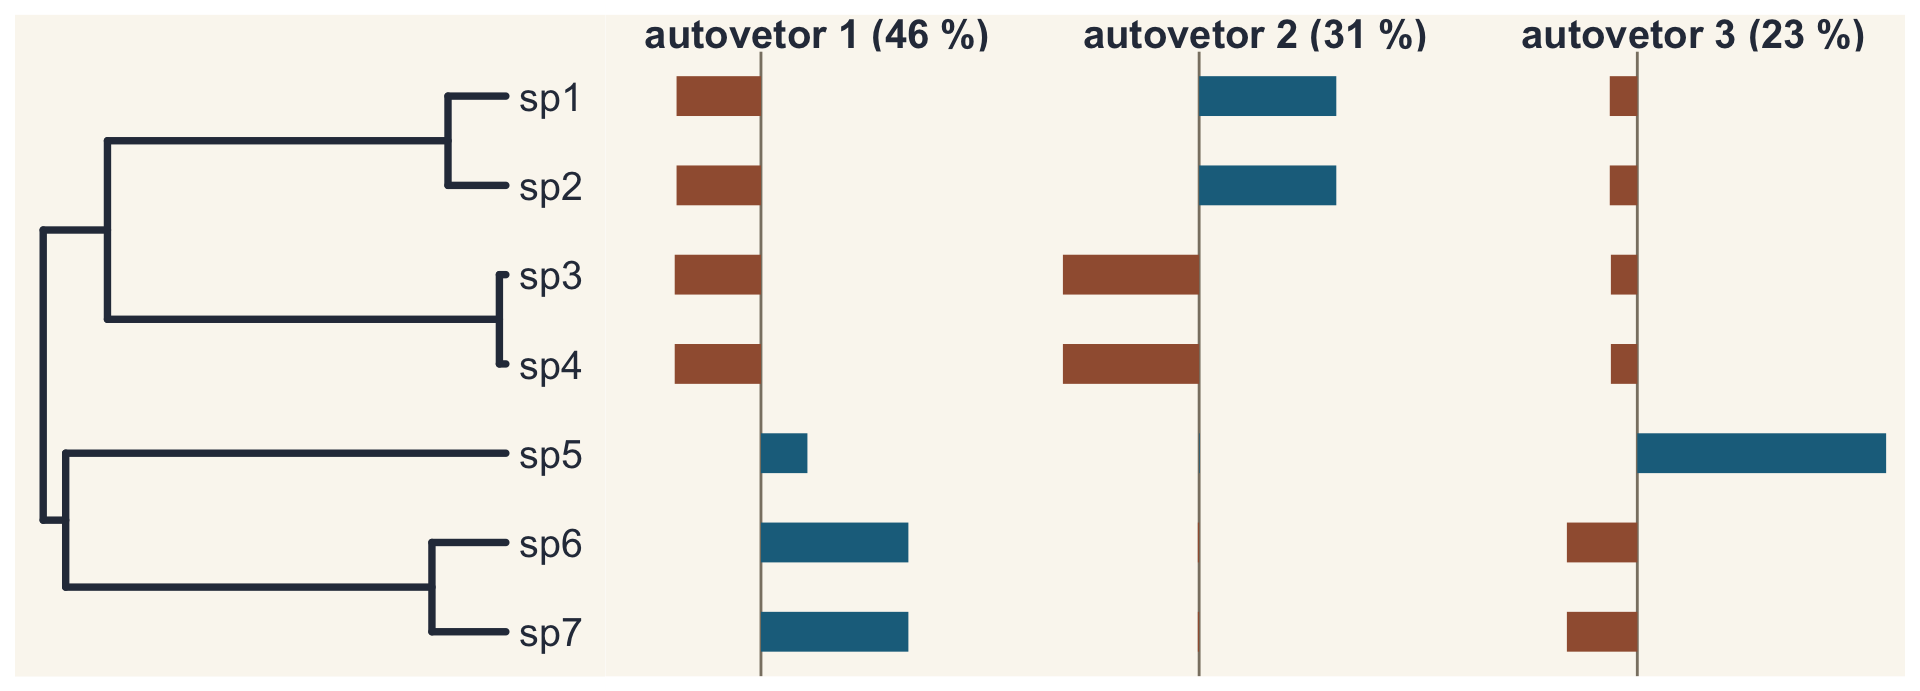
Cada autovetor é um “corte” linearmente independente da filogenia: permite avaliar o efeito da filogenia em escalas diferentes, e o autovalor diz quanto da estrutura da árvore cada corte representa.
Ideia de um slide de J. A. F. Diniz-Filho.
PVR, passo 4: regressão e partição
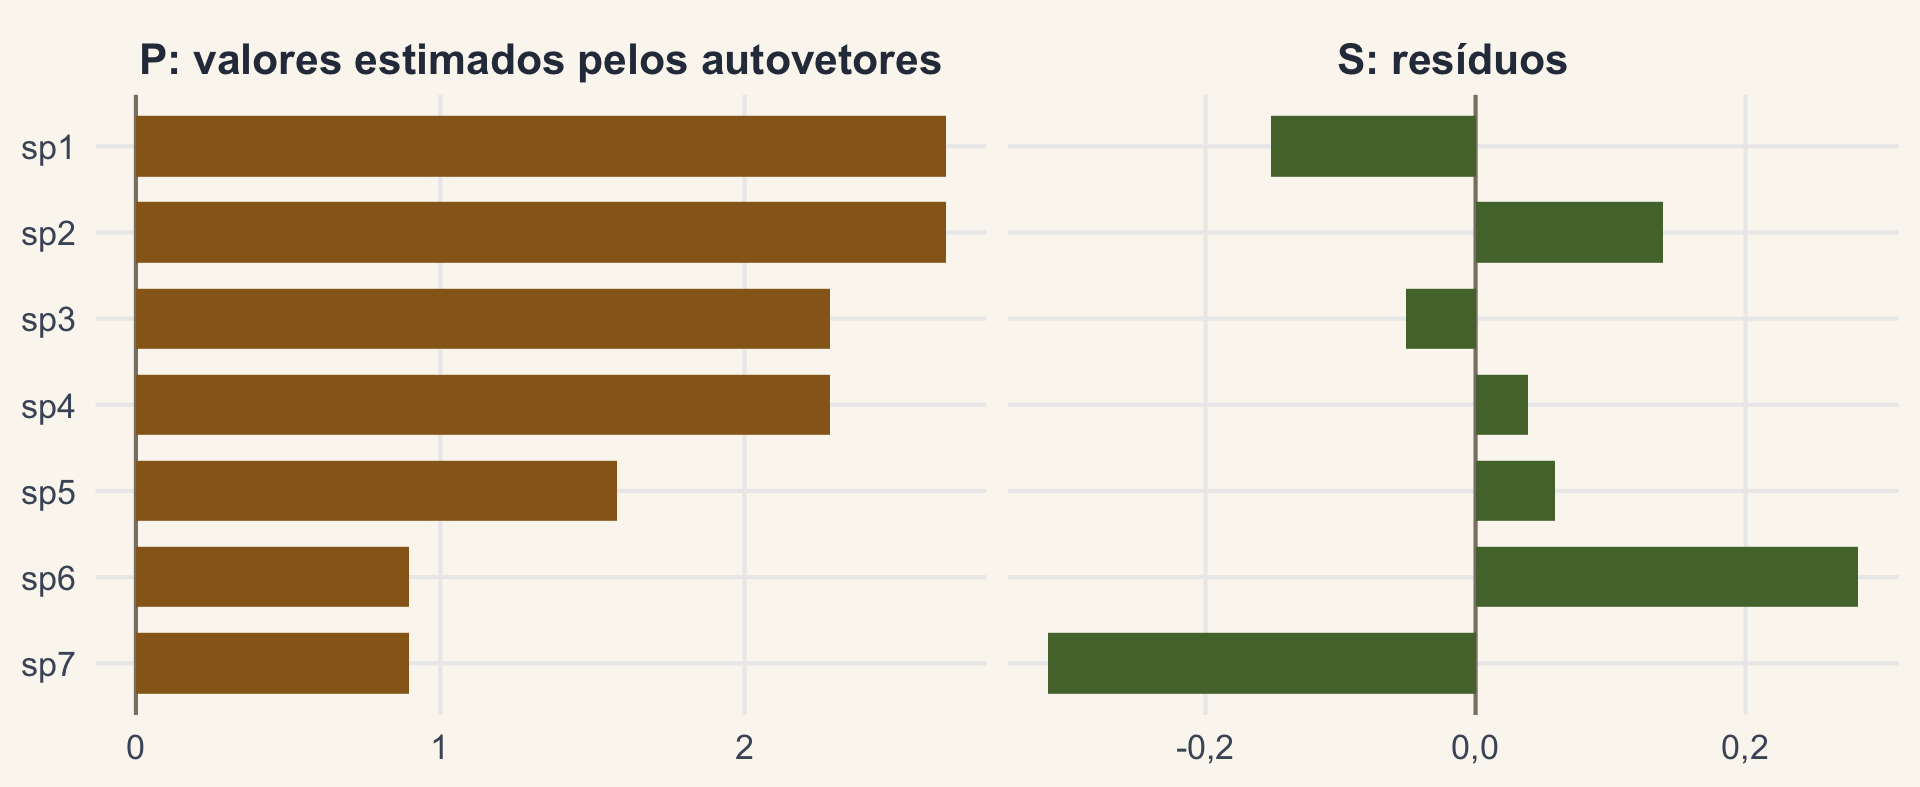
Regressão de A nos dois primeiros autovetores: R² = 0,94. P é a parte “herdada”; S, a parte própria de cada espécie.
Autovetores e a forma da árvore
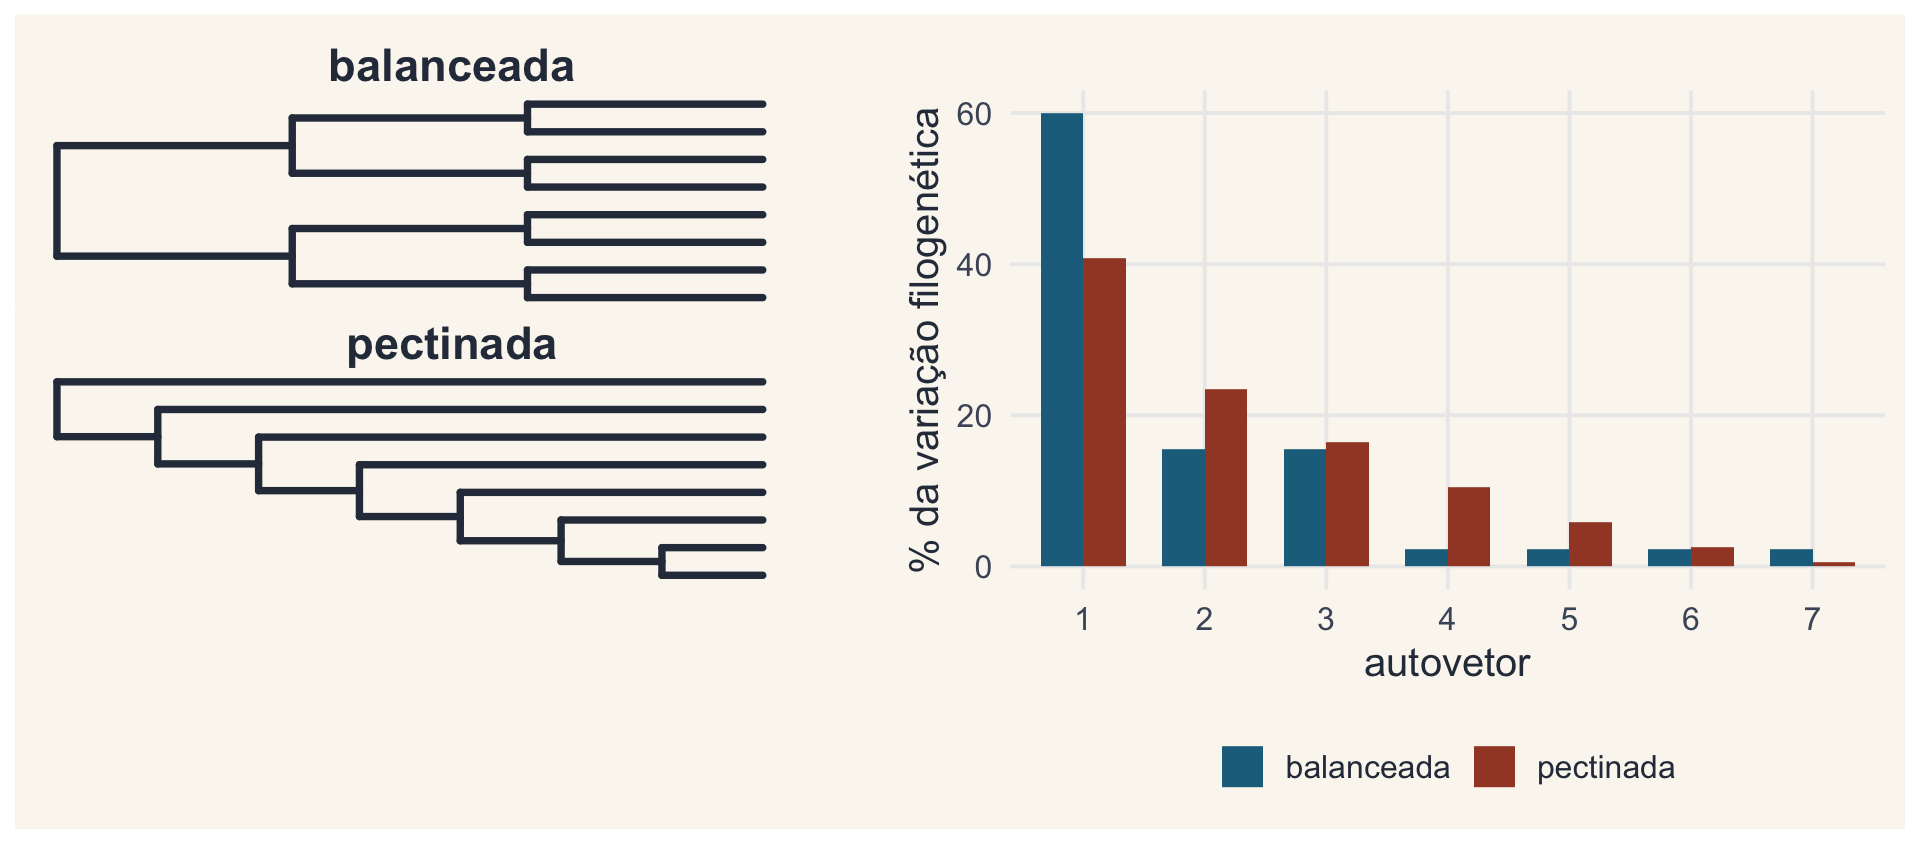
Ideia de Martins & Housworth (2002), Syst. Biol. 51: 873–880.
PVR sequencial e a curva PSR
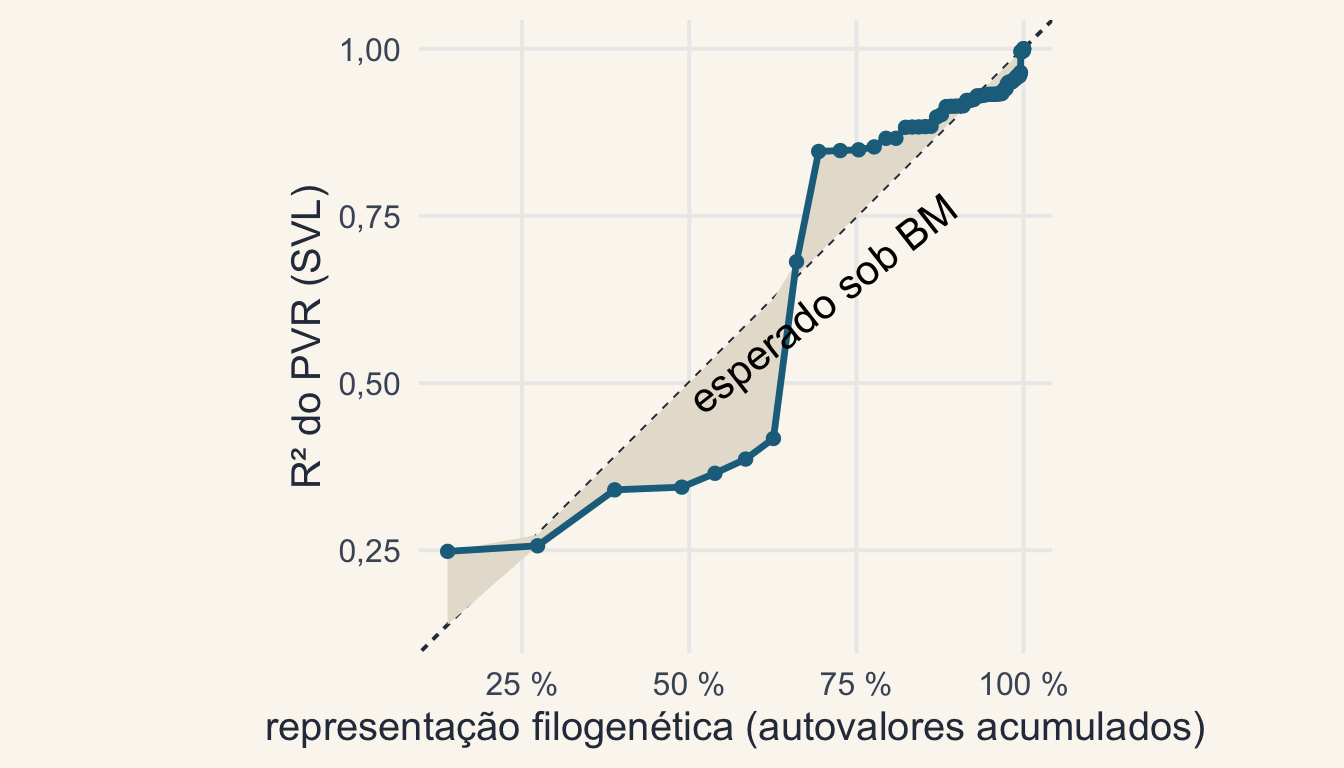
Área acima da diagonal: o atributo evolui mais rápido que o BM; abaixo, mais devagar.
Diniz-Filho, Rangel, Santos & Bini (2012), Evolution 66: 1079–1090.
Filogenia e ambiente: partição da variação
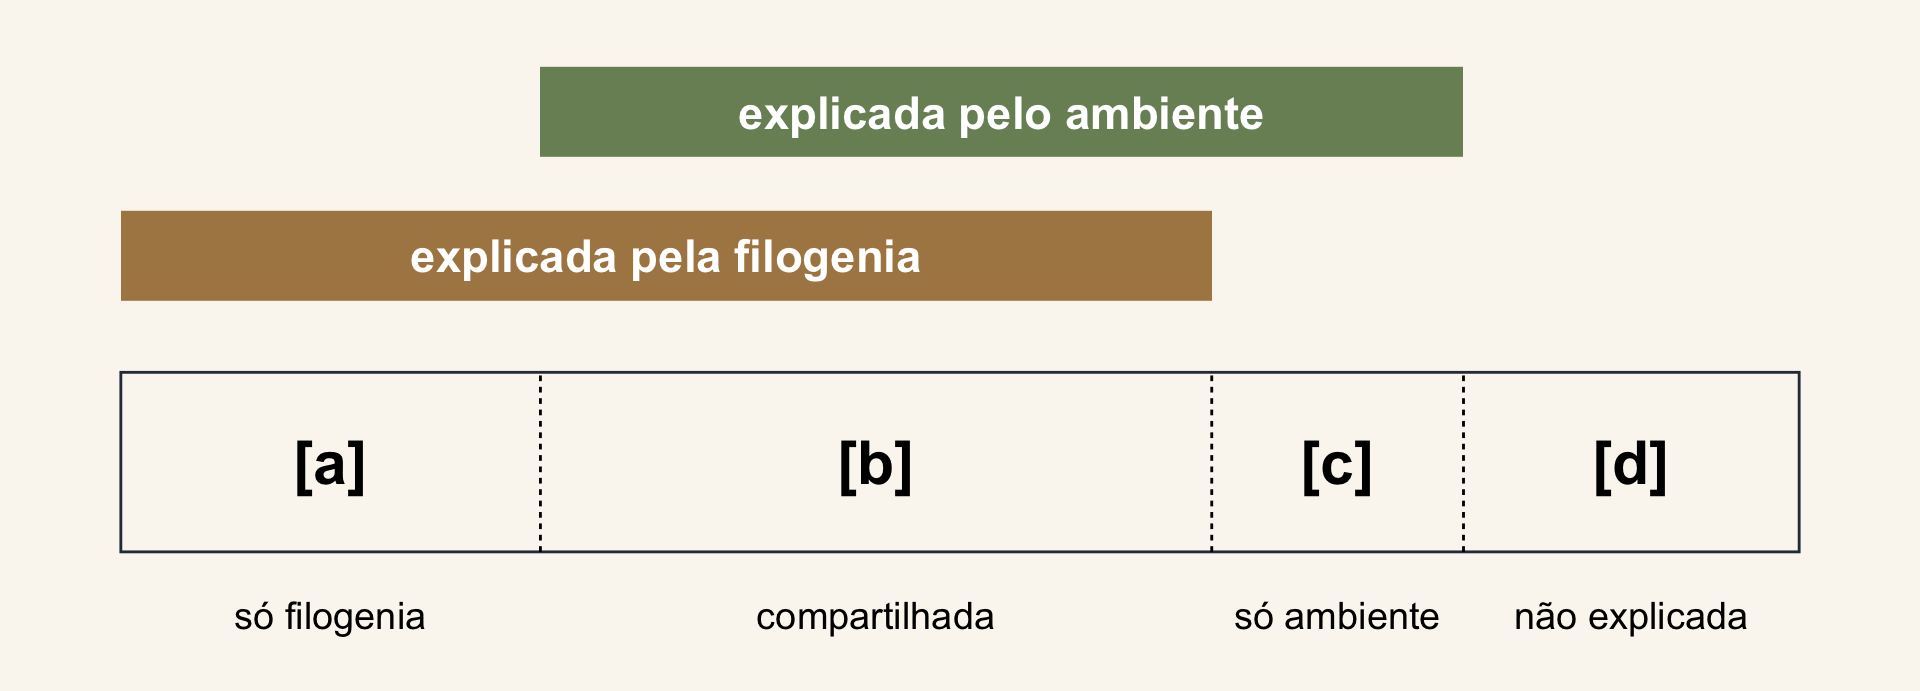
Autovetores filogenéticos e variáveis ambientais como preditores.
Desdevises, Legendre, Azouzi & Morand (2003), Evolution 57: 2647–2652.
Os cantos dos anuros da Bocaina
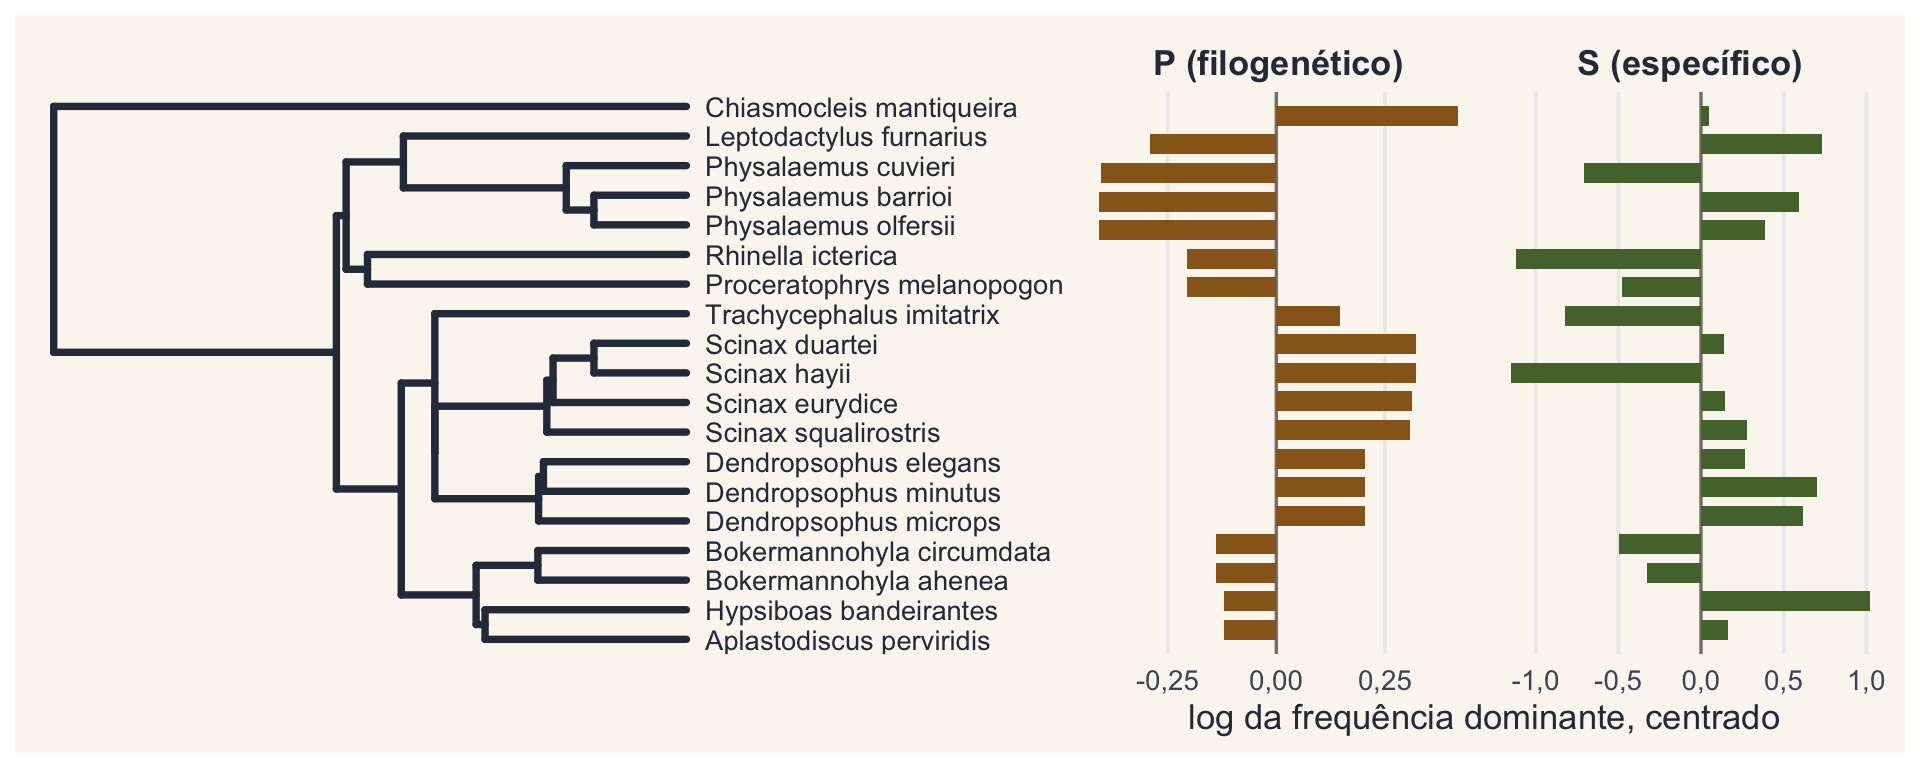
Log da frequência dominante, 3 autovetores: R² = 0,16.
Dados de Garey et al. (2018), Biol. J. Linn. Soc. 125: 292–301. No artigo, uma PCA resumiu os parâmetros espectrais e os temporais em dois eixos.
Decomposição da entropia quadrática
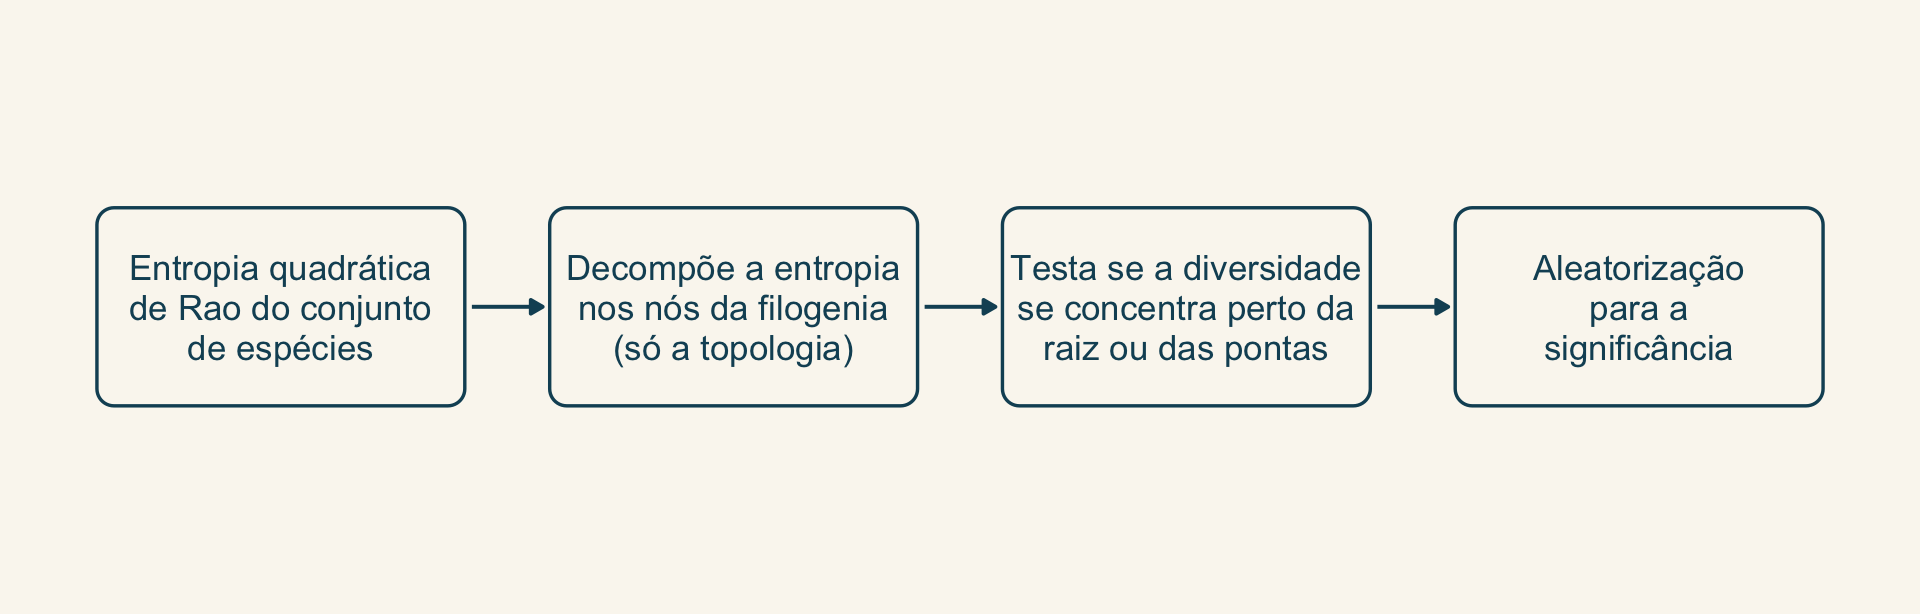
Serve para atributos binários e com vários estados.
Pavoine, Baguette & Bonsall (2010), Ecol. Monogr.
Raiz ou pontas? As três estatísticas
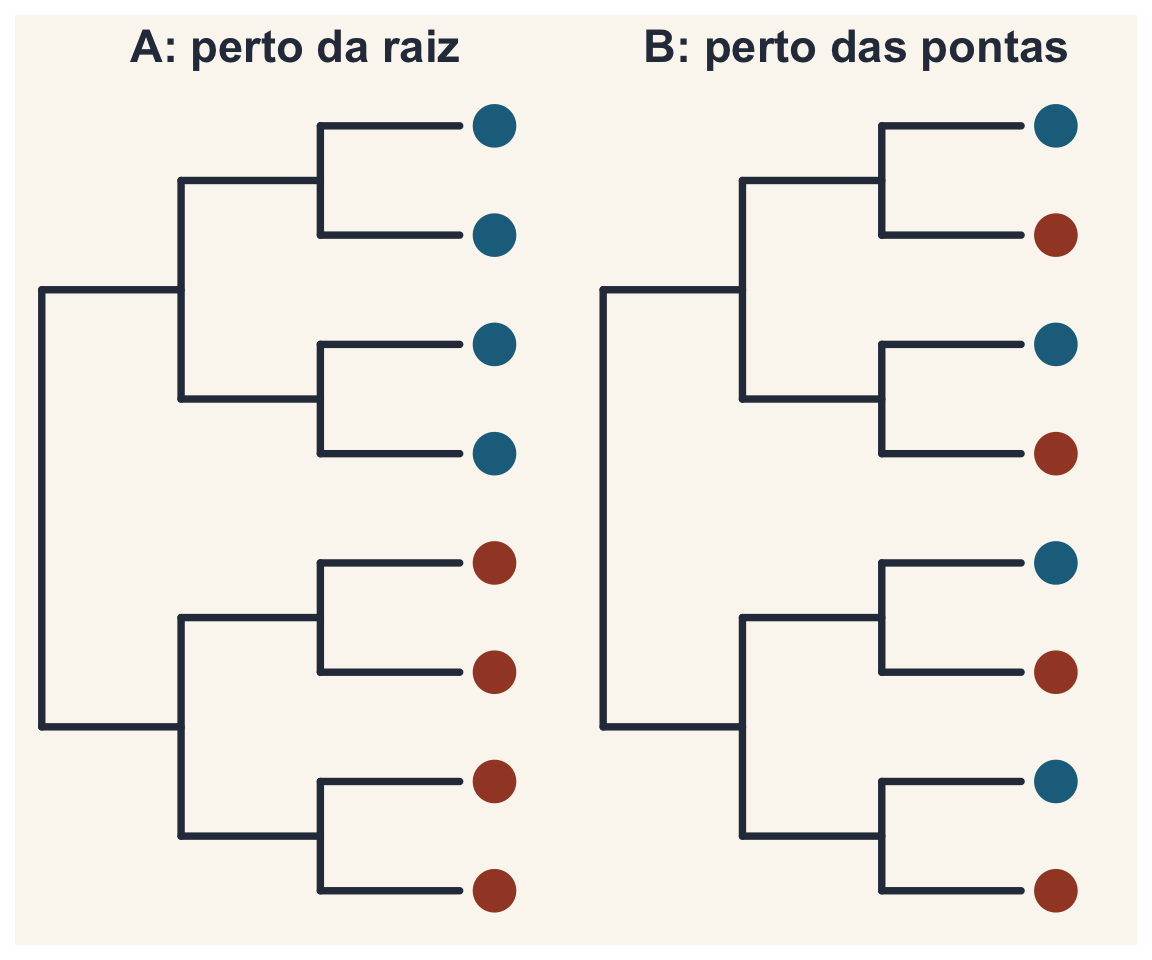
A contribuição de cada nó para a diversidade é testada de três formas, por permutação das pontas:
- um único nó concentra a diversidade?
- poucos nós a concentram?
- ela está enviesada para a raiz ou para as pontas?
Sinal filogenético: diversidade enviesada para a raiz (A).
Pavoine, Baguette & Bonsall (2010), Ecol. Monogr. 80: 485–507.
Um exemplo: a coloração interna dos anuros
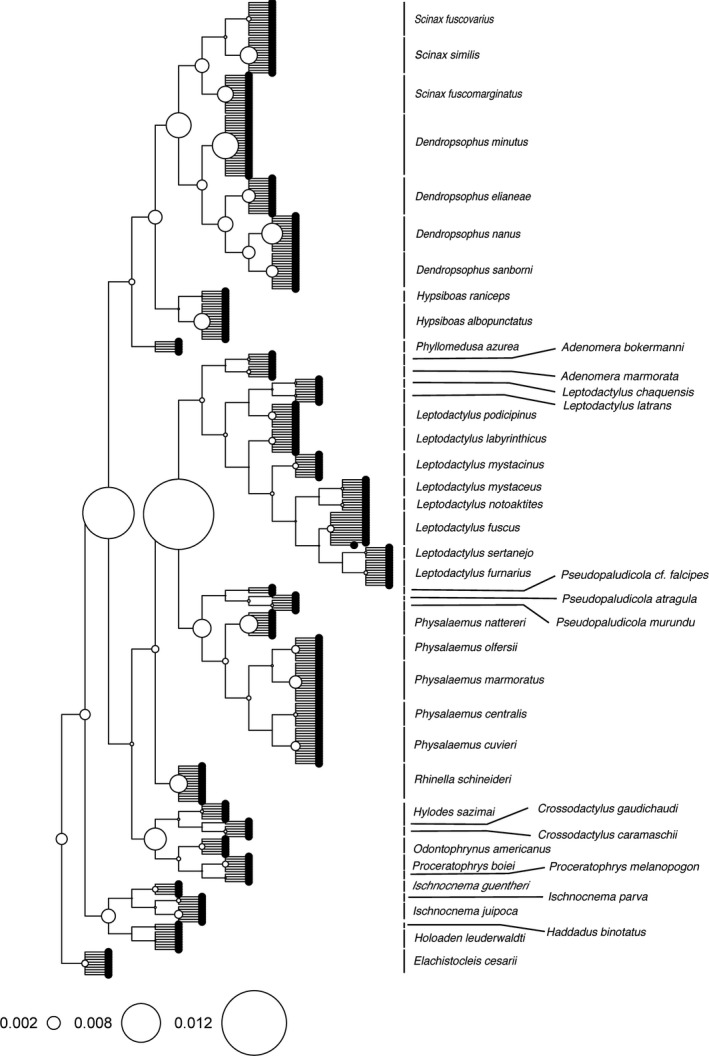
- Coloração de órgãos internos (categorias ordinais) em 43 espécies
- Os indivíduos entram como politomias: o método usa só a topologia, e assim incorpora a variação intraespecífica
- Círculos: a contribuição de cada nó para a entropia quadrática, não a estimativa do estado ancestral naquele nó
- Com todos os órgãos juntos, a diversidade está enviesada para a raiz: sinal filogenético
- O nó com mais diversidade é o de Leptodactylidae
Fig. 3 de Franco-Belussi, Provete & De Oliveira (2017), Ecol. Evol. 7: 9222–9233, CC BY 4.0. Ver também Provete et al. (2012), Zool. Scr. 41: 547–556.
D de Fritz & Purvis
\[D = \frac{\sum d_{\text{obs}} - \overline{\sum d_{\text{BM}}}}{\overline{\sum d_{\text{aleatório}}} - \overline{\sum d_{\text{BM}}}}\]
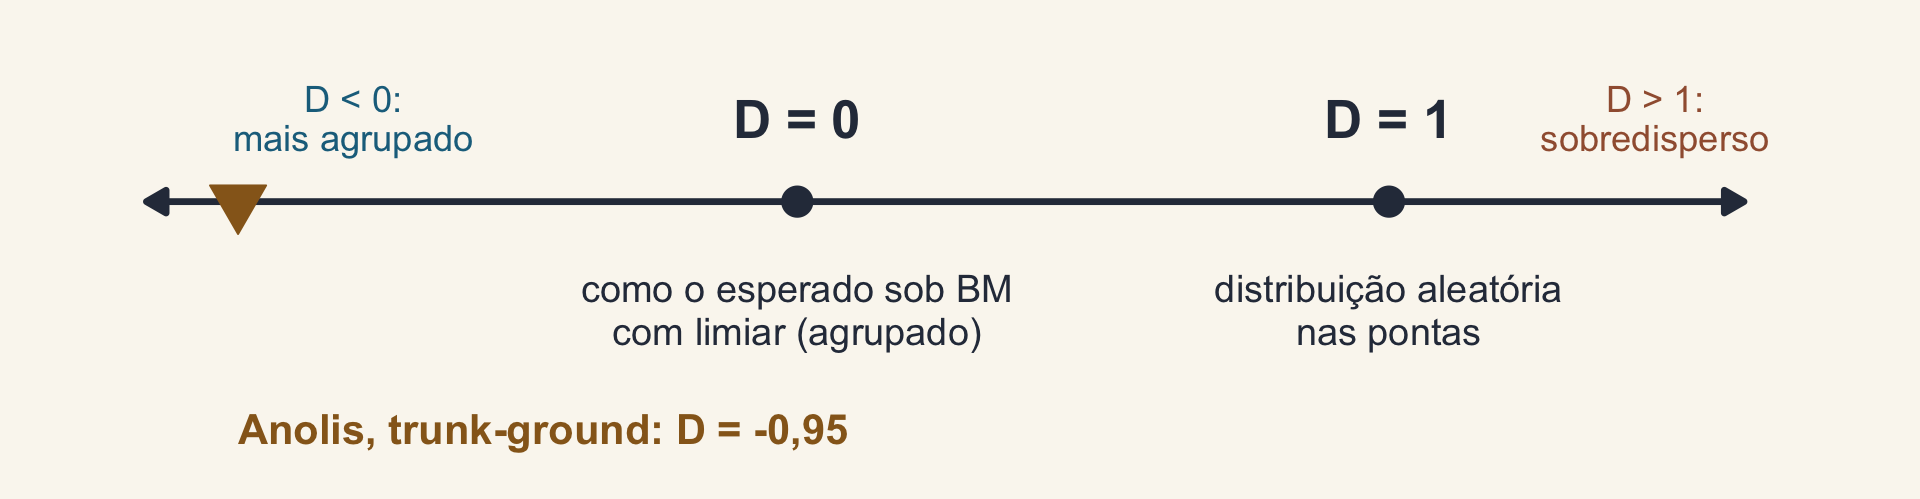
Σd: soma das diferenças entre clados irmãos. Anolis trunk-ground (25 de 82 espécies): D = -0,95.
Fritz & Purvis (2010), Conserv. Biol. 24: 1042–1051. Calculado com caper::phylo.d.
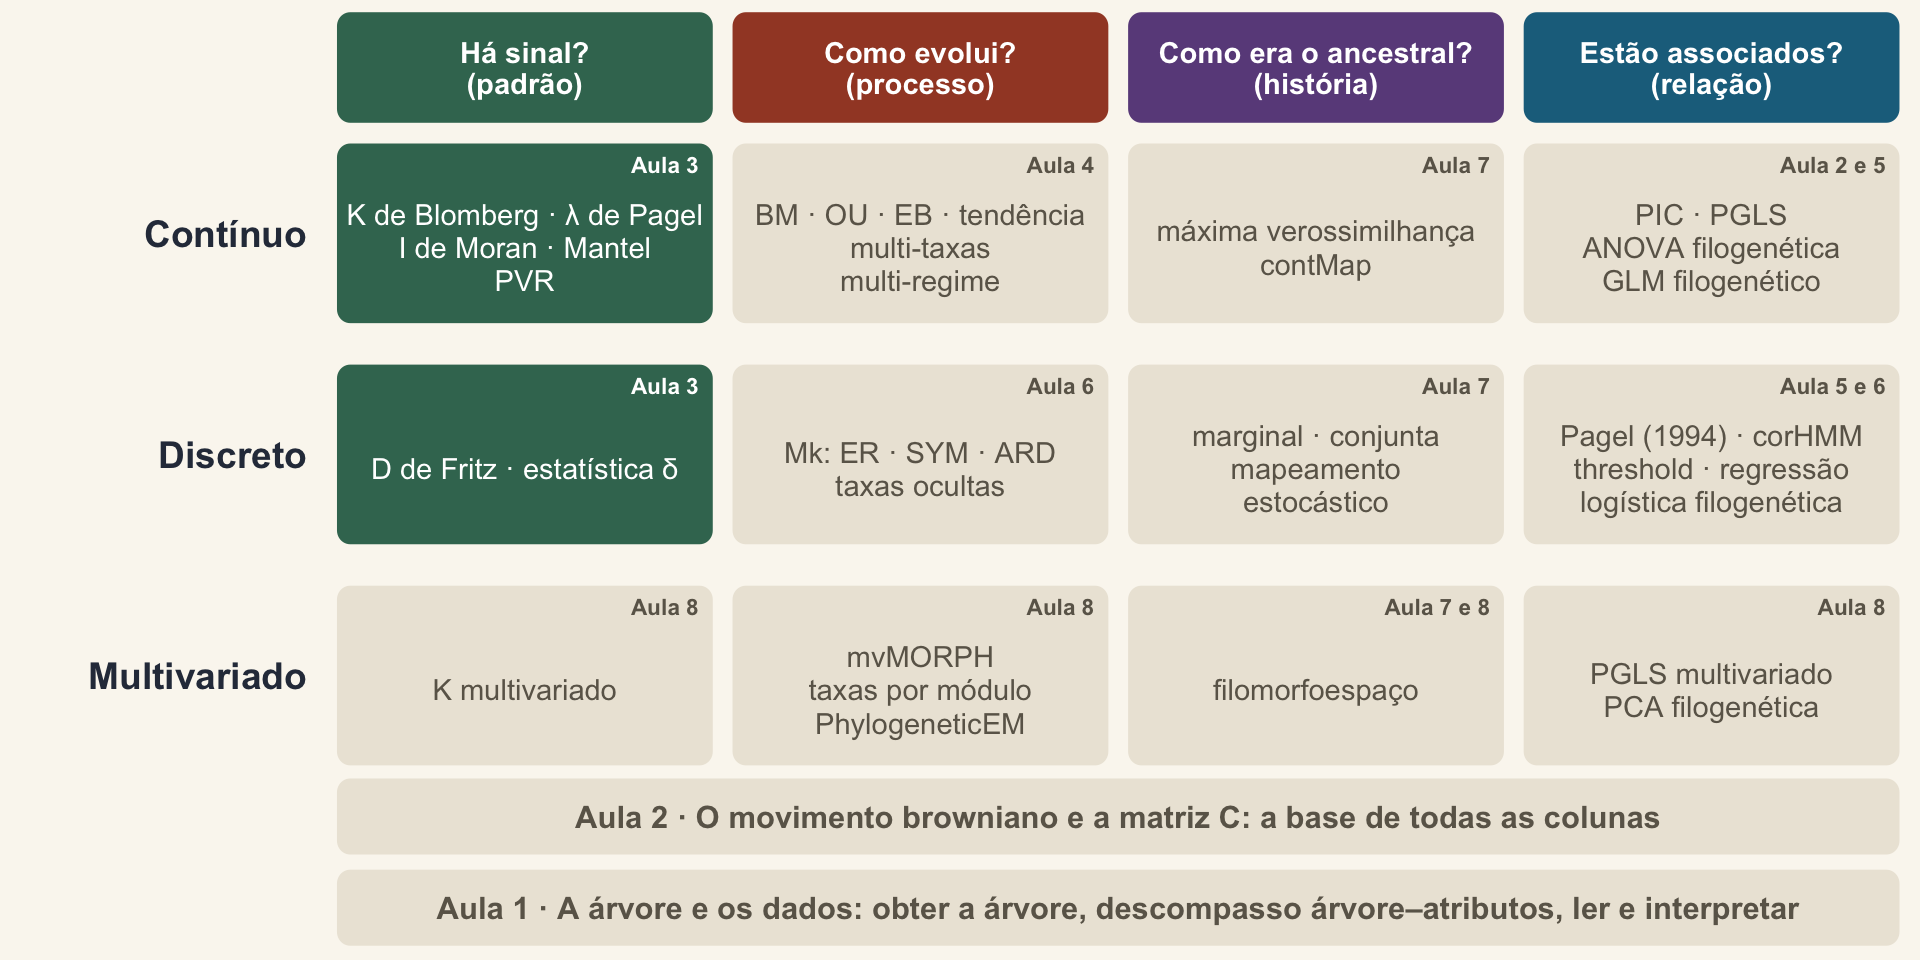
Onde estamos
Agora é com vocês
E o sinal? K = 0,2 com 12 spp.
Almeida Júnior, Recado difícil (1895), domínio público, via Wikimedia Commons. Prática: o walkthrough da Aula 3 e o desafio.